

-
油体(oil body),被称为脂滴(lipid droplet)和脂质体,是一种将中性脂质分隔成疏水基质的植物细胞器,用于储存脂质和能量,而脂质主要以三酯甘油(triacylglycerol,TAG)的形式存在,在种子和坚果中的含量丰富,在植物种子的萌发和生长发育过程中发挥着重要作用[1]。油脂的形成、积累与油体的生成涉及一系列复杂的生理生化过程。其中,油体在内质网中形成,经过中性脂质的合成与晶状体的形成、油体的初始分化与出芽及其生长和成熟[2]。
种子油脂的高效合成与储存是油茶产量与品质形成的关键过程,油体作为油脂储存的关键容器,其结构与功能的稳定形成依赖于油体蛋白(oleosin,OLE)、油体钙蛋白(caleosin)、油体固醇蛋白(steroleoin)的共同调控[3]。其中油体蛋白占70%~90%,OLE为油体蛋白基因,该基因编码油体蛋白,作用是增加空间位阻力和电荷斥力,阻止油体融合,在植物油体形成和稳定中起关键作用[4]。其N端亲水结构域与C端疏水结构域共同介导油体组装,并通过调控脂滴大小影响油脂代谢效率,是一种镶嵌在植物油体中的碱性疏水结构蛋白,在油脂积累、油体稳定结构及种子萌发过程中发挥关键作用[5−7]。Huang等[8]和Chen等[9]通过对其进化意义和生物学功能的分析,揭示了绿藻到种子植物的油体蛋白的进化谱系,并认为油体蛋白可被分为5类:原始型油体蛋白(P)、普遍性油体蛋白(U)、低分子量油体蛋白(SL)、高分子量油体蛋白(SH)、绒毡层油体蛋白(T)。T谱系仅在十字花科的绒层中检测到,P谱系主要分布在绿藻中,其衍生谱系或为U谱系,并由此衍生出SL和SH谱系。
近年来,随着植物油脂代谢分子机制研究的深入,油体蛋白基因家族的功能解析已成为作物品质改良的重要靶点。目前在拟南芥、玉米、大豆、甘蓝型油菜等植物中相继克隆出OLE基因。例如,在拟南芥中,AtOLE1基因的过表达显著提高了种子含油量与油体粒径,当OLE基因发生单突变、双突变和三重突变时,油体的大小、数量和空间分布发生改变,从而导致总油脂含量下降[10]。此外,大豆的GmOLE1基因被证实参与低温胁迫下的油脂保护机制[11]。将红花的油体蛋白基因导入拟南芥中发现,Ctoleosin基因过表达可提高转基因拟南芥种子的油含量[12]。在甘蓝型油菜研究中发现,将BnaOLE1基因导入拟南芥后,不仅可以增加种子油含量,其转基因种子的平均油体大小还略大于野生型;此外,转基因品系的种子大小和千粒重均有所增加,进而或可促使总脂质产量的提升[13]。因此,作为油体中含量最丰富的表面蛋白,油体蛋白或在植物油体形成和油脂储存过程中发挥着至关重要的作用。
油茶(Camellia spp.)是山茶科(Theaceae)常绿灌木[14],广泛分布在我国南方丘陵地区,与椰子(Cocos nucifera)、油棕(Elaeis guinensis)和橄榄(Olea europaea)一同被列为世界四大木本油料作物[15−17]。栽植的品种有普通油茶(Camellia oleifera Abel)、越南油茶(C. drupifera Lour.)、博白大果油茶(C. gigantocarpa Hu et Huang)、红花油茶(C. chekiangoleosa Hu)等[18]。作为我国特有的木本油料树种,其茶油富含油酸、亚油酸及生育酚等活性成分,被誉为“东方橄榄油”[19−20]。越南油茶是海南油茶的主要栽培品种,研究表明其可能起源于海南岛,得益于该地区独特的热带气候条件,油茶果仁表现出丰富的营养价值。茶油含有丰富的不饱和脂肪酸,并富含多种功能性活性物质,如茶皂素、黄酮类、多酚类、多糖等[21−22]。这些成分使得茶油能生产出绿色、纯天然且具有保健功能的高档食用油,同时具有抗菌、消炎、清热解毒等功效,在抗老化、抗肿瘤等方面也有一定的作用[23−26]。因此,油茶是一种具有巨大发展潜力的油料作物。作为宝贵的油料资源,其在油脂的合成与积累方面的潜力尚未完全挖掘,深入研究油脂积累的关键基因并解析其分子调控机制,对于培育高油型油茶新品种具有重要的科学意义和应用价值。
然而,相较于模式植物及大宗油料作物,油茶油体调控蛋白基因的系统性研究较少,其分子进化特征、表达调控网络及功能结构域尚不明确,制约了油茶高油品种选育及油脂合成途径的精准调控。因此本文通过越南油茶转录组数据入手,获得OLE基因序列并进行基因克隆,通过生物信息学手段预测蛋白基本理化特性、结构特点和进化关系等,为阐明OLE基因调控油茶油体的功能研究提供重要线索。
-
海南大学儋州校区的油茶育苗圃(19°30'28" N, 109°29'45" E),不同成熟期果实采摘时间分别为8月(S1)、9月(S2)和10月(S3)。挑选生长状况优良的油茶植株,取其果仁作为提取RNA的样本。采用FOREGENE的多糖多酚RNA提取试剂盒(RE-05011)对相应样品进行RNA的提取,而剩余的材料在液氮中冷冻,并在−80℃下储存。提取的样品RNA经Nanodrop Lite核酸测定仪(Thermo Scientific, USA)检测浓度,并用1%的琼脂糖凝胶电泳检测质量,合格后使用NOVA的逆转录试剂盒(NV120302S)进行反转录构建所需的CDNA文库,后续用于越南油茶OLE基因家族的扩增和实时荧光定量PCR。
-
根据课题组已有的越南油茶成熟期果仁组织转录组数据,找到Oleosin基因相关的序列信息,并通过Primer premier v5.0软件设计特异性引物(表1)。按照PrimeSTAR®系列高保真PCR酶试剂(R045A)说明书设置反应体系进行目的片段扩增。用1%琼脂糖凝胶电泳检测扩增产物,并回收符合大小的目的条带,回收产物的连接依照TaKaRa的pMDTM19-T Vrtor Cloning Kit试剂盒(6013)的说明书进行,并选用上海唯地生物有限公司的大肠杆菌感受态细胞E. coli DH5α进行转化。
表 1 本研究中使用到的引物信息
Table 1. Information regarding the primers used in this study
引物名称
Primer name引物序列(5'—3')
Primer sequence (5'—3')用途
UsesCdOLE1-F TGTTCCCTCCCTCCCTCTAC CdOLE1编码区克隆 CdOLE1-R TTATGTTCTGACAGATTCCTGGG CdOLE2-F CAAGTTCTCAACACGTGCCAC CdOLE2编码区克隆 CdOLE2-R TTACCATGCCTGTTGCGAACC CdOLE3-F GGTTTGACTCTGGCCGGGA CdOLE3编码区克隆 CdOLE3-R TCAAGAAGCTTGTGAACCACTG CdOLE4-F TCTTCTCATTCTAACAATCCAT CdOLE4编码区克隆 CdOLE4-R CACATTTCCCATTTTCACATA CdOLE1-QF GCCGCAATAACGGAGTGTC qPCR CdOLE1-QR GCTCAGCCCTGTCCTTCATC CdOLE2-QF CGACGGCGGTTTGAAGACT qPCR CdOLE2-QR GGTTCCGACGAGGGTGATT CdOLE3-QF GTGTTGTCGTGGATTTACCG qPCR CdOLE3-QR GCCTTACTCGCCAGTTTCA CdOLE4-QF AATCACCGCTTTGTCATCTC qPCR CdOLE4-QR GCCCACTTCCCTTGTCTTG GAPDH-F TTGGCATCGTTGAGGGTCT qPCR GAPDH-R CAGTGGGAACACGGAAAGC -
采用Snapgene对OLE基因家族基因的全长序列进行开放阅读框分析;通过NCBI(
http://blast.ncbi.nlm.nih.gov )的Conserved Domain预测保守结构域;利用ExPASy ProtParam网站对OLE基因家族基因的分子量、等电点、氨基酸组成等理化性质进行分析;采用NCBI数据库下载不同植物的OLE的氨基酸序列;使用DNAMAN v8.0软件对越南油茶OLE基因和其他物种同源蛋白序列进行比对;使用MEGA v11软件对不同属种进行邻接法(Neighbor-Joining,NJ)构建系统进化树;采用Wolfpsort在线网站预测OLE基因的亚细胞定位;通过SOPMA在线工具进行OLE基因的蛋白质二级结构预测,并结合SWISS-MODEL在线工具预测OLE基因家族基因的蛋白质三级结构。 -
以越南油茶不同成熟期果仁提取RNA,并反转录成cDNA作为模板,通过Primer premier v5.0软件设计(表1)RT-qPCR引物进行扩增,使用NOVA的Taq SYBRt® Green qPCR Premix (Universal) (NV30202M)的两步法根据说明书中的反应体系和程序进行荧光定量PCR,相对表达量计算采用2-ΔΔCt法进行数据处理,结合双尾t检验(Two-taild t-test)和IF函数判断显著性,通过Graphpad Prism v8.0绘图。
-
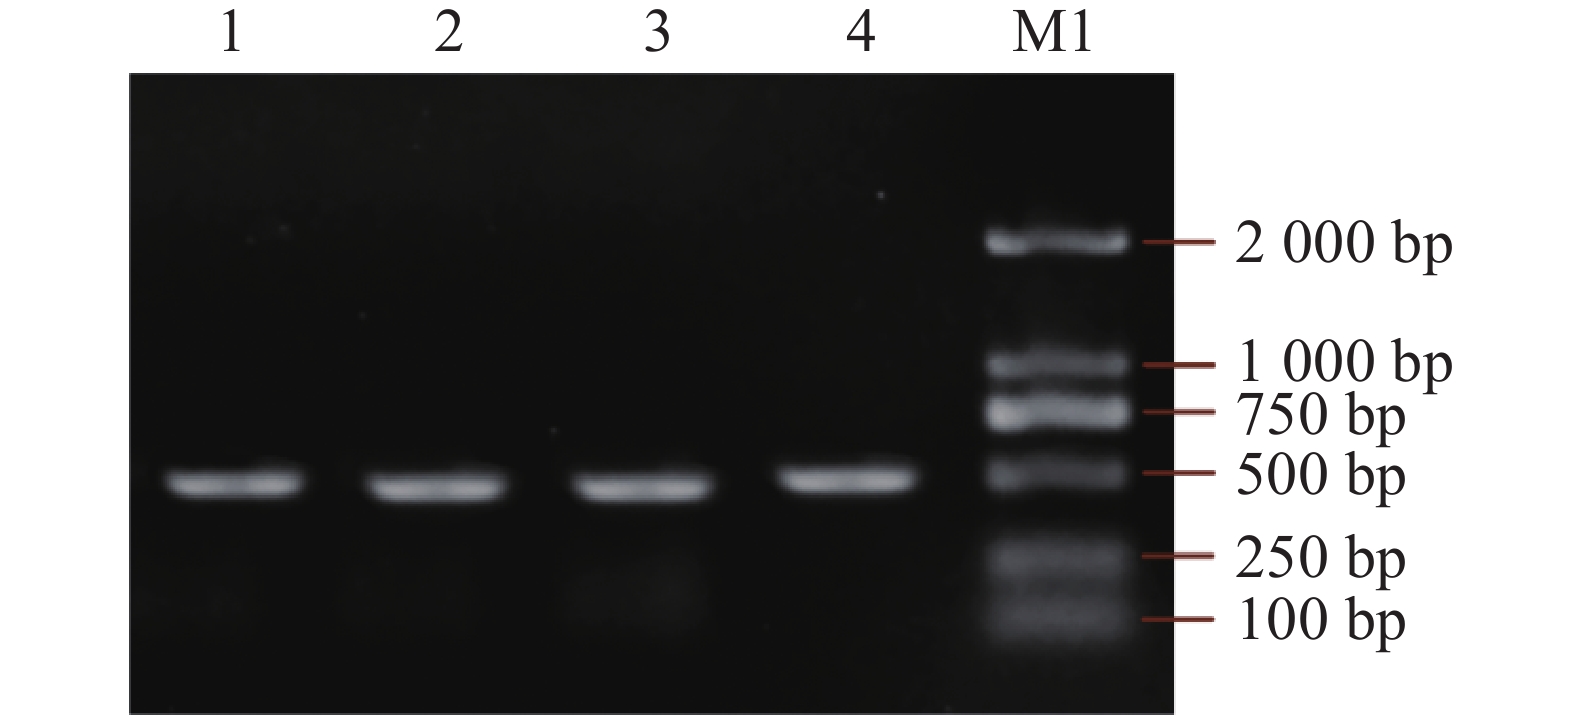
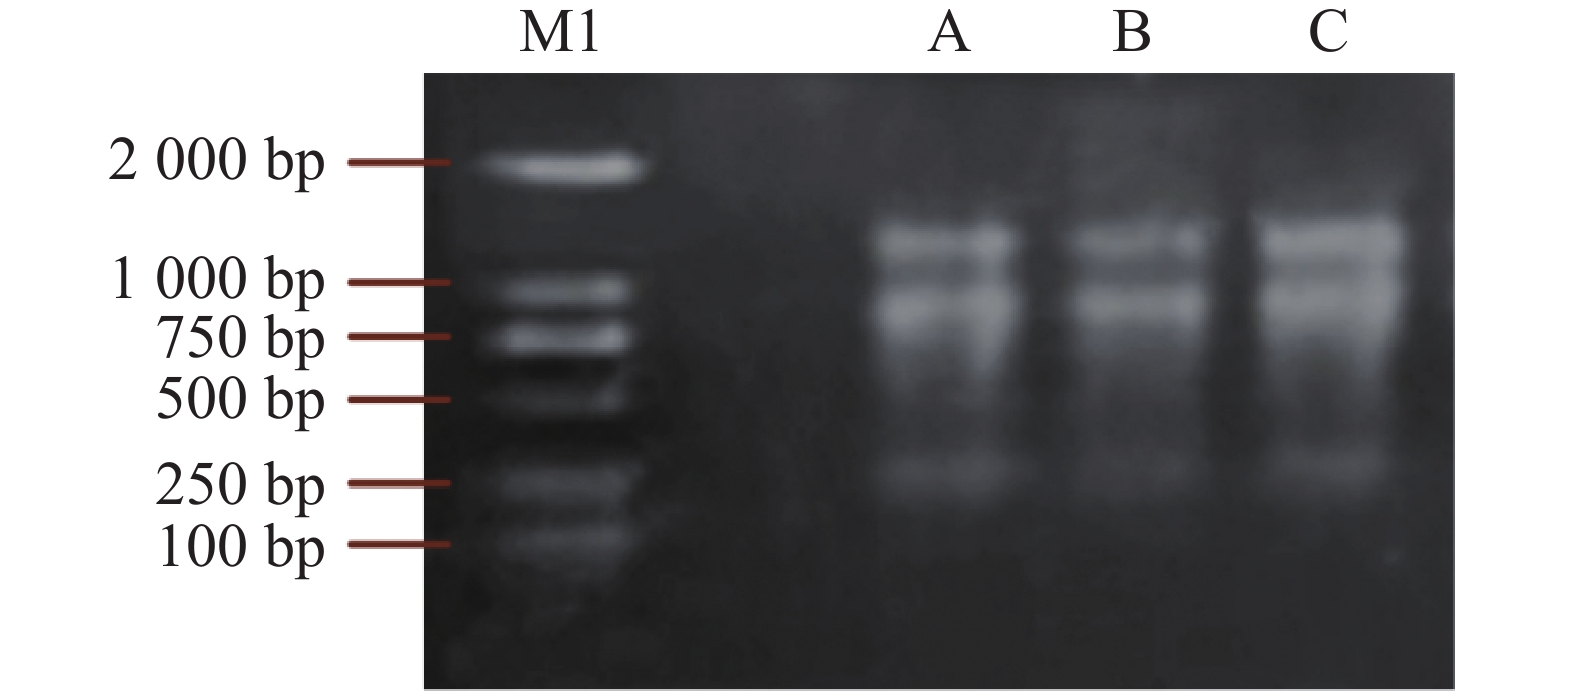
根据课题组现有的越南油茶转录组数据,设计特异性引物,并以越南油茶果仁提取RNA(图1),反转录cDNA作为模板,使用PrimeSTAR®系列高保真PCR酶扩增OLE基因家族基因,1%的琼脂糖凝胶电泳检测扩增的产物长度是否正确,获得CdOLE1、CdOLE2、CdOLE3、CdOLE4基因编码的CDS全长序列长度分别为447 bp、426 bp、423 bp、465 bp(图2),编码CDS的氨基酸序列长度分别为149、142、141、155。
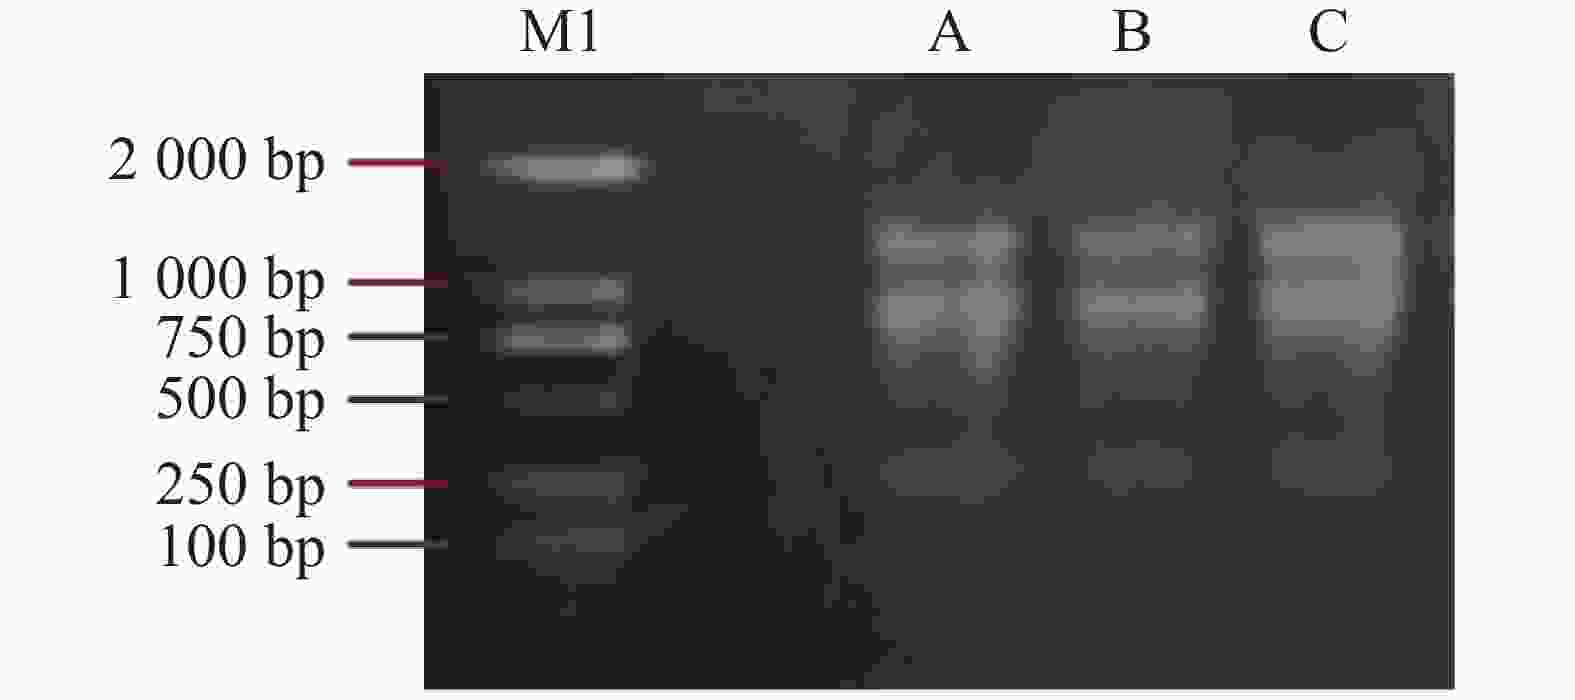
图 1 提取油茶果仁RNA琼脂糖凝胶电泳图片
Figure 1. Agarose gel electrophoresis images of RNA extracted from C. drupifera kernels
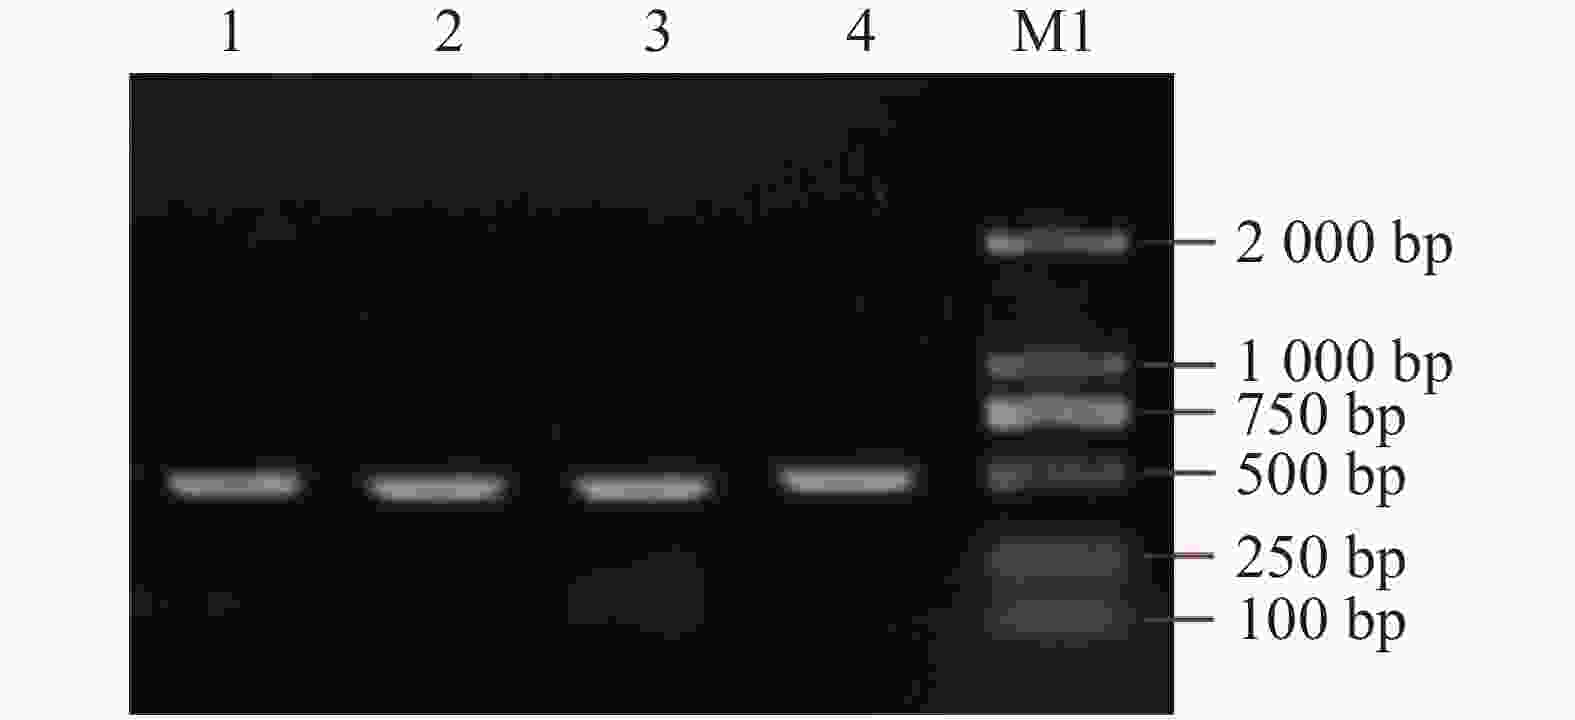
图 2 越南油茶CdOLE1, CdOLE2, CdOLE3和CdOLE4基因PCR凝胶电泳图
Figure 2. PCR gel electrophoresis of CdOLE1, CdOLE2, CdOLE3 and CdOLE4 genes in C. drupifera
-
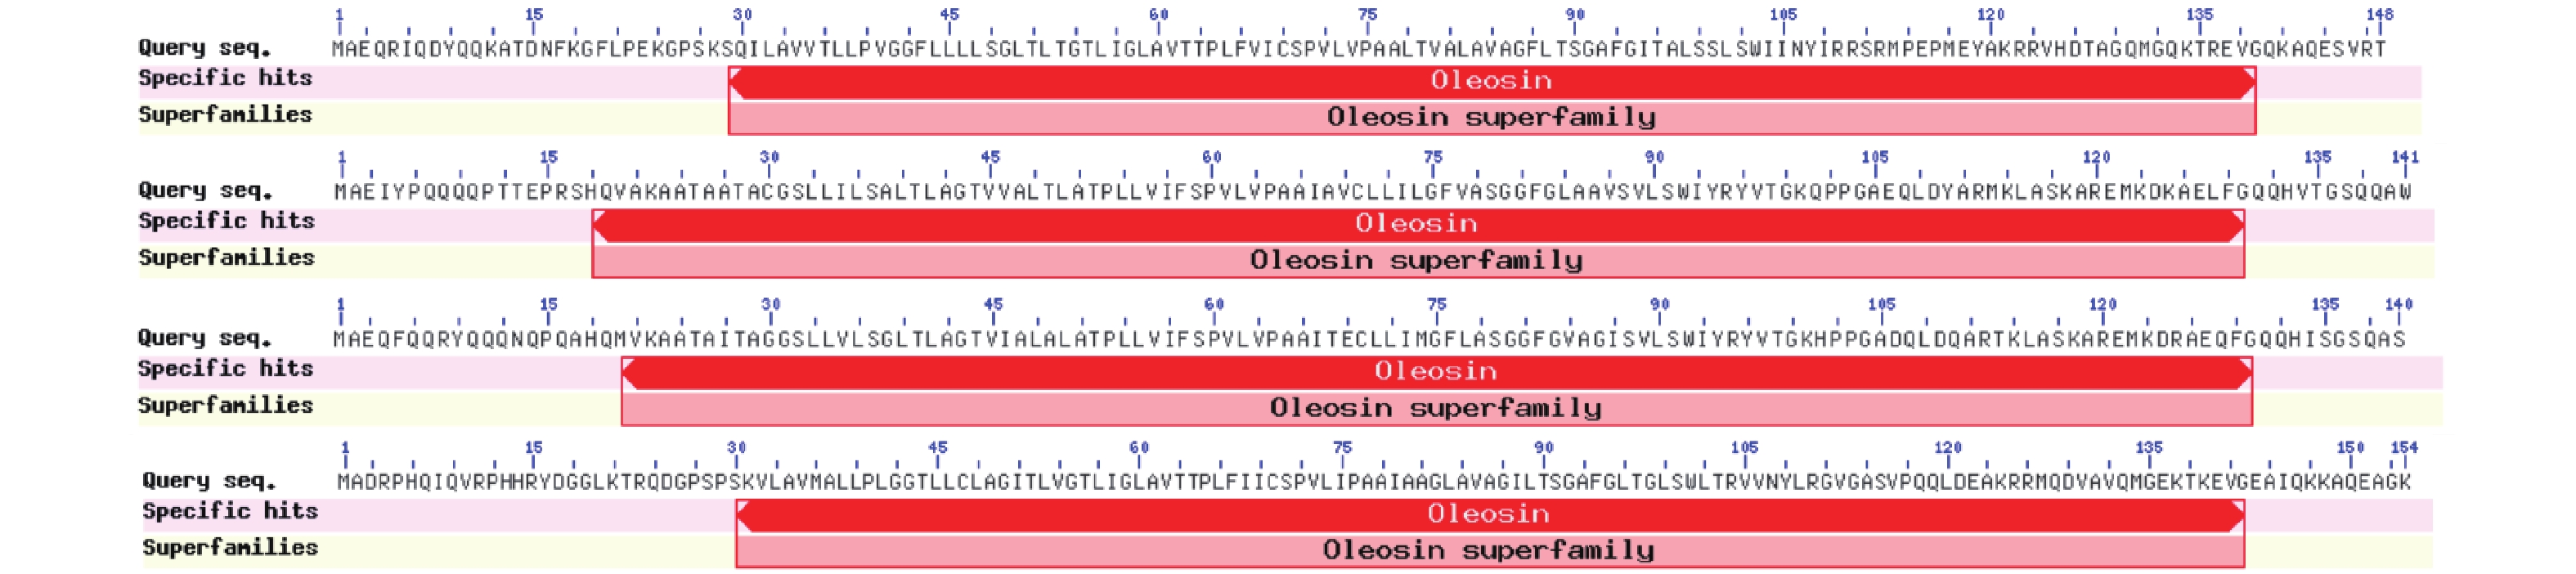
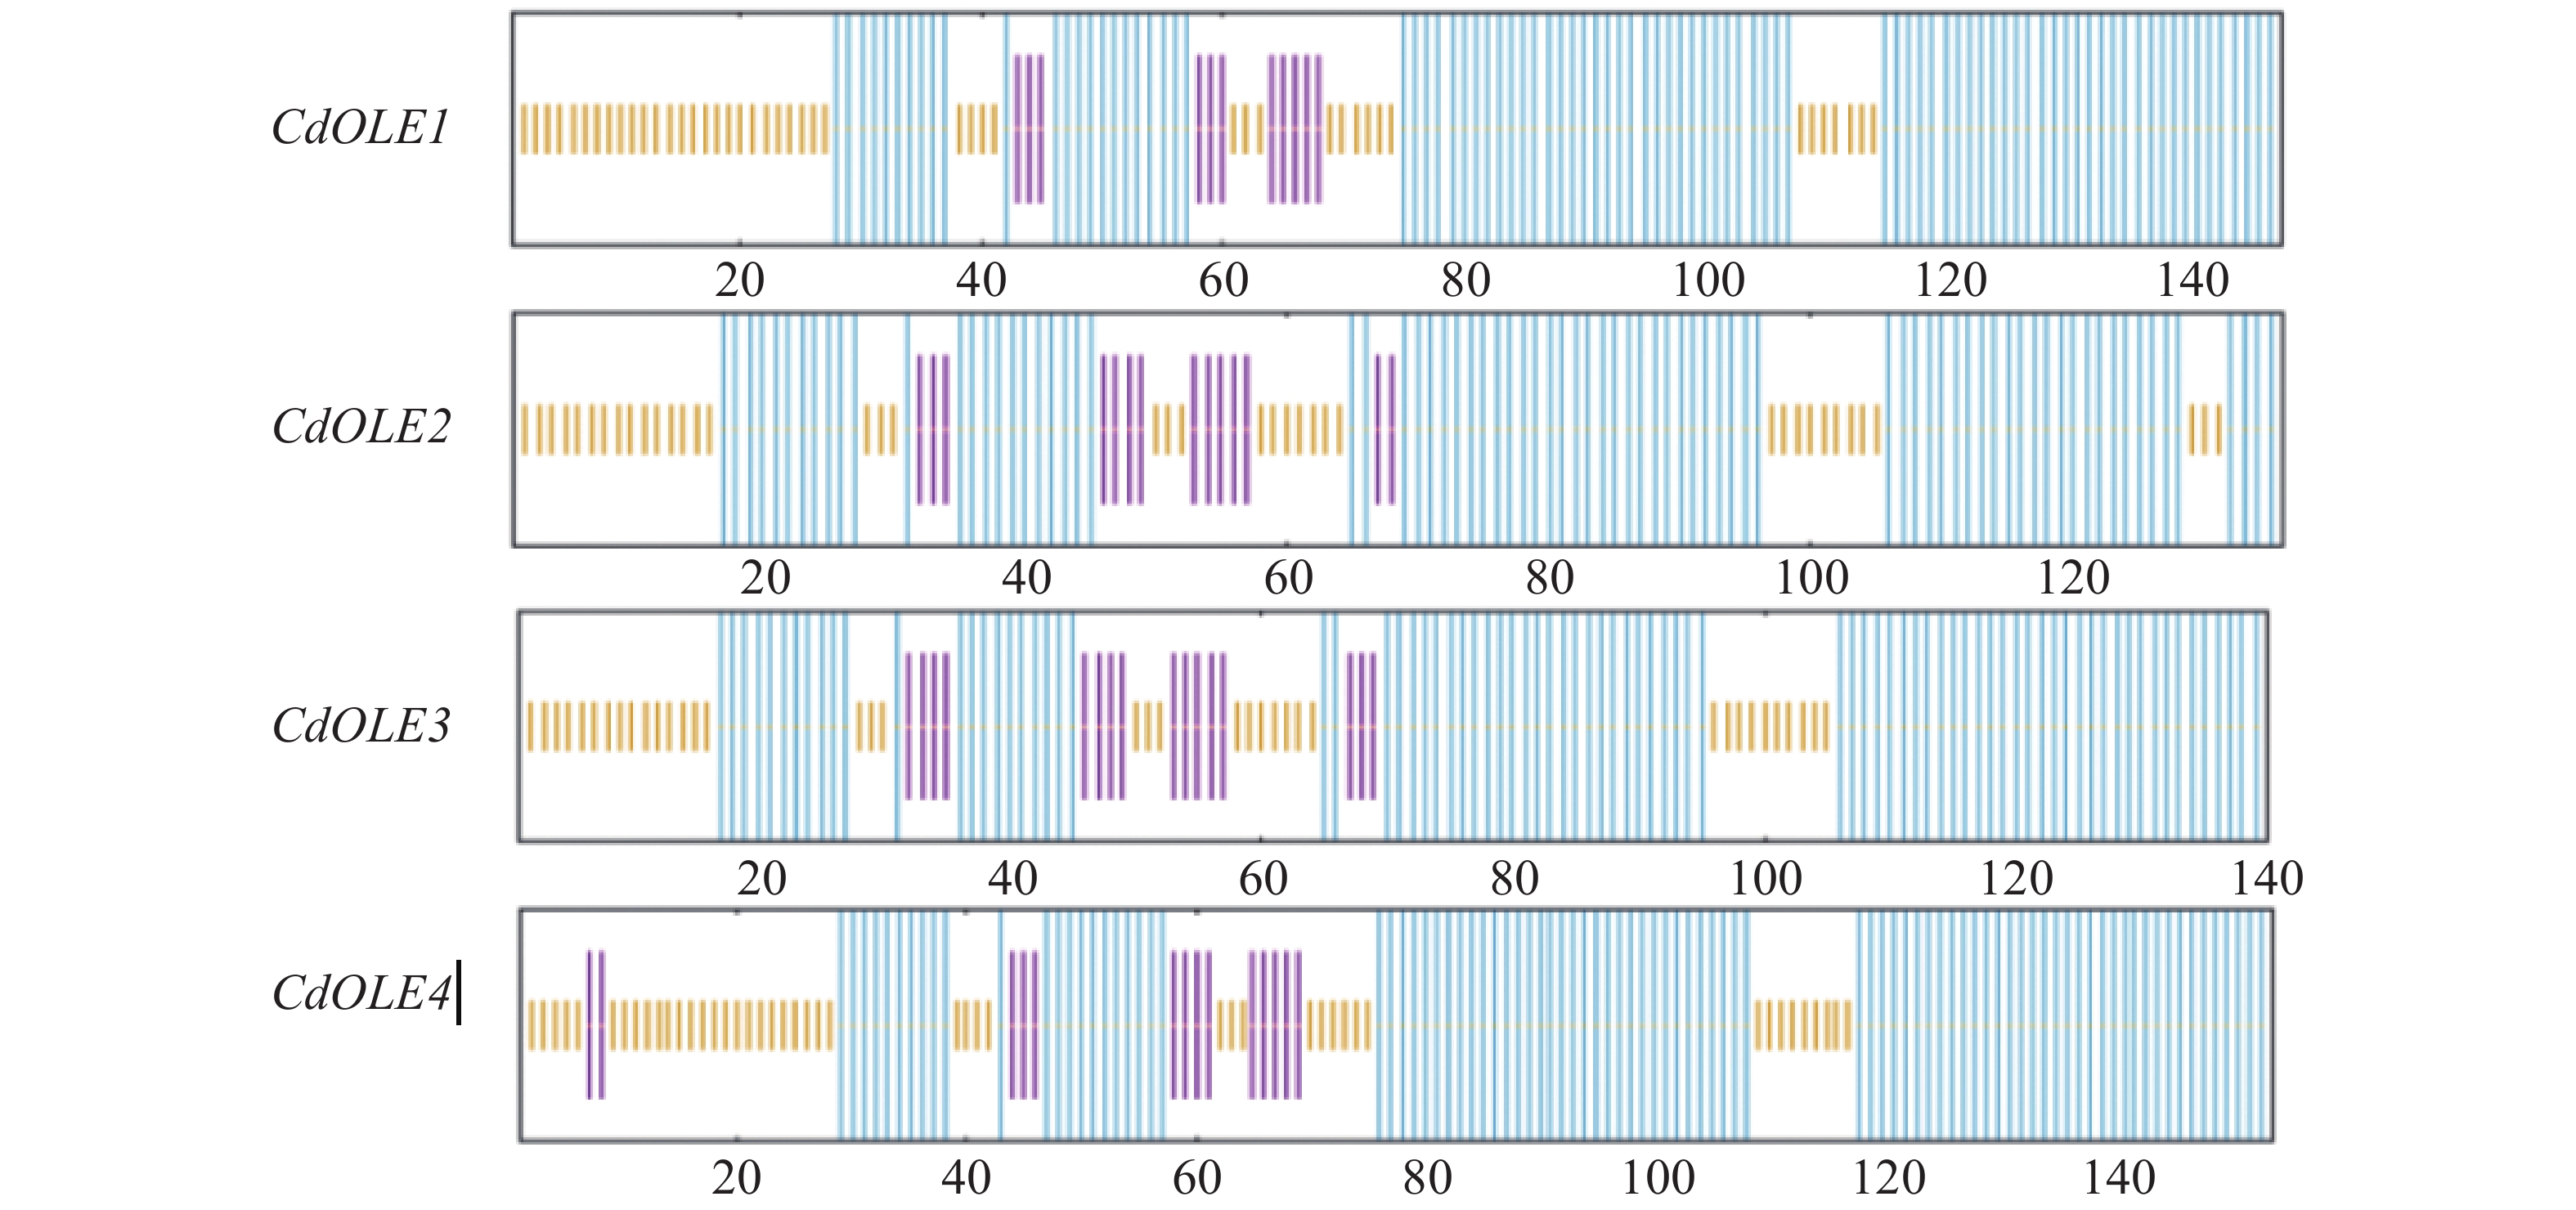
通过NCBI-Conserved-Domain对OLE基因家族的氨基酸序列进行保守结构域分析。结果发现,OLE基因家族所编码的蛋白均含油体蛋白特有的保守结构域Oleosin (PF01277),并且确定为Oleosin superfamily成员,编码的残基位置分别为CdOLE1: 29~139、CdOLE2:18~130、CdOLE3: 18~129、CdOLE4: 34~145,Oleosin结构域最显著的特征是存在一个高度保守的中央疏水结构域,富含脯氨酸和疏水残基。该结构域在脂滴表面形成 β-折叠桶,直接插入油体的甘油三酯核心中,起锚定作用,调控脂代谢的不同环节(图3)。
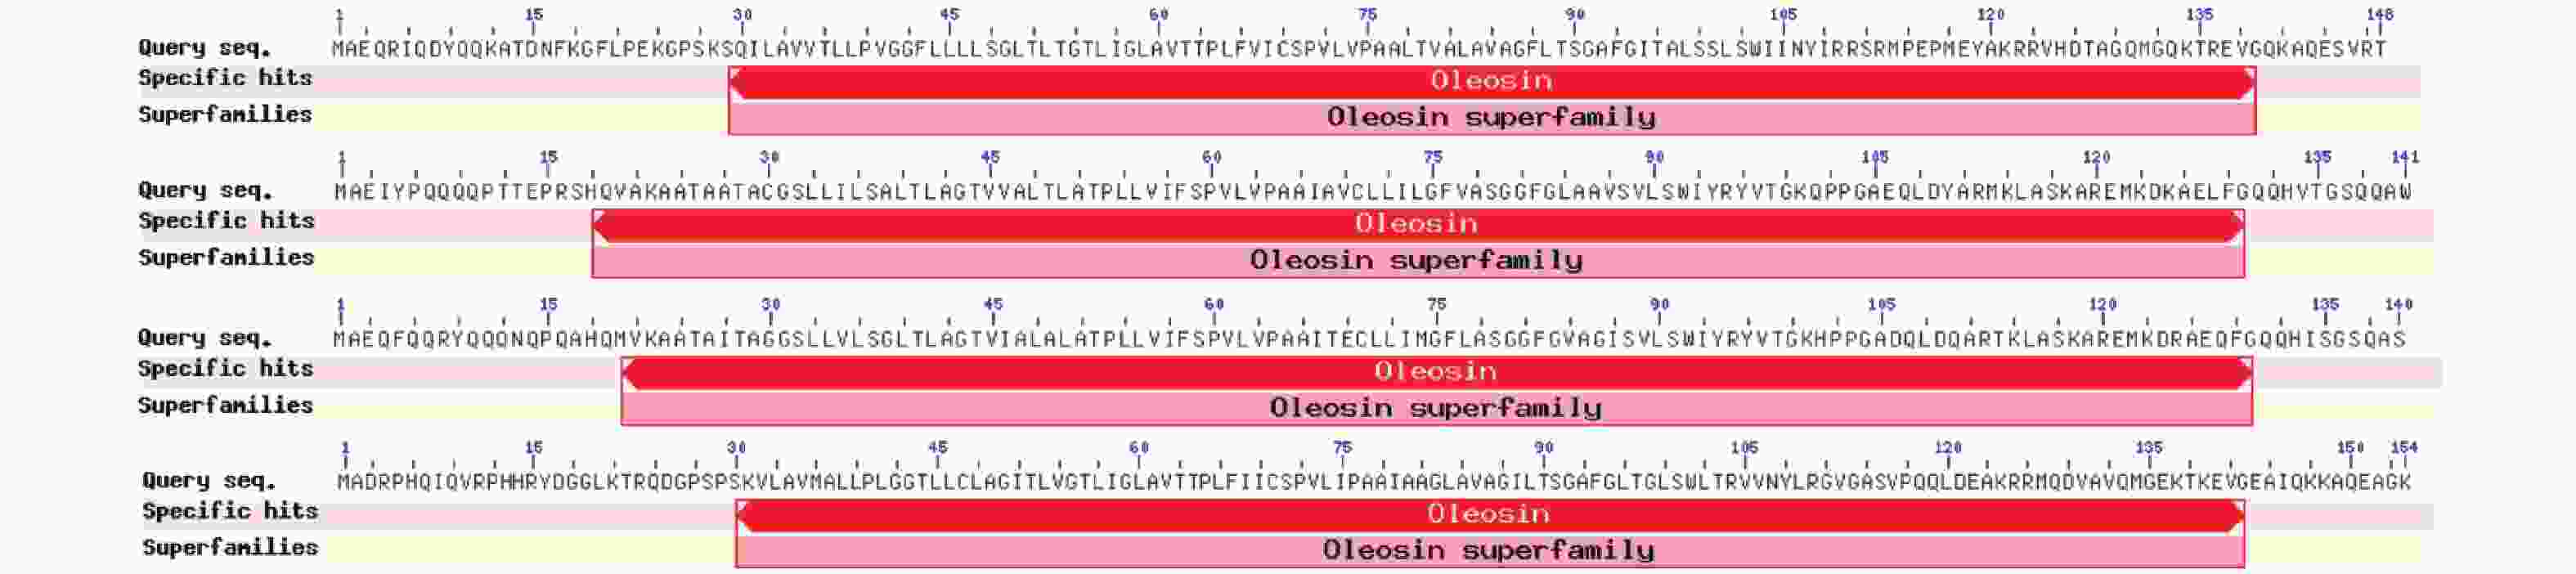
图 3 蛋白的保守结构域预测
Figure 3. Conserved domain prediction of proteins
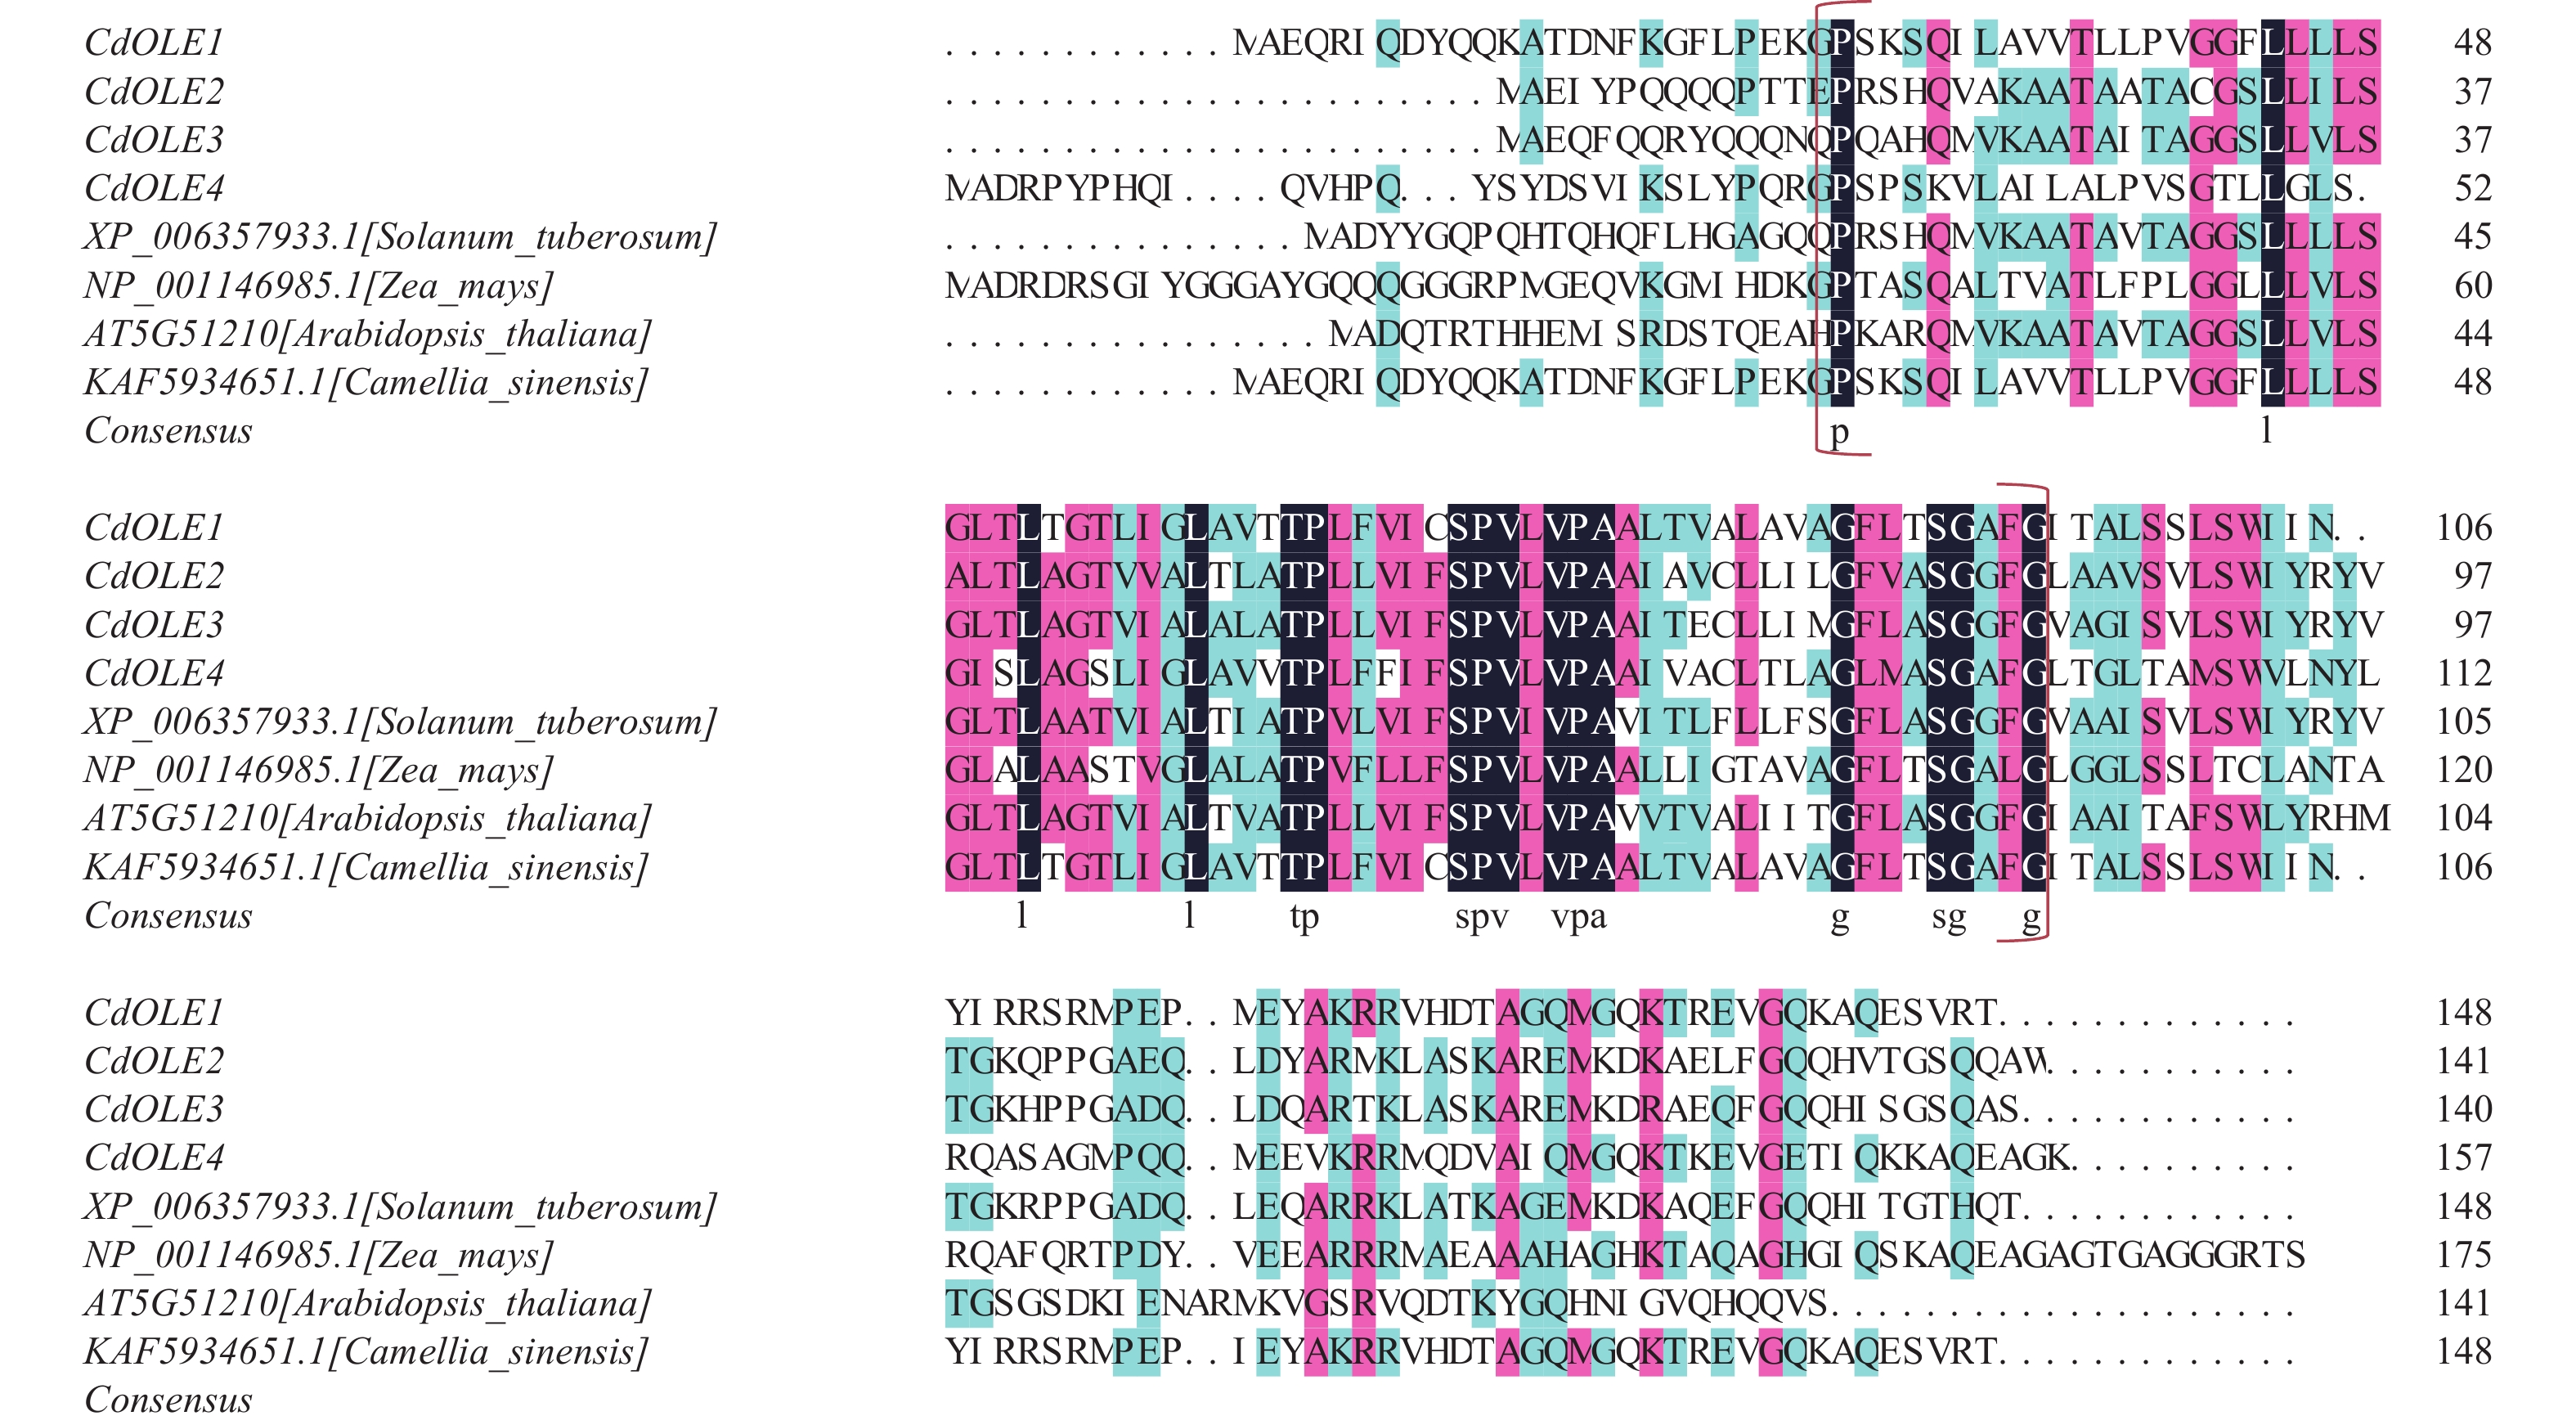
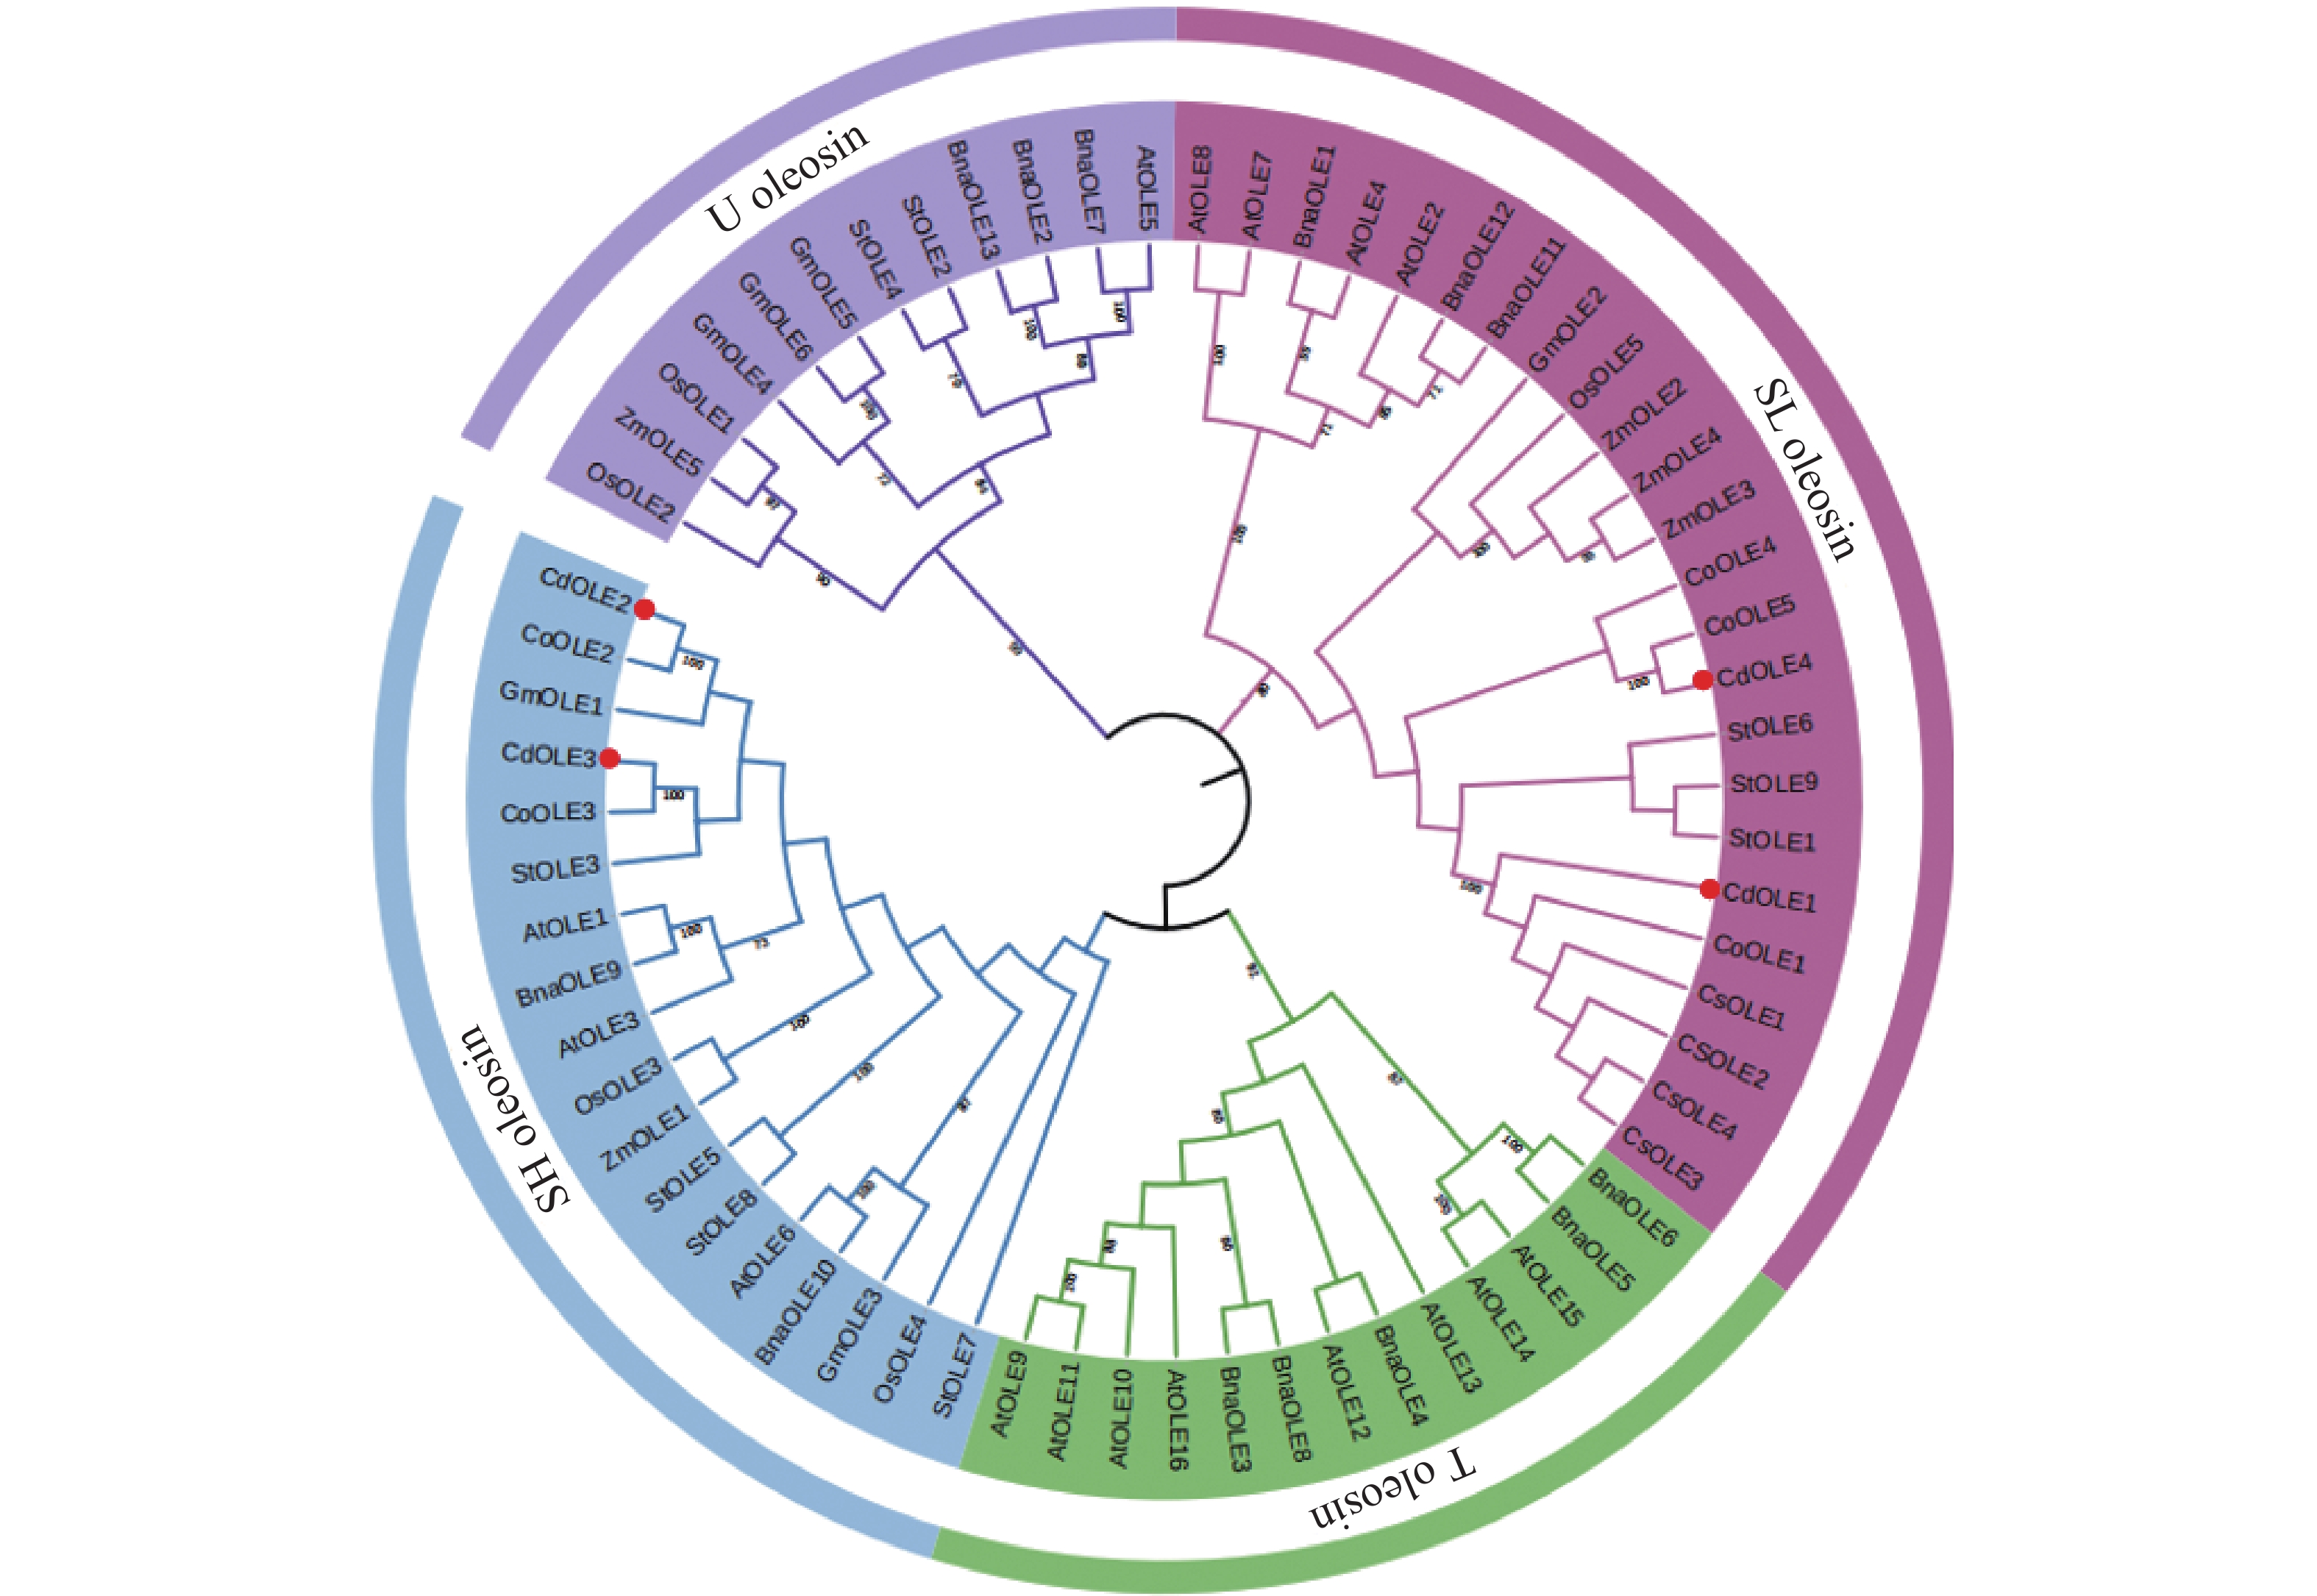
多序列比对和系统发育分析是进行多个同源物种进行进化关系和功能研究的重要方法。将OLE基因家族基因的蛋白序列与从NCBI下载的不同植物(马铃薯、玉米、拟南芥、山茶等)中的同源蛋白序列进行多序列比对。结果显示,越南油茶的OLE基因在大多数OLE基因中有着相对保守的Oleosin结构域(图4)。因此,表明了扩增的越南油茶OLE基因家族基因属于Oleosin家族中的成员。通过MEGA v11软件,对越南油茶、马铃薯、玉米、拟南芥、山茶、大豆和普通油茶的Oleosin基因家族成员进行了系统发育分析。结果表明,所有的基因可以被分为四个谱系(亚家族),分别为T-Oleosin、U-Oleosin、SL-Oleosin和SH-Oleosin。T-Oleosin亚家族成员仅在拟南芥和油菜这两个十字花科物种存在,越南油茶基因家族则分布在SL和SH两个亚家族。越南油茶CdOLE1和CdOLE4属于SL-Oleosin亚家族,CdOLE2和CdOLE3属于SH-Oleosin亚家族。CdOLE1与CoOLE1基因距离最近,CdOLE2、CdOLE3和CdOLE4基因均与普通油茶聚在了一簇,表明越南油茶与普通油茶同源性最高,这与群体基因组学研究结果一致,说明越南油茶与六倍体普通油茶存在强烈基因渗入[27]。(图5)。
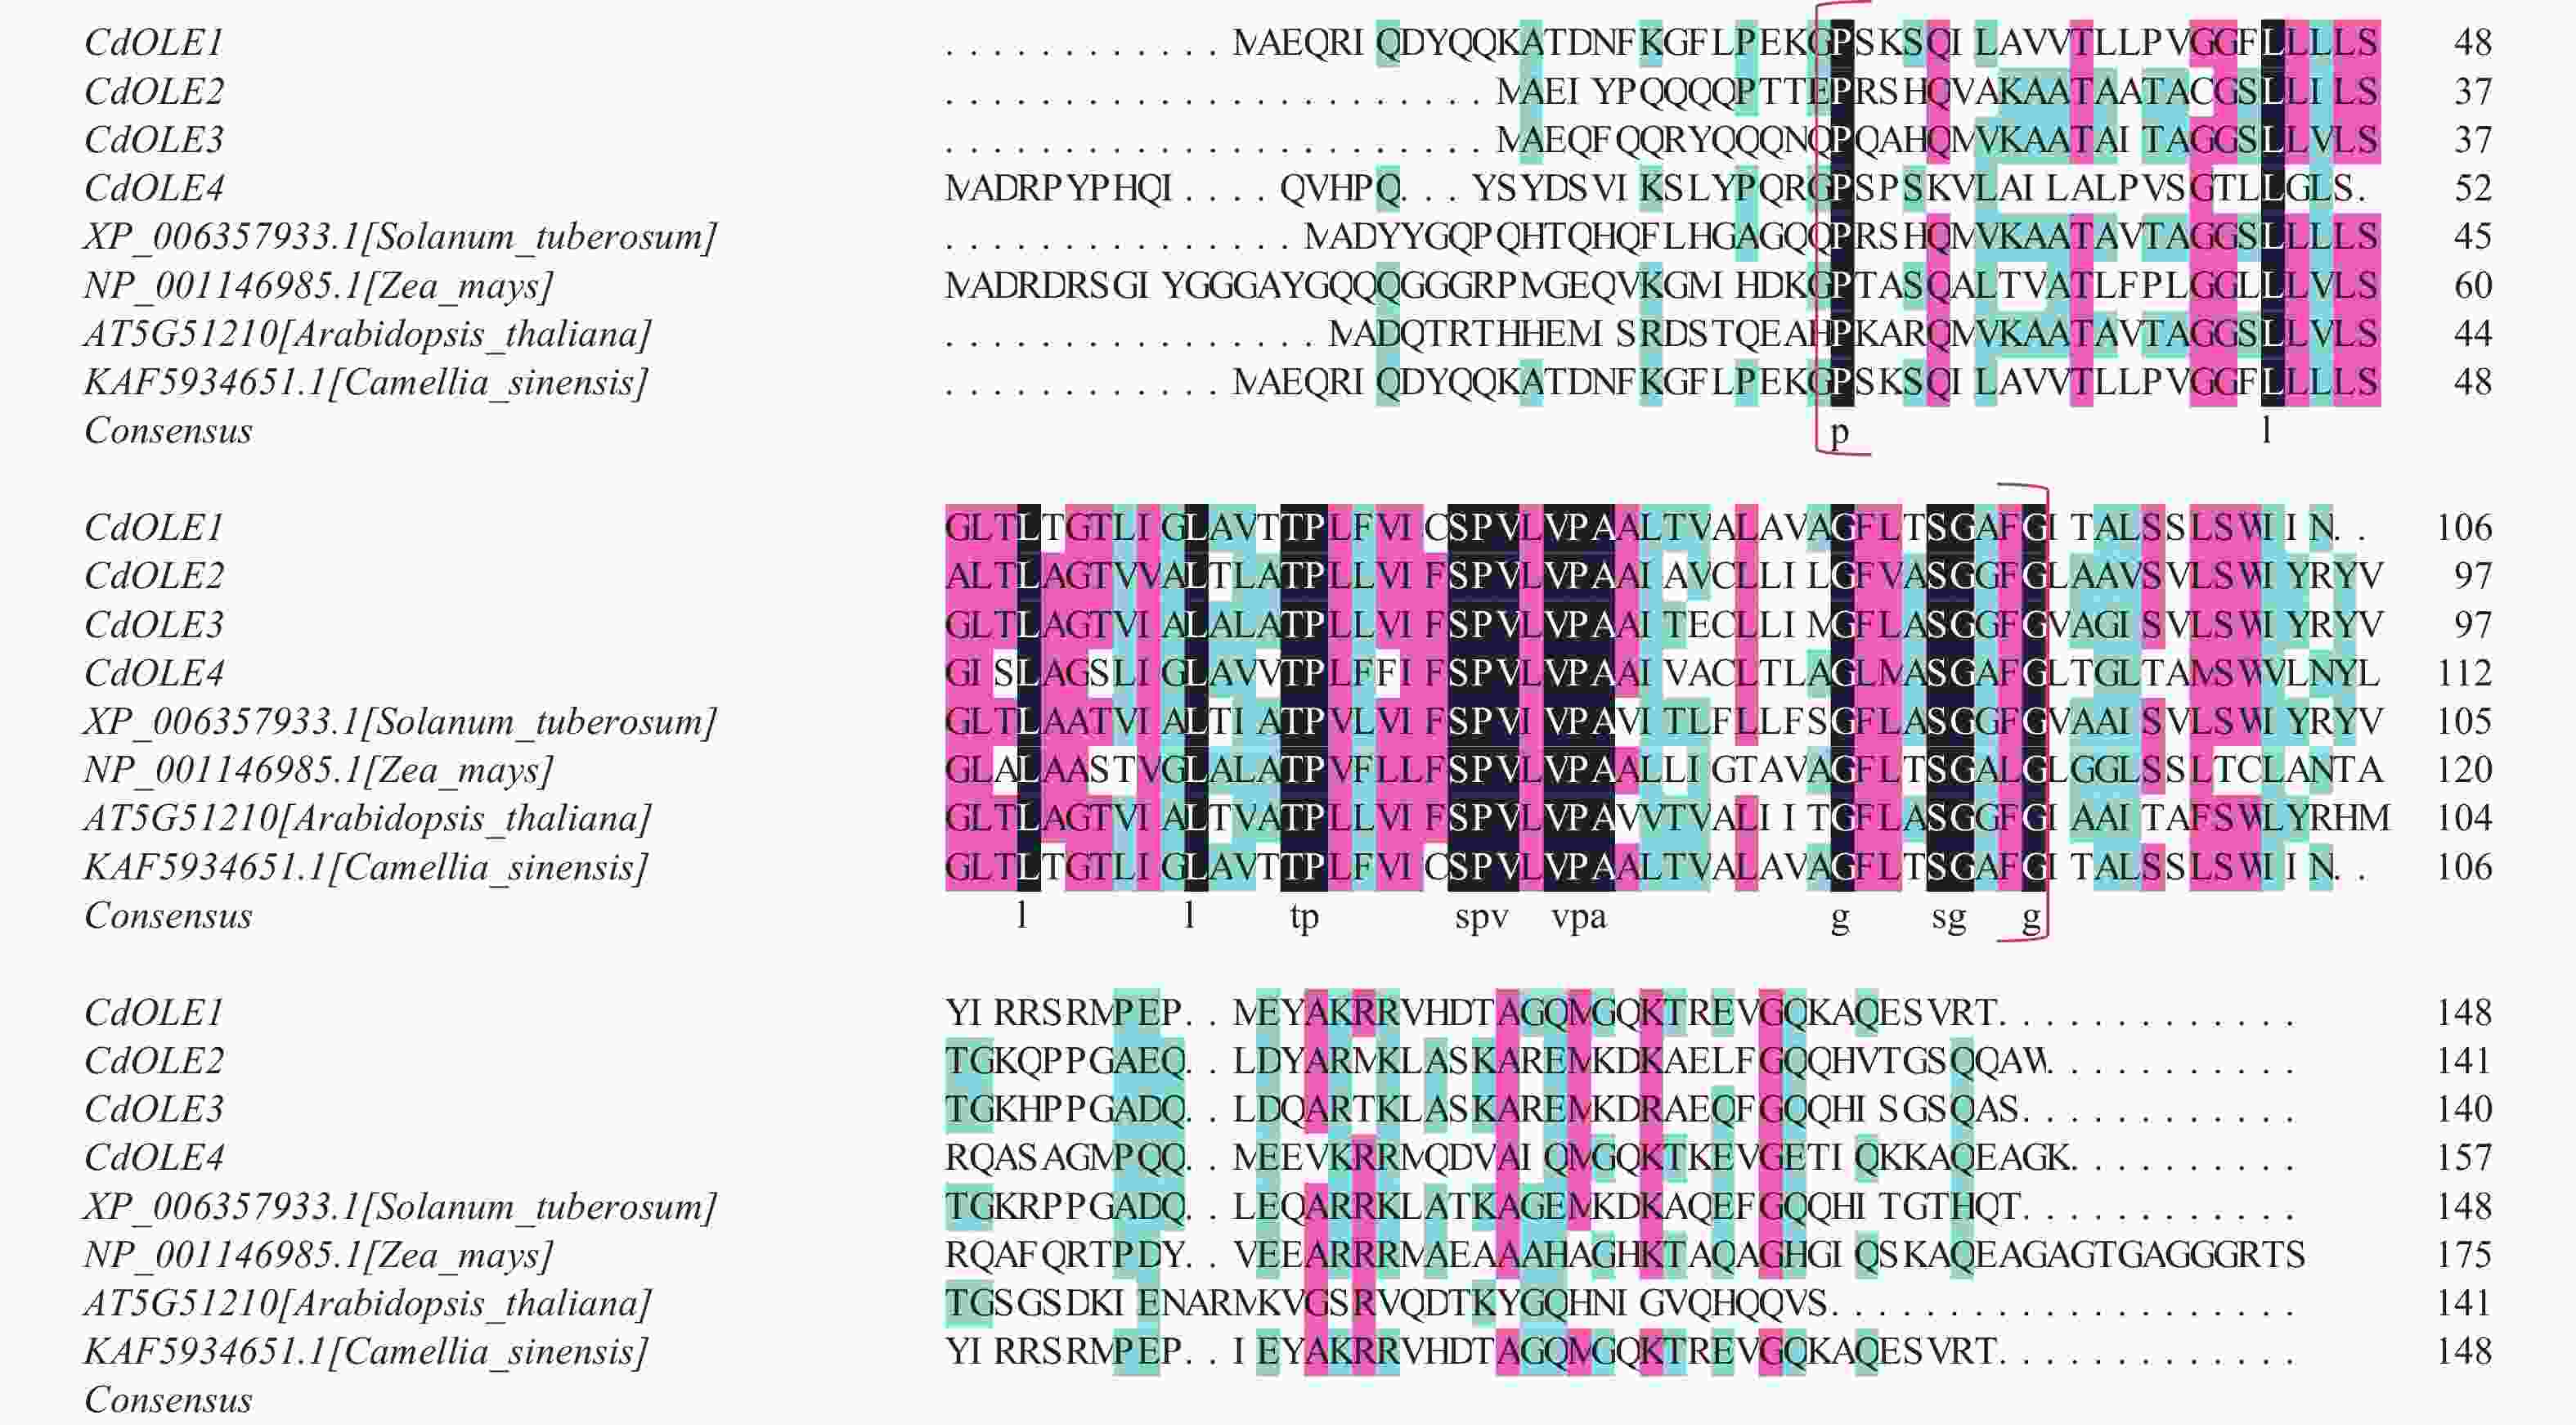
图 4 越南油茶CdOLE1-CdOLE4基因与其他物种氨基酸序列比对
Figure 4. Alignments of amino acid sequences of CdOLE1-CdOLE4 gene in C. drupifera with those in other species
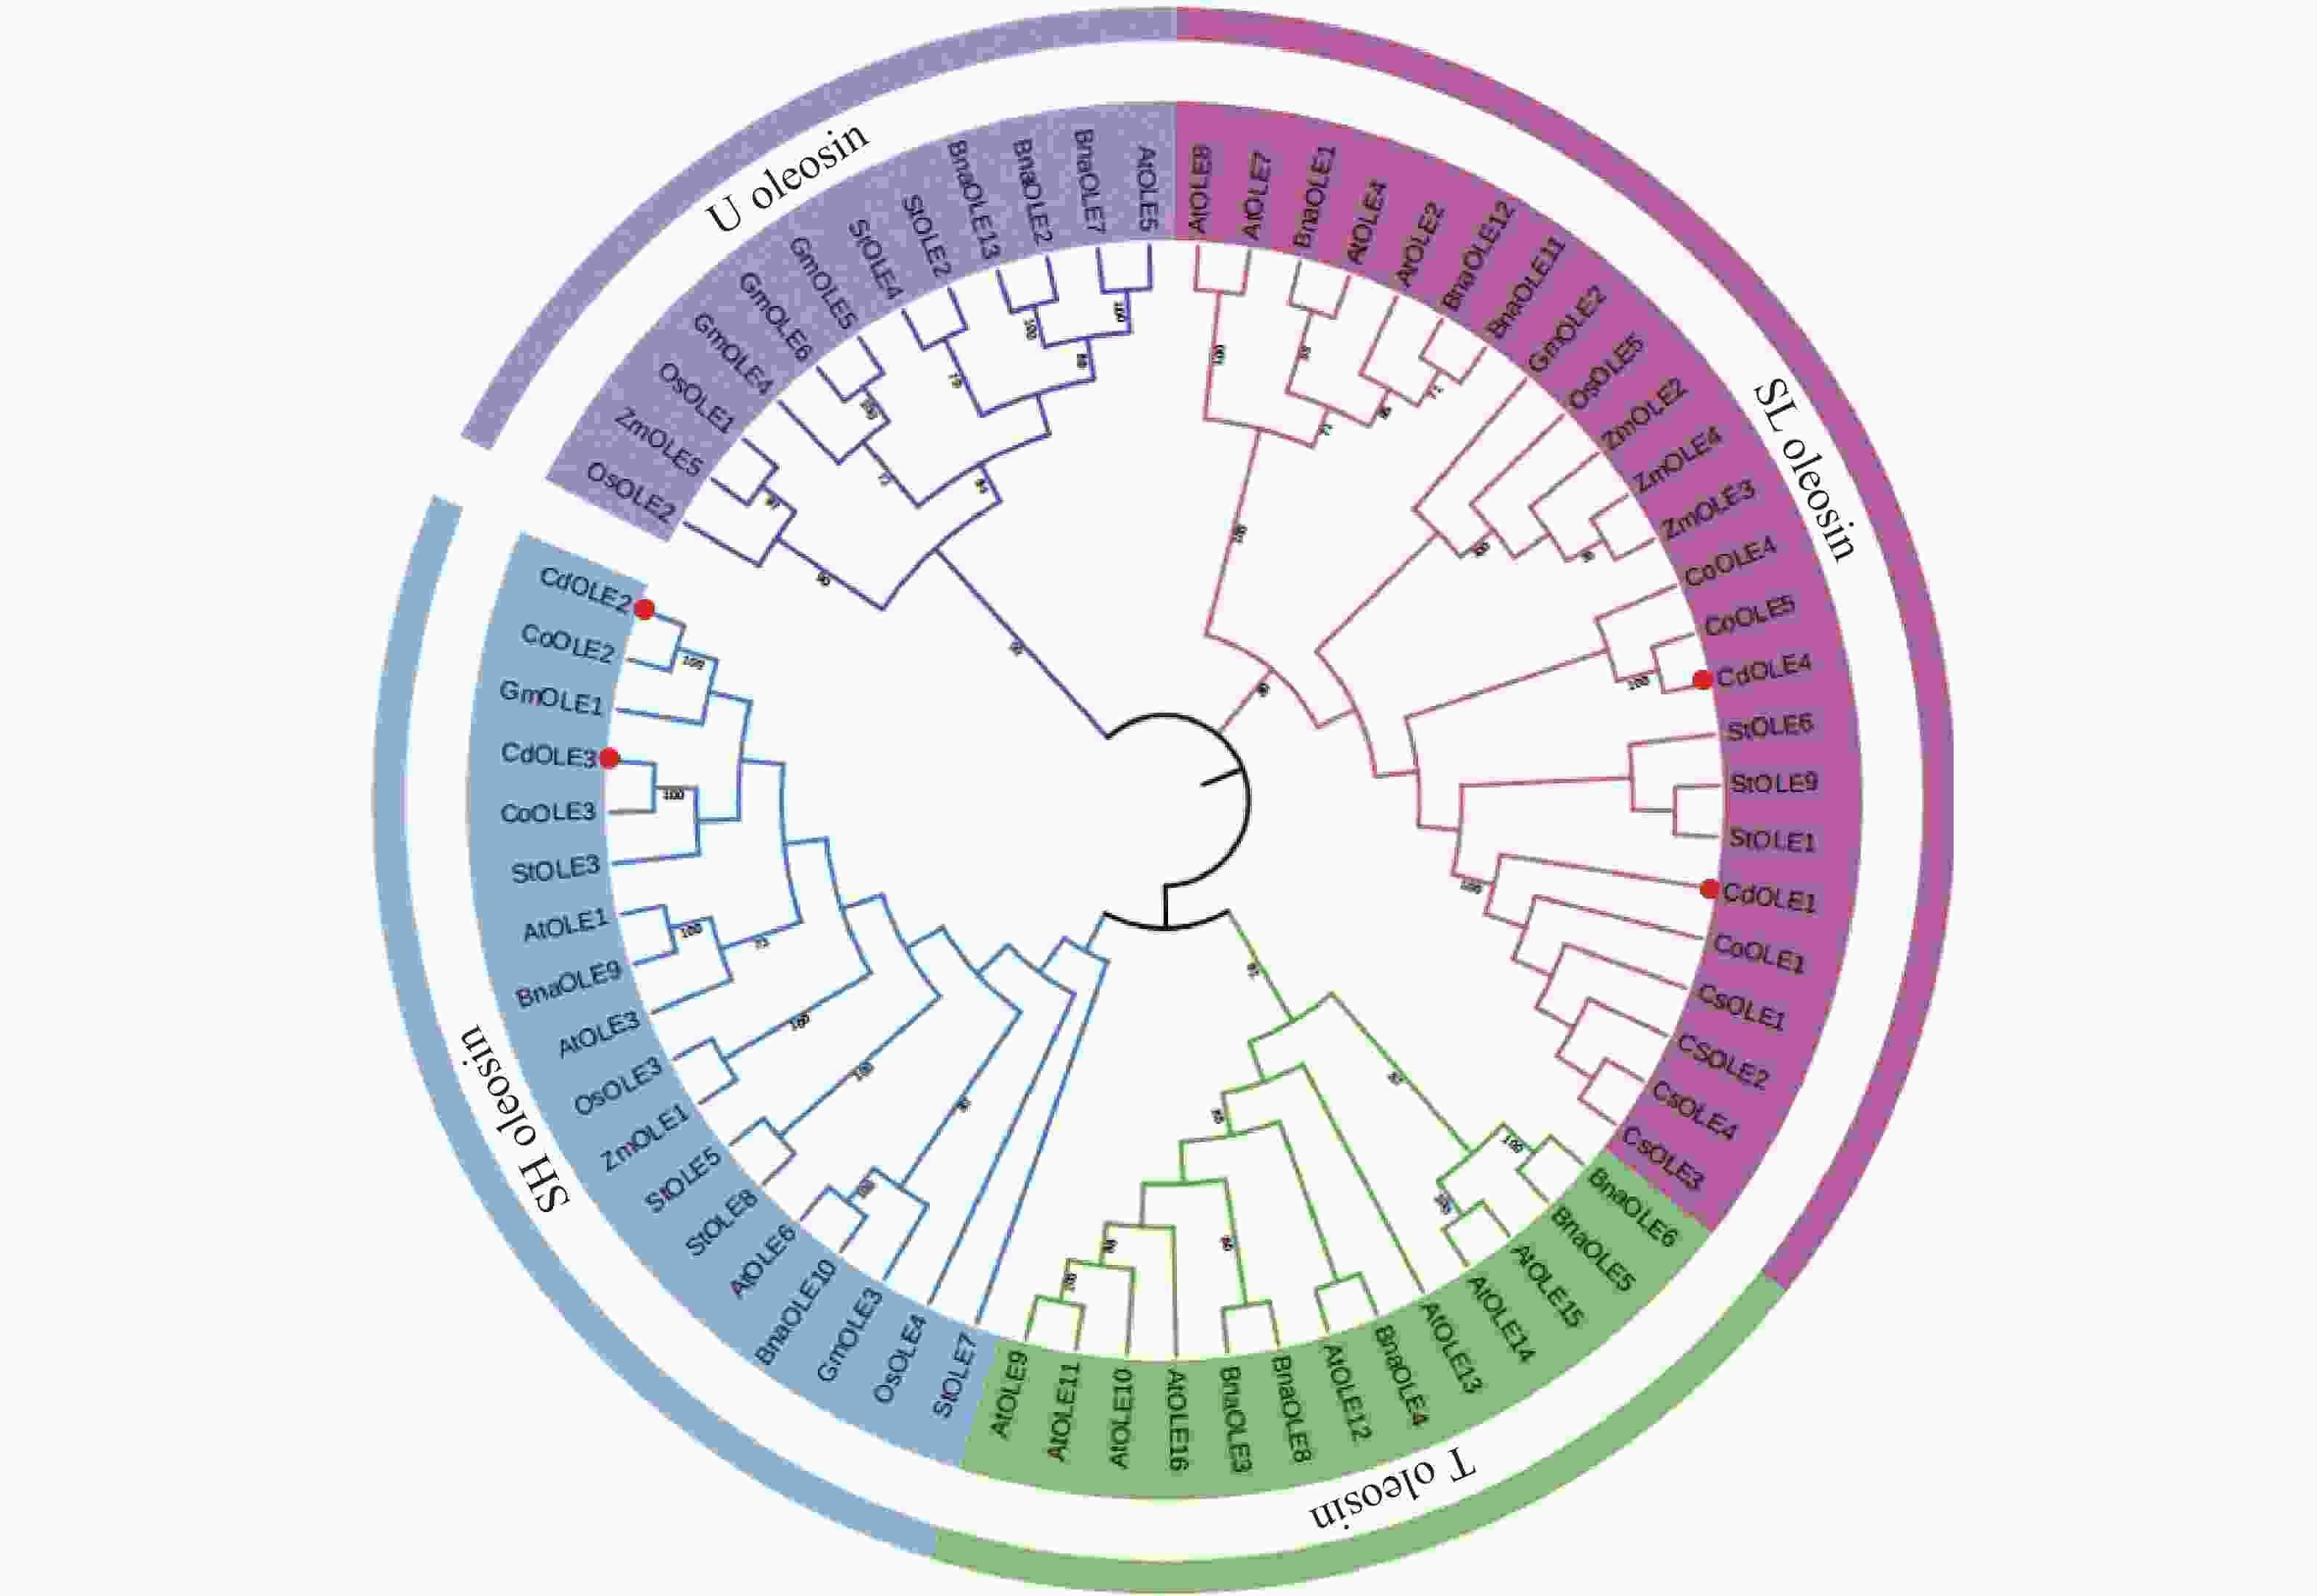
图 5 越南油茶CdOLE1-CdOLE4基因的氨基酸序列与其他物种氨基酸序列的系统进化树分析
Figure 5. Phylogenetic tree analysis of amino acid sequences of CdOLE1-CdOLE4 genes in C. drupifera and other species
-
利用ExPASy在线工具的ProtParam tool模块对越南油茶OLE基因家族基因的蛋白质理化性质进行分析,结果所示(表2),4个基因编码的氨基酸长度分别为149、142、141、155个氨基酸。等电点分别为9.84、9.03、9.3和9.69,为碱性蛋白质。不稳定指数分别为47.23、44.36、32.32和36.34,其中CdOLE1和CdOLE2不稳定指数大于40,属于不稳定蛋白;脂肪系数分别为104.12、107.38、99.79和111.49,而亲水性指数分别为0.232、0.428、0.210和0.274,属于疏水性蛋白。通过Wolfpsort在线网站预测OLE家族基因的亚细胞定位,得出CdOLE1和CdOLE4都定位在质膜,而CdOLE2和CdOLE3则分别定位在叶绿体和液泡。
表 2 CdOLE1-CdOLE4蛋白理化性质信息表
Table 2. Basic information of CdOLE1-CdOLE4 protein
基因名
Gene氨基酸数
Number of
amino acids相对分子质量/kDa
Relative molecular
mass等电点
Isoelectric
point不稳定系数
Instability
index脂肪系数
Aliphatic
index亲水性
指数
Gravy亚细胞定位
Subcellularlo-calizationCdOLE1 149 15933.68 9.84 47.23 104.12 0.232 细胞质膜 Plasma Membrane CdOLE2 142 14867.41 9.03 44.36 107.38 0.428 叶绿体 Chloroplast CdOLE3 141 14822.16 9.3 32.32 99.79 0.210 液泡 Vacuole CdOLE4 155 16114 9.69 36.34 111.49 0.274 细胞质膜 Plasma Membrane -
为了更好分析越南油茶OLE基因的蛋白结构组成,利用SOPMA在线工具对油茶OLE基因家族蛋白质进行二级结构分析,结果显示越南油茶CdOLE1、CdOLE2、CdOLE3和CdOLE4蛋白的结构主要由α-螺旋(alpha helix)、延伸链(extended strand)和无规则卷曲(random coil)构成,其中α-螺旋分别占比60.14%、58.82%、60.71%和59.09%;延伸链结构分别占比7.43%、10.29%、11.43%和9.09%;无规则卷曲结构占比32.43%、30.88%、27.86%和31.82%(图6)。
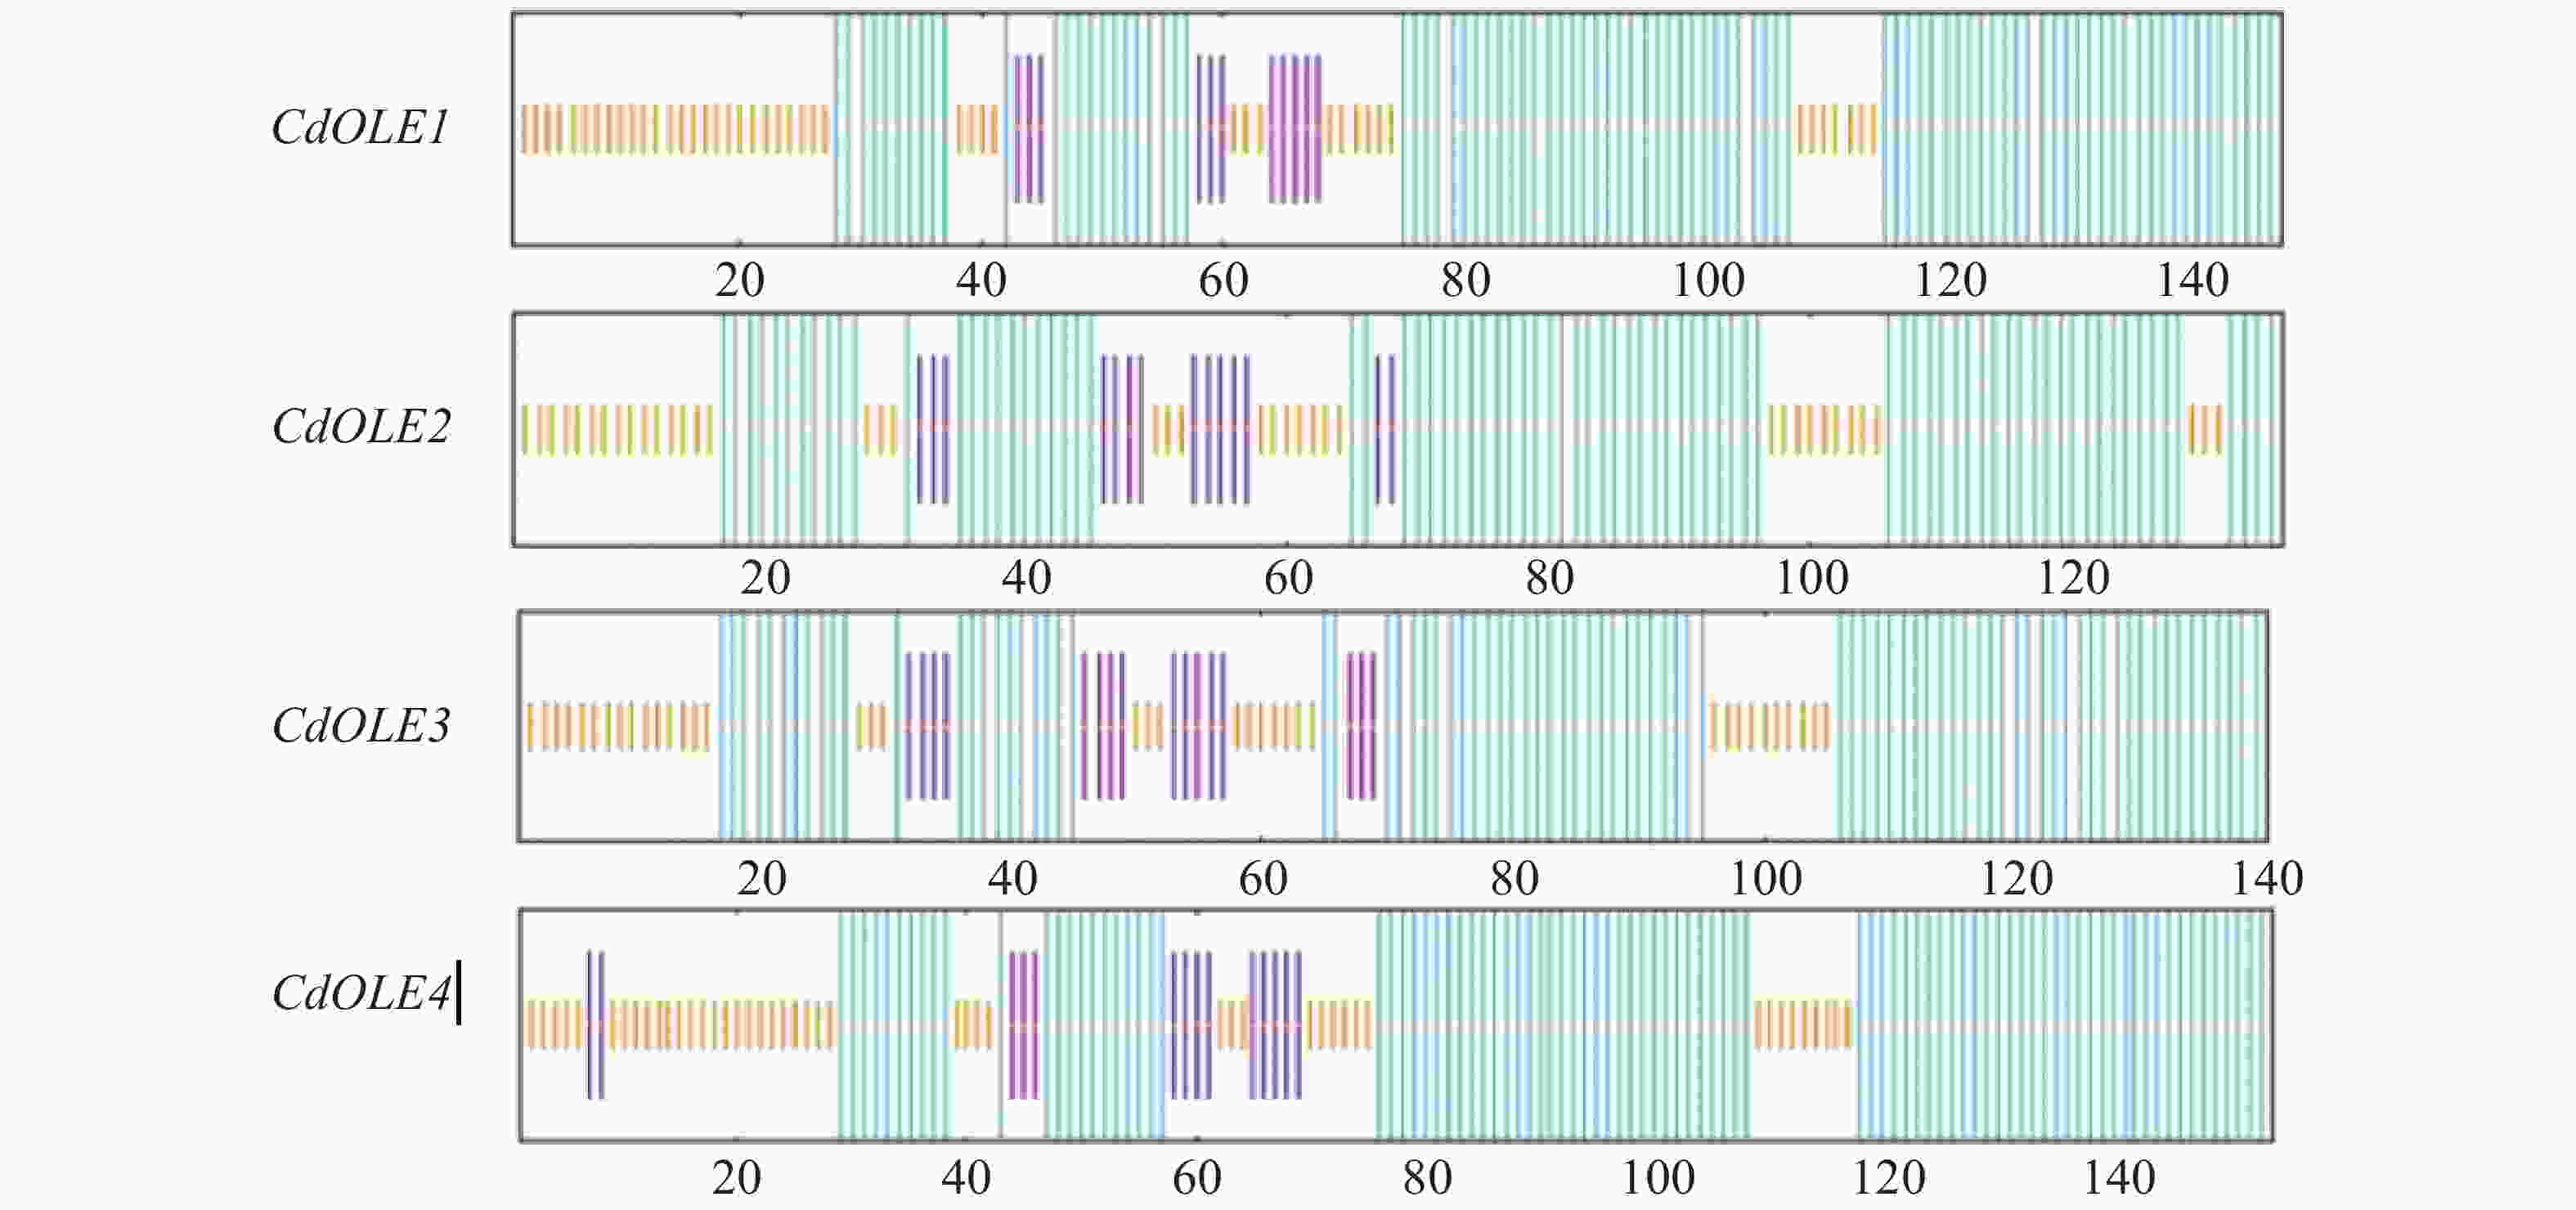
图 6 CdOLE1-CdOLE4基因的二级结构预测
Figure 6. Secondary structure prediction of CdOLE1-CdOLE4 gene
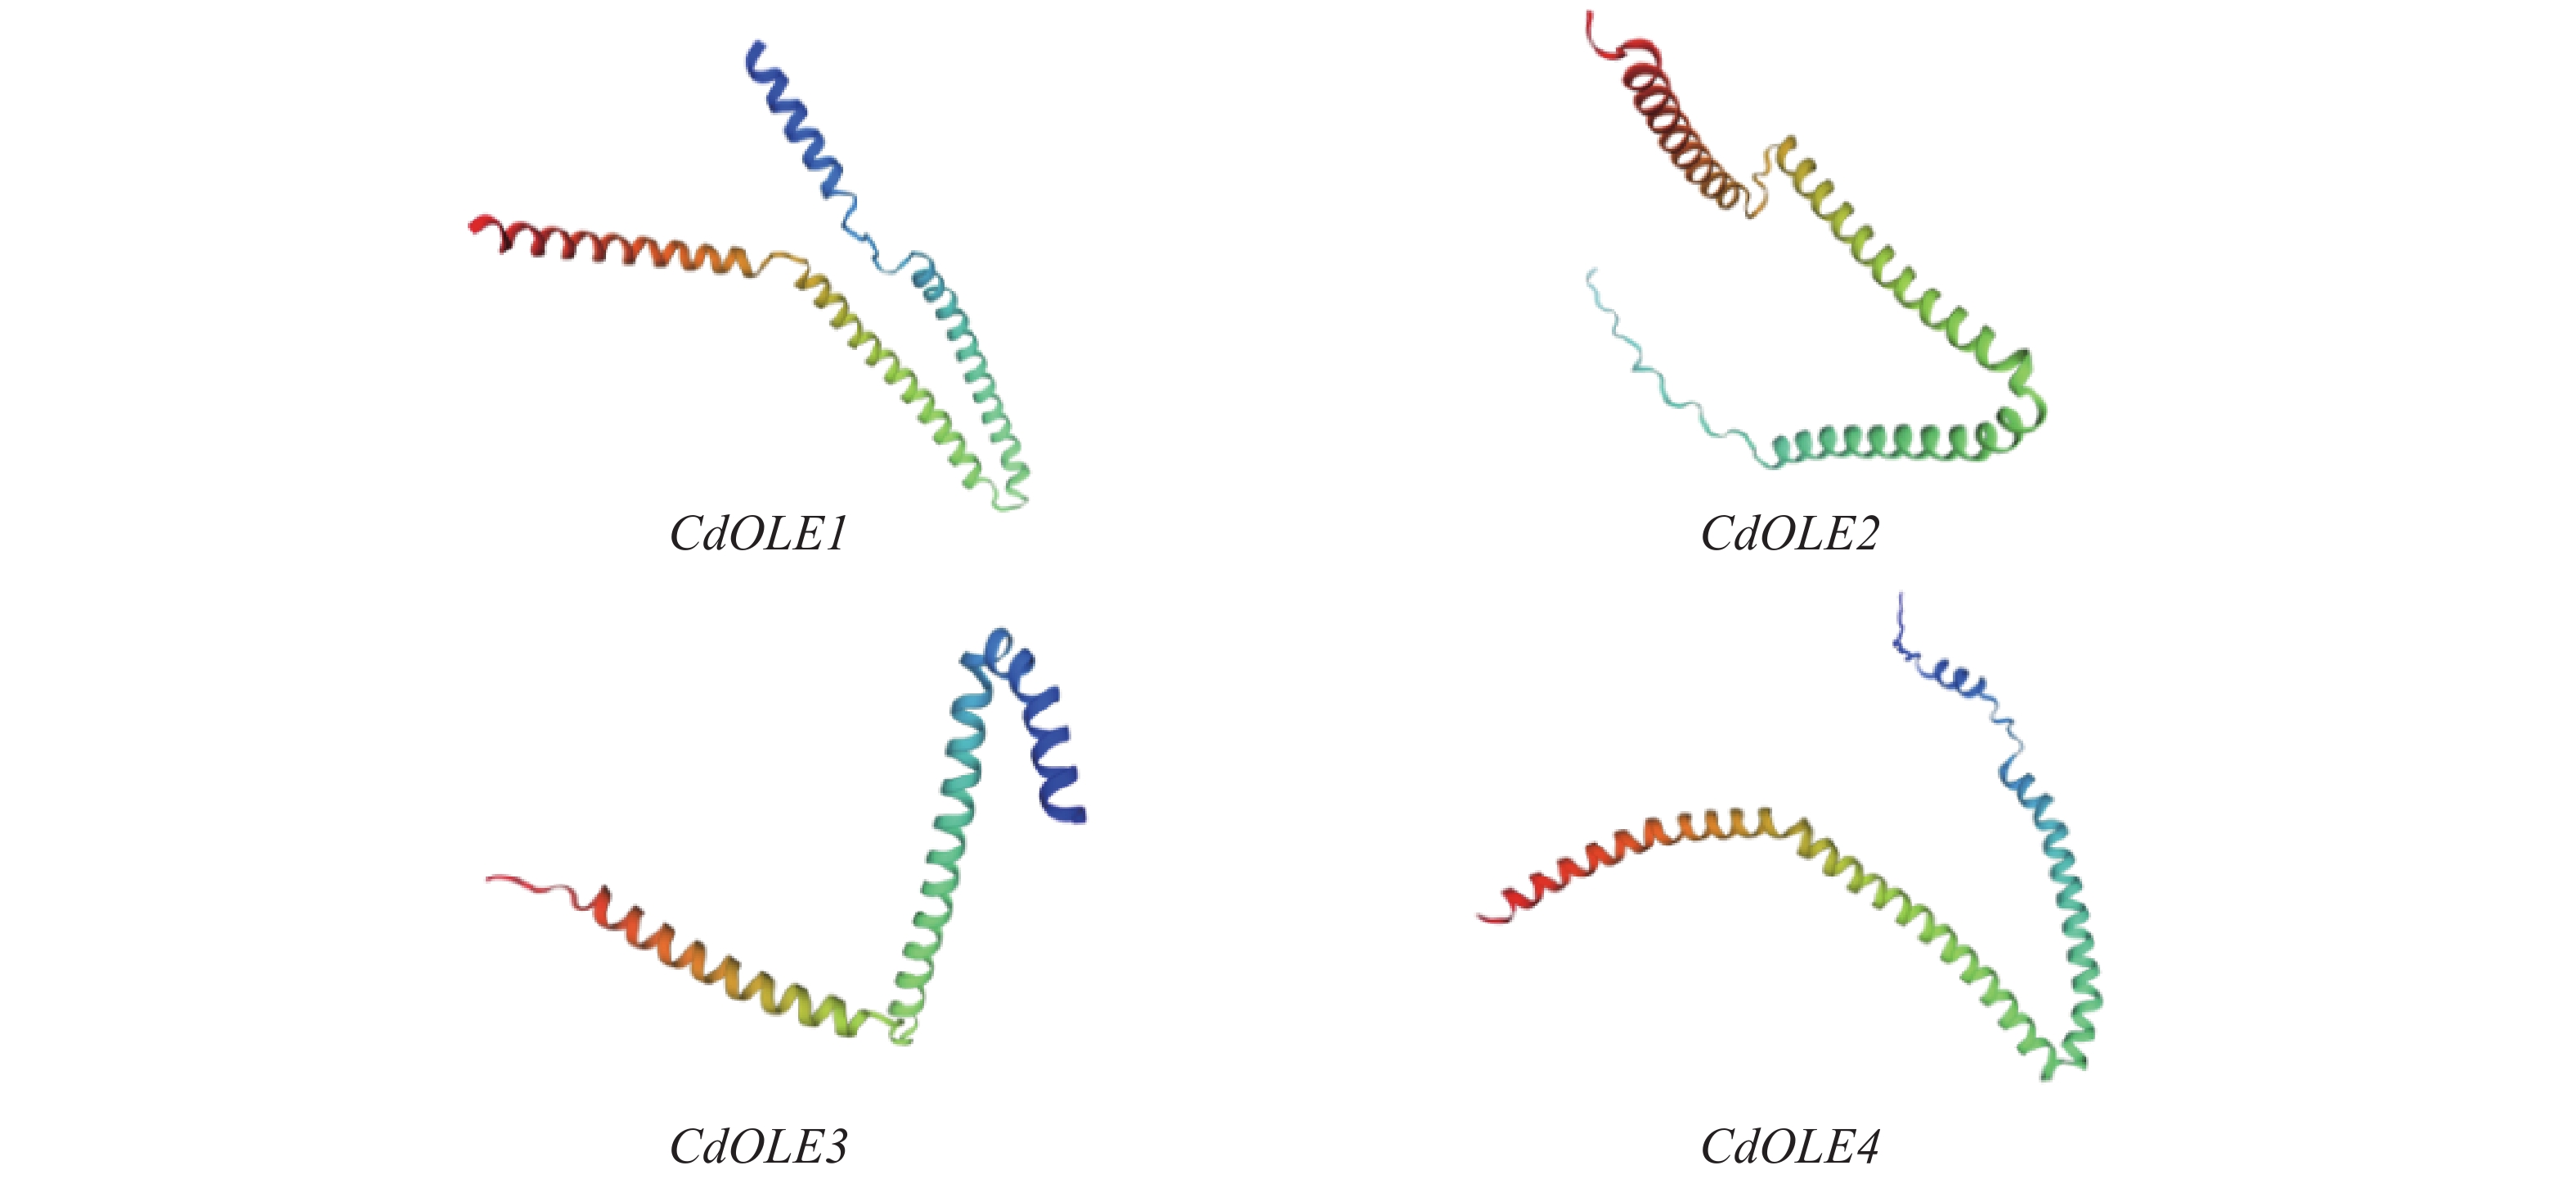
利用Expasy在线软件的SWISS-MODEL模块对越南油茶OLE基因家族蛋白质的三级结构进行在线预测,表明越南油茶Oleosin蛋白的三级结构均相似,主要空间结构是α-螺旋和无规则卷曲(图7)。
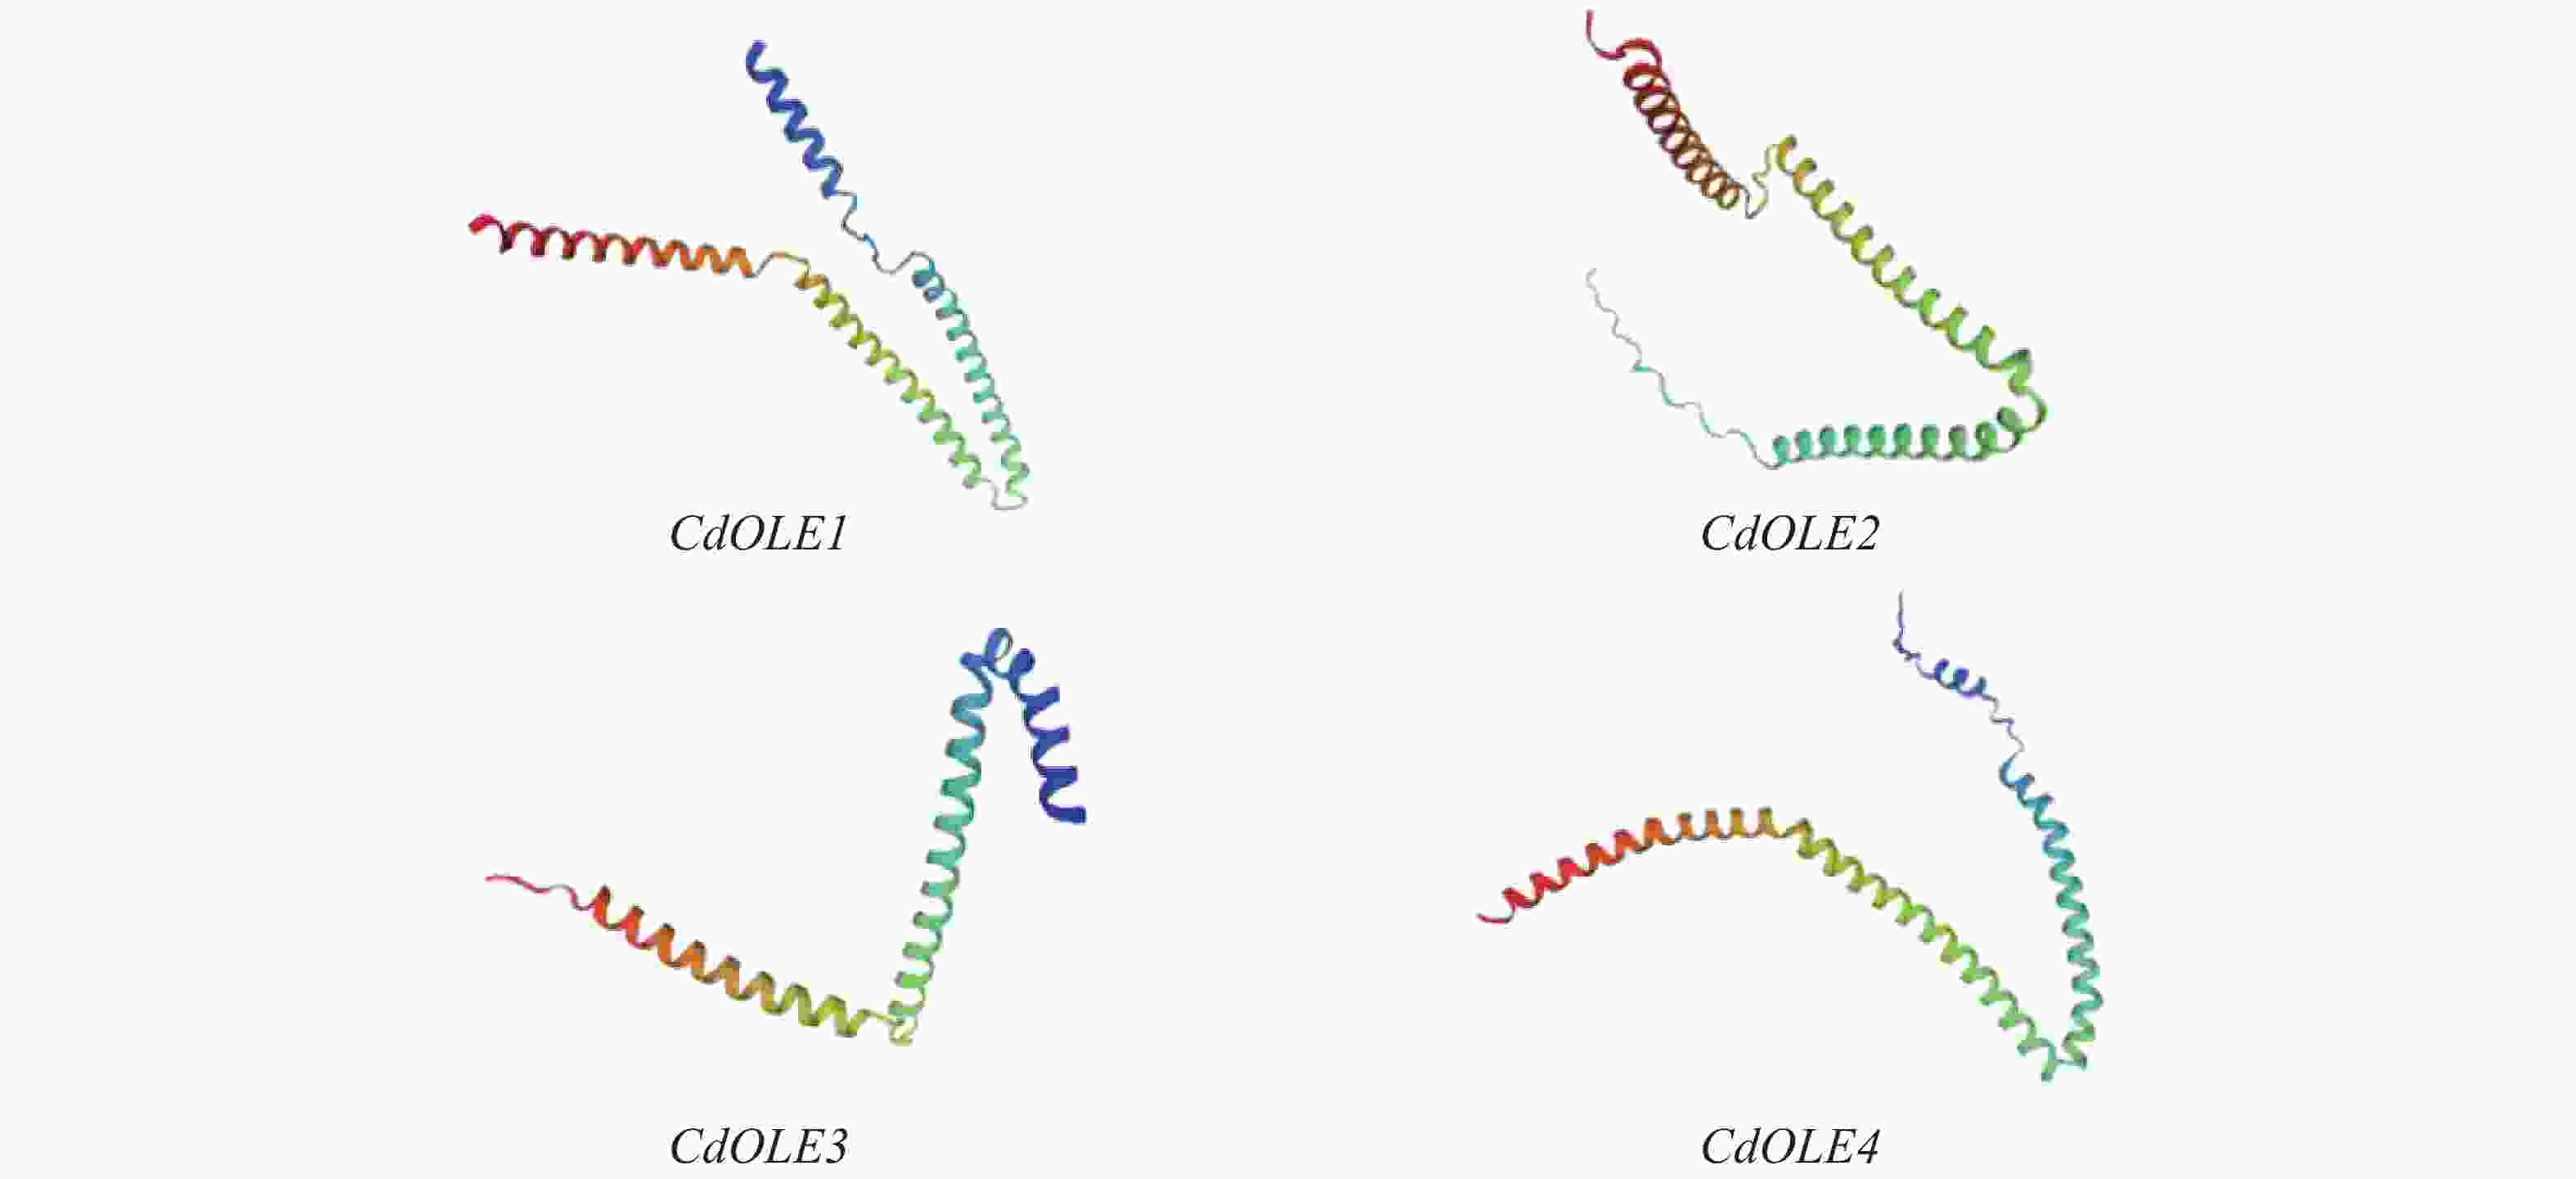
图 7 蛋白三级结构预测图
Figure 7. Prediction of protein tertiary structure
-
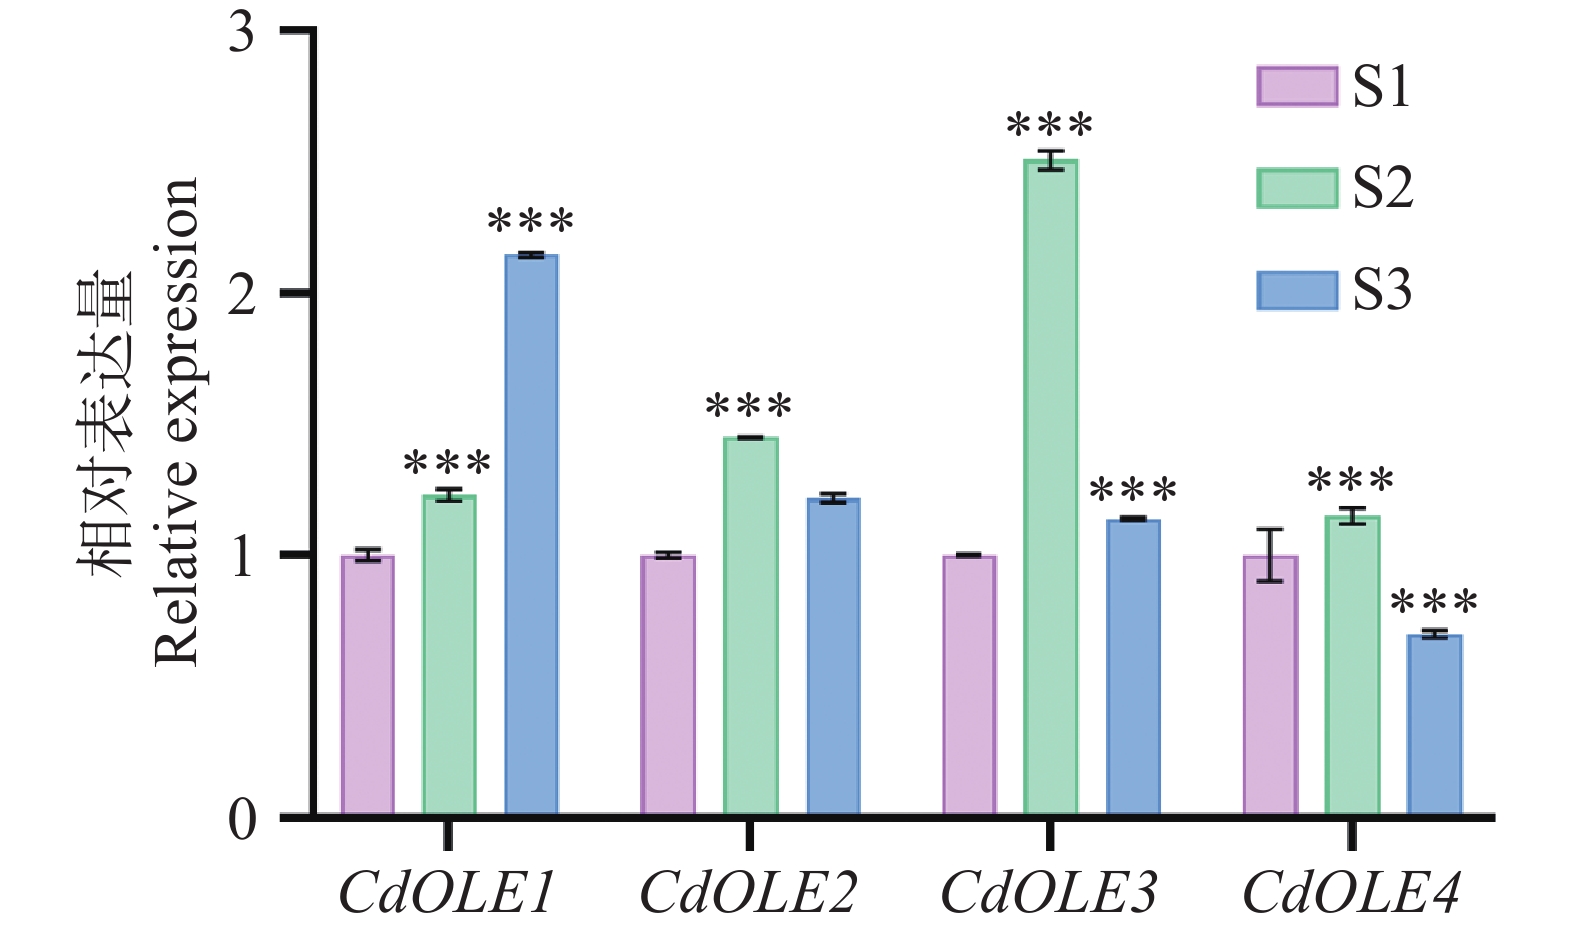
为更好的探讨OLE基因在越南油茶中的表达模式,本研究利用实时荧光定量PCR(RT-qPCR)技术,对CdOLE1、CdOLE2、CdOLE3和CdOLE4基因在果仁不同成熟期的表达特异性进行探究。以S1时期作为对照组,数据显示(图8)CdOLE3为表达量最高的基因,其峰值出现在S2时期。其次是CdOLE1基因,在S3时期出现高表达。同时CdOLE2基因与CdOLE4基因均在S2时期出现较高的表达。在S3时期CdOLE1为表达量最高的基因,其次是CdOLE2、CdOLE4基因的表达量最低。通过以上数据进行分析发现,越南油茶OLE基因家族在不同成熟期表达呈现显著的时期特异性。
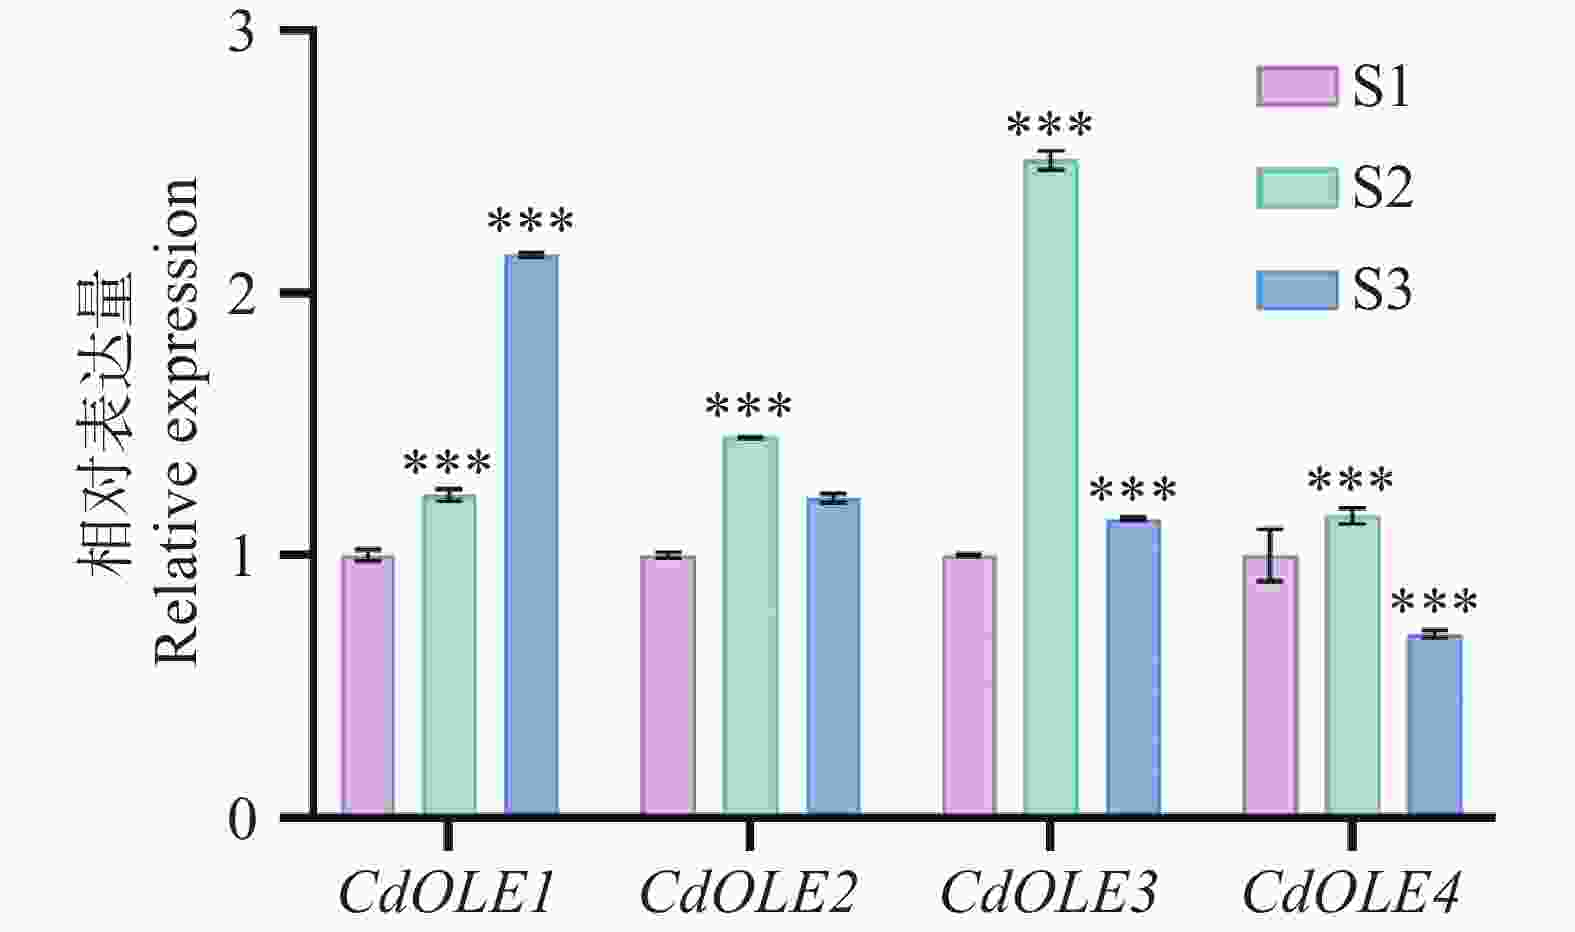
图 8 越南油茶CdOLE1~CdOLE4基因在果仁不同成熟期的表达模式
Figure 8. Expression patterns of CdOLE1-CdOLE4 gene in C. drupifera at different maturation stages
-
本研究通过对油茶基因家族克隆及生物信息学分析,首次系统解析了越南油茶(Camellia drupifera Lour.)油体蛋白OLE基因家族的结构特征、进化关系及表达模式,揭示了其在油茶油脂合成与储存中的潜在调控功能。克隆获得CdOLE1、CdOLE2、CdOLE3和CdOLE4基因,其编码的蛋白均具有典型的Oleosin保守结构域,包含中央疏水结构域及两亲性末端,与拟南芥(Arabidopsis thaliana)的Oleosin蛋白高度同源[28]系统发育分析表明,越南油茶OLE基因分布于SL和SH亚家族,与十字花科特有的T亚家族明显分化,这一结果支持了Huang等[8, 9]提出的油体蛋白进化谱系,即T谱系可能为十字花科特有,而SL和SH谱系在木本油料植物中更为保守。越南油茶OLE基因家族表现出亚家族特异性分布,并与普通油茶形成强同源聚类,表明该基因家族在演化过程中存在功能保守与分化。其中,SH亚家族则可能维持核心脂质合成功能。
蛋白理化性质分析表明,CdOLE1和CdOLE2为不稳定性碱性疏水蛋白,其亚细胞定位分别位于质膜和叶绿体,暗示其可能通过动态膜结合调控油体稳定性。而CdOLE3和CdOLE4的高α-螺旋占比(>58%)与拟南芥OLE1类似,可能通过形成β-折叠桶结构锚定油体,限制脂滴融合并维持油体大小,从而影响油脂积累效率。值得注意的是,CdOLE4与拟南芥OLE1的同源性较高,且其过表达可能通过扩大油体粒径提高油脂含量,这与甘蓝型油菜BnaOLE1转基因拟南芥的研究结果一致[13]。
表达模式分析表明,CdOLE3基因在果实成熟中期(S2期)显著高表达,且表达量最高。而CdOLE1基因在成熟后期(S3期)表达量最高,说明不同的越南油茶OLE基因家族成员呈现时序特异性表达特征,推测OLE基因在油茶油脂积累的不同阶段具有功能分工。在前期我们对越南油茶不同成熟期的果仁脂肪酸组成进行分析,结果表明,棕榈酸、油酸和亚油酸为脂肪酸的主要组分(占总脂肪酸96.0%),且在S1~S2时期含量高于S3时期[29]。时序关联性观察发现,OLE2和OLE4在S2期的特异性高表达与脂肪酸合成高峰同步,提示二者编码的油体蛋白可能通过其疏水结构域锚定于内质网衍生的磷脂单层膜,促进新生油体微滴的形成与隔离,为棕榈酸、油酸等主要脂肪酸的初期储存提供物理支撑。而OLE3基因在S2的表达量显著高于其他的基因,结合其在脂肪酸合成高峰后的表达时序特征,推测提示OLE3可能作为关键的储存巩固因子。从功能机制推论,高丰度的OLE3转录本可能驱动OLE3蛋白合成,后者通过其疏水结构域嵌入油体磷脂膜,形成致密界面层以抑制脂滴融合及脂酶水解。值得注意的是,OLE1基因在S3期高表达,这种表达时序滞后于脂肪酸合成峰期的现象,推测OLE1基因的表达动态与脂肪酸合成存在功能衔接,提示该基因可能通过介导的油体蛋白加固油体膜稳定性延长脂滴保护周期。这种OLE基因的功能分工,在油料作物中高度保守,使得油脂在油料作物中高效积累。类似地,油莎豆块茎发育中,CeOLE1、CeOLE3和CeOLE5在油脂快速累积期高表达,直接驱动三酰甘油组装,而过表达CeOLE2、CeOLE5可显著提高烟草叶片含油量[30]。在大豆中GmOLE1在低温胁迫下表达上调以保护油脂稳定性[11],而红花Ctoleosin的异源表达可显著提升转基因植物的含油量[12]。油桐种子中,VfoOLE1和VfoOLE3在发育中后期高表达,其mRNA水平与油脂积累速率呈正相关,且VfoOLE1和VfoOLE3过表达显著提升转基因植物含油量[31]。本研究进一步证实,OLE基因的时空特异性表达是调控油茶油脂合成的重要分子机制,其表达模式与油体发育及脂质积累动态密切相关。
综上,本研究不仅为解析油茶油脂代谢的分子机制提供了关键基因资源,也为利用基因编辑或过表达技术培育高油型油茶品种奠定了理论基础。未来研究可聚焦于CdOLE1和CdOLE3基因的功能验证及其与油脂合成关键酶(如DGAT、PDAT)的协同调控网络,同时结合多组学数据挖掘油茶油脂合成的全局调控因子。
越南油茶油体蛋白基因家族的克隆、生物信息学分析及表达模式研究
DOI: 10.15886/j.cnki.rdswxb.20250073
 CSTR: 32425.14.j.cnki.rdswxb.20250073
Cloning, bioinformatics analysis and expression pattern of oil body protein gene in Camellia drupifera Lour.
-
摘要: 油茶(Camellia spp.)作为重要木本油料植物,其油脂高效积累与油体蛋白(oleosin,OLE)功能密切相关。本研究基于越南油茶(Camellia drupifera Lour.)的转录组数据,克隆4个OLE基因(CdOLE1-CdOLE4),并通过生物信息学及表达模式分析其特性。序列分析表明,越南油茶的OLE基因均含Oleosin保守结构域,编码碱性疏水蛋白;蛋白结构预测显示α-螺旋为其主要二级结构,支持脂滴锚定功能。系统发育分析显示其与山茶及拟南芥等同源蛋白亲缘性较高。实时荧光定量PCR表明,越南油茶OLE基因在果实成熟期(8~10月)呈现时序表达特异性,其中CdOLE1和CdOLE3在S3和S2时期显著高表达、CdOLE2和CdOLE4在S2时期的表达量高于S3时期,说明越南油茶OLE基因参与油体稳定性调控。本研究首次在越南油茶中解析OLE基因家族,为油脂合成机制研究及高油品种选育提供理论依据。Abstract: As an important woody oil plant, Camellia spp. has a close relationship between its efficient oil accumulation and the function of oleosin (OLE) proteins. Four OLE genes (CdOLE1-CdOLE4) were cloned based on the transcriptome data of C. drupifera, and their characteristics were analyzed through bioinformatics methods and expression pattern analysis. Sequence analysis showed that all OLE genes in C. drupifera contained the conserved oleosin domain and encoded basic hydrophobic proteins. Protein structure prediction indicated that the α-helix was the main secondary structure, which supports the lipid droplet anchoring function. Phylogenetic analysis revealed that these genes had a high degree of genetic affinity with homologous proteins in Camellia and Arabidopsis thaliana. Real-time quantitative polymerase chain reaction (qRT-PCR) results indicated that the OLE genes in C. drupifera exhibited specific temporal expression patterns during the fruit maturation stages (from August to October or S1 to S3). Specifically, CdOLE1 and CdOLE3 were significantly highly expressed during the S3 and S2 stages, respectively, while the expression levels of CdOLE2 and CdOLE4 were higher in the S2 stage than in the S3 stage. These findings suggest that the OLE genes in C. drupifera are involved in the regulation of oil body stability. This study is the first to comprehensively analyze the OLE gene family in C. drupifera, providing a theoretical basis for further research on the mechanism of oil synthesis and the breeding of high-oil-yielding varieties.
-
Key words:
- Camellia drupifera Lour. /
- OLE gene /
- gene cloning /
- bioinformatics analysis /
- expression analysis
-
图 2 越南油茶CdOLE1, CdOLE2, CdOLE3和CdOLE4基因PCR凝胶电泳图
注:1-4:CdOLE1-4基因PCR扩增产物电泳图。
Fig. 2 PCR gel electrophoresis of CdOLE1, CdOLE2, CdOLE3 and CdOLE4 genes in C. drupifera
Note: 1-4: Electrophoretogram of CdOLEl-CdOLE4 PCRproduct.
图 3 蛋白的保守结构域预测
注:从上到下分别为CdOLE1-CdOLE4的保守结构域。
Fig. 3 Conserved domain prediction of proteins
Note: From top to bottom are the conserved domains of CdOLE1-CdOLE4.
图 4 越南油茶CdOLE1-CdOLE4基因与其他物种氨基酸序列比对
注:白色背景的黑色字母表示相同氨基酸;蓝色背景的黑色字母表示相似氨基酸;红色框里的代表保守结构域。
Fig. 4 Alignments of amino acid sequences of CdOLE1-CdOLE4 gene in C. drupifera with those in other species
Note: White letters on a black background indicate the same amino acid; black letters on a blue background indicate similar amino acids; the red boxes represent conservative domain.
图 5 越南油茶CdOLE1-CdOLE4基因的氨基酸序列与其他物种氨基酸序列的系统进化树分析
Fig. 5 Phylogenetic tree analysis of amino acid sequences of CdOLE1-CdOLE4 genes in C. drupifera and other species
图 6 CdOLE1-CdOLE4基因的二级结构预测
Fig. 6 Secondary structure prediction of CdOLE1-CdOLE4 gene
图 8 越南油茶CdOLE1~CdOLE4基因在果仁不同成熟期的表达模式
注:S1:8月;S2:9月;S3:10月;***表示具有显著性差异(P<0.001)。
Fig. 8 Expression patterns of CdOLE1-CdOLE4 gene in C. drupifera at different maturation stages
Note: S1: August; S2: September; S3: October; the asterisk symbol (***) denotes a statistically significant difference at the level of P < 0.001.
表 1 本研究中使用到的引物信息
Table 1 Information regarding the primers used in this study
引物名称
Primer name引物序列(5'—3')
Primer sequence (5'—3')用途
UsesCdOLE1-F TGTTCCCTCCCTCCCTCTAC CdOLE1编码区克隆 CdOLE1-R TTATGTTCTGACAGATTCCTGGG CdOLE2-F CAAGTTCTCAACACGTGCCAC CdOLE2编码区克隆 CdOLE2-R TTACCATGCCTGTTGCGAACC CdOLE3-F GGTTTGACTCTGGCCGGGA CdOLE3编码区克隆 CdOLE3-R TCAAGAAGCTTGTGAACCACTG CdOLE4-F TCTTCTCATTCTAACAATCCAT CdOLE4编码区克隆 CdOLE4-R CACATTTCCCATTTTCACATA CdOLE1-QF GCCGCAATAACGGAGTGTC qPCR CdOLE1-QR GCTCAGCCCTGTCCTTCATC CdOLE2-QF CGACGGCGGTTTGAAGACT qPCR CdOLE2-QR GGTTCCGACGAGGGTGATT CdOLE3-QF GTGTTGTCGTGGATTTACCG qPCR CdOLE3-QR GCCTTACTCGCCAGTTTCA CdOLE4-QF AATCACCGCTTTGTCATCTC qPCR CdOLE4-QR GCCCACTTCCCTTGTCTTG GAPDH-F TTGGCATCGTTGAGGGTCT qPCR GAPDH-R CAGTGGGAACACGGAAAGC  下载: 导出CSV
表 2 CdOLE1-CdOLE4蛋白理化性质信息表
Table 2 Basic information of CdOLE1-CdOLE4 protein
基因名
Gene氨基酸数
Number of
amino acids相对分子质量/kDa
Relative molecular
mass等电点
Isoelectric
point不稳定系数
Instability
index脂肪系数
Aliphatic
index亲水性
指数
Gravy亚细胞定位
Subcellularlo-calizationCdOLE1 149 15933.68 9.84 47.23 104.12 0.232 细胞质膜 Plasma Membrane CdOLE2 142 14867.41 9.03 44.36 107.38 0.428 叶绿体 Chloroplast CdOLE3 141 14822.16 9.3 32.32 99.79 0.210 液泡 Vacuole CdOLE4 155 16114 9.69 36.34 111.49 0.274 细胞质膜 Plasma Membrane
下载: 导出CSV
-
[1] Pasaribu B, Fu J H, Jiang P L. Identification and characterization of caleosin in Cycas revoluta pollen[J]. Plant Signaling & Behavior, 2020, 15(8): 1779486. https://doi.org/10.1080/15592324.2020.1779486 doi: 10.1080/15592324.2020.1779486 [2] 陈镇, 李秀丽, 陈法志. 植物油体合成及功能研究进展[J]. 世界科技研究与发展, 2021, 43(2): 182−191. https://doi.org/10.16507/j.issn.1006-6055.2020.12.016 doi: 10.16507/j.issn.1006-6055.2020.12.016 [3] Ji H Y, Liu D T, Yang Z L. High oil accumulation in tuber of yellow nutsedge compared to purple nutsedge is associated with more abundant expression of genes involved in fatty acid synthesis and triacylglycerol storage[J]. Biotechnology for Biofuels, 2021, 14(1): 54. https://doi.org/10.1186/s13068-021-01909-x doi: 10.1186/s13068-021-01909-x [4] Tzen J T, Lie G C, Huang A H. Characterization of the charged components and their topology on the surface of plant seed oil bodies[J]. Journal of Biological Chemistry, 1992, 267(22): 15626−15634 https://doi.org/10.1016/s0021-9258(19)49582-3 doi: 10.1016/s0021-9258(19)49582-3 [5] Liu C, Hao L H, Chen F S, et al. The mechanism of extraction of peanut protein and oil bodies by enzymatic hydrolysis of the cell wall[J]. Journal of Oleo Science, 2020, 69(11): 1467−1479. https://doi.org/10.5650/jos.ess20148 doi: 10.5650/jos.ess20148 [6] 孙禹凡, 齐宝坤, 钟明明, 等. 超声复合碱处理对Oleosin蛋白结构及功能特性的影响[J]. 食品科学, 2020, 41(7): 79−85. https://doi.org/10.7506/spkx1002-6630-20190408-075 doi: 10.7506/spkx1002-6630-20190408-075 [7] Peng C C, Lin I P, Lin C K, et al. Size and stability of reconstituted sesame oil bodies[J]. Biotechnology Progress, 2003, 19(5): 1623−1626. https://doi.org/10.1021/bp034129z doi: 10.1021/bp034129z [8] Huang M D, Huang A H C. Bioinformatics reveal five lineages of oleosins and the mechanism of lineage evolution related to structure/function from green algae to seed plants[J]. Plant Physiology, 2015, 169(1): 453−470. https://doi.org/10.1104/pp.15.00634 doi: 10.1104/pp.15.00634 [9] Chen K, Yin Y T, Liu S, et al. Genome-wide identification and functional analysis of oleosin genes in Brassica napus L.[J]. BMC Plant Biology, 2019, 19(1): 294. https://doi.org/10.1186/s12870-019-1891-y doi: 10.1186/s12870-019-1891-y [10] Miquel M, Trigui G, D’andréa S, et al. Specialization of oleosins in oil body dynamics during seed development in Arabidopsis seeds[J]. Plant Physiology, 2014, 164(4): 1866−1878. https://doi.org/10.1104/pp.113.233262 doi: 10.1104/pp.113.233262 [11] 郭新亚, 章文华, 林峰. 大豆油体蛋白基因GmOLE2的功能分析[J]. 南京农业大学学报, 2021, 44(3): 477−486. https://doi.org/10.7685/jnau.202008027 doi: 10.7685/jnau.202008027 [12] Lu Y B, Chi M H, Li L X, et al. Genome-wide identification, expression profiling, and functional validation of Oleosin gene family in Carthamus tinctorius L.[J]. Frontiers in Plant Science, 2018, 9: 1393. https://doi.org/10.3389/fpls.2018.01393 doi: 10.3389/fpls.2018.01393 [13] 王杰利. 甘蓝型油菜过量表达BnOLE引起种子和器官变大的研究[D]. 镇江: 江苏大学, 2016. [14] Wen Y, Su S C, Ma L Y, et al. Effects of gibberellic acid on photosynthesis and endogenous hormones of Camellia oleifera Abel. in 1st and 6th leaves[J]. Journal of Forest Research, 2018, 23(5): 309−317. https://doi.org/10.1080/13416979.2018.1512394 doi: 10.1080/13416979.2018.1512394 [15] Qu X J, Wang H, Chen M, et al. Drought stress–induced physiological and metabolic changes in leaves of two oil tea cultivars[J]. Journal of the American Society for Horticultural Science, 2019, 144(6): 439−447. https://doi.org/10.21273/JASHS04775-19 doi: 10.21273/JASHS04775-19 [16] Wu L L, Li J A, Li Z, et al. Transcriptomic analyses of Camellia oleifera ‘Huaxin’ leaf reveal candidate genes related to long-term cold stress[J]. International Journal of Molecular Sciences, 2020, 21(3): 846. https://doi.org/10.3390/ijms21030846 doi: 10.3390/ijms21030846 [17] Wen Y, Su S C, Ma L Y, et al. Effects of canopy microclimate on fruit yield and quality of Camellia oleifera[J]. Scientia Horticulturae, 2018, 235: 132−141. https://doi.org/10.1016/j.scienta.2017.12.042 doi: 10.1016/j.scienta.2017.12.042 [18] 严和琴, 郑蔚, 代佳妮, 等. 基于SRAP分子标记的海南油茶品种遗传多样性分析[J]. 分子植物育种, 2022, 20(6): 1901−1908. https://doi.org/10.13271/j.mpb.020.001901 doi: 10.13271/j.mpb.020.001901 [19] Liu X, Xu T, Dong X F, et al. The role of gibberellins and auxin on the tomato cell layers in pericarp via the expression of ARFs regulated by miRNAs in fruit set[J]. Acta Physiologiae Plantarum, 2016, 38(3): 77. https://doi.org/10.1007/s11738-016-2091-0 doi: 10.1007/s11738-016-2091-0 [20] Zhu G F, Liu H, Xie Y C, et al. Postharvest processing and storage methods for Camellia oleifera seeds[J]. Food Reviews International, 2020, 36(4): 319−339. https://doi.org/10.1080/87559129.2019.1649688 doi: 10.1080/87559129.2019.1649688 [21] 叶美金, 杨玉敏, 冯鸿, 等. 分光光度法测定油茶籽油中总三萜含量的前处理方法研究[J]. 中国油脂, 2023, 48(4): 140−142. https://doi.org/10.19902/j.cnki.zgyz.1003-7969.220485 doi: 10.19902/j.cnki.zgyz.1003-7969.220485 [22] 孔庆博, 姜惠, 郭春雨, 等. 油茶主要化学成分及药理活性研究进展[J]. 中国粮油学报, 2022, 37(4): 194−202. https://doi.org/10.3969/j.issn.1003-0174.2022.04.029 doi: 10.3969/j.issn.1003-0174.2022.04.029 [23] 谭晓风. 油茶分子育种研究进展[J]. 中南林业科技大学学报, 2023, 43(1): 1−24. https://doi.org/10.14067/j.cnki.1673-923x.2023.01.001 doi: 10.14067/j.cnki.1673-923x.2023.01.001 [24] 杨睿. 油茶CoSQS启动子及其与CoWRKY转录因子互作初步研究[D]. 长沙: 中南林业科技大学, 2021. doi: 10.27662/d.cnki.gznlc.2021.000850 [25] 张军锋, 吴友根, 胡新文. 油茶化学成分及对肿瘤细胞抑制活性研究进展[J]. 天然产物研究与开发, 2018, 30(4): 708−716. https://doi.org/10.16333/j.1001-6880.2018.4.028 doi: 10.16333/j.1001-6880.2018.4.028 [26] Chen J, Guo Y J, Hu X W, et al. Comparison of the chloroplast genome sequences of 13 oil-tea camellia samples and identification of an undetermined oil-tea camellia species from Hainan Province[J]. Frontiers in Plant Science, 2022, 12: 798581. https://doi.org/10.3389/fpls.2021.798581 doi: 10.3389/fpls.2021.798581 [27] Zhang L, Shi Y, Gong W F, et al. The tetraploid Camellia oleifera genome provides insights into evolution, agronomic traits, and genetic architecture of oil Camellia plants[J]. Cell Reports, 2024, 43(11): 114902. https://doi.org/10.1016/j.celrep.2024.114902 doi: 10.1016/j.celrep.2024.114902 [28] Shimada T L, Shimada T, Takahashi H, et al. A novel role for oleosins in freezing tolerance of oilseeds in Arabidopsis thaliana[J]. The Plant Journal, 2008, 55(5): 798−809. https://doi.org/10.1111/j.1365-313x.2008.03553.x doi: 10.1111/j.1365-313x.2008.03553.x [29] Ye Z C, Yu J, Yan W P, et al. Integrative iTRAQ-based proteomic and transcriptomic analysis reveals the accumulation patterns of key metabolites associated with oil quality during seed ripening of Camellia oleifera[J]. Horticulture Research, 2021, 8: 157. https://doi.org/10.1038/s41438-021-00591-2 doi: 10.1038/s41438-021-00591-2 [30] 张中甜. 油莎豆油体蛋白家族的全基因组鉴定与功能分析[D]. 武汉: 华中农业大学, 2023. doi: 10.27158/d.cnki.ghznu.2023.001429 [31] Cao H P, Zhang L, Tan X F, et al. Identification, classification and differential expression of Oleosin genes in Tung tree (Vernicia fordii)[J]. PLoS One, 2014, 9(2): e88409. https://doi.org/10.1371/journal.pone.0088409 doi: 10.1371/journal.pone.0088409 -

 点击查看大图
计量
- 文章访问数: 9
- HTML全文浏览量: 7
- PDF下载量: 0
- 被引次数: 0
