

-
辣椒疫霉菌(Phytophthora capsici)作为一种具有广泛侵染性且致病性较强的植物病原卵菌,可对茄科、葫芦科等多种作物进行侵染,进而引发疫病,对作物的产量与质量造成严重影响,导致重大经济损失[1]。当前,针对辣椒疫霉菌的防治举措主要涵盖选用抗病品种、施用化学药剂以及实施农艺管理等方面。然而,鉴于病原菌的遗传多样性以及抗药性的增强,现有的防治效果较为有限[2]。故而,深入探究其致病机制与调控因子,对于研发新型防控策略具有至关重要的意义。
植物细胞壁由纤维素、半纤维素、果胶及其他多糖构成,是抵御病原菌入侵的坚实物理屏障[3]。在病原菌与植物相互作用进程中,病原菌通过分泌多种细胞壁降解酶(cell wall degrading enzymes,CWDEs)对植物细胞壁进行降解,进而与寄主构建寄生关系,并引发病害[4-9]。糖苷水解酶(glycoside hydrolases,GHs)属于CWDEs,且分布范围广泛。在碳水化合物活性酶数据库(Carbohydrate - Active enZYmes Database,CAZy,www.cazy.org)中,基于蛋白质的序列特征以及空间结构的相似性[10],将糖苷水解酶划分为189个家族。糖苷水解酶家族3(glycoside hydrolase family 3, GH3)作为GHs的一个重要家族,广泛存在于自然界的生物体内,在碳水化合物的代谢与分解过程中发挥关键作用[11-12]。该基因家族的酶活性具有多样性,能够催化不同底物的水解[13-15]反应,具备较高的功能多样性与研究价值[16-18]。尽管大多数GHs的确切作用仍不明确,但已有研究显示,GH3基因家族中的诸多基因编码蛋白是重要的毒力因子,可推动病原菌成功侵染植物,并通过细胞壁释放的碳水化合物为病原菌提供营养[19-20]。众多病原菌通过分泌GH3中的β-葡萄糖苷酶来降解植物细胞壁,从而实现对植物的侵染。蛋白质组学分析表明,致病疫霉菌(P. infestans)的附着胞附着于叶面上时会分泌细胞壁降解酶,以助病原菌穿透叶表面,进而引发病害[21-23]。稻瘟病菌(Magnaporthe oryzae)中的β-葡萄糖苷酶MoCel3A和MoCel3B与内切葡聚糖酶协同作用,降解植物细胞壁多糖,致使植物遭受病菌侵染[24]。黄孢原毛平革菌(Phanerochaete chrysosporium)分泌的β-木糖苷酶以及里氏木霉(Trichoderma reesei)分泌的β-木糖苷酶和木聚糖酶,能够有效降解植物细胞壁中的木聚糖[25-26]。GH3基因家族主要负责编码胞外β-葡萄糖苷酶和β-木糖苷酶,是纤维素和半纤维素降解途径中的关键酶类,在植物细胞壁降解过程中发挥核心作用。
目前,辣椒疫霉菌中关于GH3基因家族成员的相关基因功能研究相对较少。本研究通过分析GH3基因家族成员的蛋白保守结构域,在辣椒疫霉菌LT1534菌株中筛选出GH3基因家族成员,并通过LT1534菌株侵染辣椒、四季豆、蚕豆、番茄、南瓜、西瓜等不同时段的互作转录组,分析GH3基因家族中表达上调的基因,再利用CRISPR-Cas9基因编辑技术敲除侵染过程中上调幅度较高的PcGH3-12,评价其在辣椒疫霉生长、繁殖及致病中的功能。这不仅有助于揭示病原菌与植物互作的分子机制,也有望以该基因为靶标位点开发新型杀菌剂。
-
辣椒疫霉菌LT1534菌株、ΔPcGH3-12突变体菌株、大肠杆菌(Escherichia coli)DH5α菌株,以及CRISPR - Cas9体系相关载体的质粒(pYF515和pBluescript SK Ⅱ +)等,均保存于海南大学热带农林学院生物灾害绿色防控教育部重点实验室。
-
TA培养基(用于疫霉培养):将番茄汁用纱布过滤至300 mL,添加3.5 g碳酸钙后,加入去离子水定容至3 L,每100 mL添加1.5 g琼脂粉,采用高压蒸汽灭菌法,于121℃灭菌20 min。
-
辣椒疫霉菌野生型LT1534及ΔPcGH3-12突变体菌株被置于10%固体TA斜面培养基中,于10~12℃的黑暗环境下保存。在使用时,将菌株置于TA培养基中,于25℃条件下进行活化培养。本试验所采用的辣椒种子HNUCB0226,由海南大学热带农林学院王志伟老师惠赠。西瓜、豌豆、番茄、南瓜、蚕豆等种子均保存于海南大学热带农林学院生物灾害绿色防控教育部重点实验室。连接酶购自诺唯赞公司;限制性内切酶购自New England Biolabs(NEB)公司;抗生素购自宝日医TAKARA公司;基因敲除相关试剂购自上海生工生物公司;试剂盒购自天根(TIANGEN)公司。
-
借助Pfam数据库(
http://pfam.xfam.org/ )所下载的GH3基因家族成员蛋白保守结构域的隐马尔科夫模型(PF00933),对辣椒疫霉LT1534菌株中的GH3基因家族成员展开筛选与鉴定,运用序列分析工具HMMER(https://www.ebi.ac.uk/Tools/hmmer/search/phmmer )对基因的结构域予以验证。采用TBtools绘制转录水平热图。通过对NCBI基因组数据库(https://www.ncbi.nlm.nih.gov/ )中检索获取的其他物种的GH3基因家族成员结构域蛋白的氨基酸序列进行系统发育树制作与比对,利用IBS绘制结构域,并借助MEGA v11构建进化树,运用iTOL(https://itol.embl.de/ )对进化树进行美化处理。利用ExPASy(
https://web.expasy.org/protparam/ )对辣椒疫霉菌LT1534菌株中的GH3基因家族成员的蛋白序列开展理化性质分析。通过WoLF SPORT(https://wolfpsort.hgc.jp/ )、CELLO(http://cello.life.nctu.edu.tw )、Euk-mPLoc(http://www.csbio.sjtu.edu.cn/bioinf/euk-multi-2/ )3个不同数据库对辣椒疫霉菌GH3基因家族成员进行亚细胞定位的预测性分析。借助SWISS-MODEL(https://swissmodel.expasy.org/ )和Alphafold 3(https://alphafoldserver.com/ )进行同源建模,剖析辣椒疫霉菌GH3基因家族蛋白序列的三维结构特性,预测蛋白质的空间模型。 -
用于克隆扩增目标基因及其上下游同源臂片段的引物、用于PCR验证片段大小的引物以及sgRNA引物,均由北京擎科生物科技股份有限公司合成(表1)。
表 1 引物名称及序列
Table 1. Primers and sequences
引物名称 Primer 序列 Sequence(5’-3’) PcGH3-12-AF CGGCGTTTCCTACCTGTT PcGH3-12-AR ATCCTGGTGATACCTTCCGT PcGH3-12-BF ATTCGGCGTGCTGTGCT PcGH3-12-BR GTCGTTTAGAATGCGAGGGT PcGH3-12-ORF-F TGGAGCTTCGTTCAATCCC PcGH3-12-ORF-R GCAATACTCCACCCACCACAT PcGH3-12-sgRNA1-F CTAGCTCAGCACTGATGAGTCCGTGAGGACGAAACGAGTAAGCTCGTCTGCTGACGATGTGTACGACT PcGH3-12-sgRNA1-R AAACAGTCGTACACATCGTCAGCAGACGAGCTTACTCGTTTCGTCCTCACGGACTCATCAGTGCTGAG PcGH3-12-sgRNA2-F CTAGCCCGTATCTGATGAGTCCGTGAGGACGAAACGAGTAAGCTCGTCATACGGATTAGACTCGGTGCA PcGH3-12-sgRNA2-R AAACTGCACCGAGTCTAATCCGTATGACGAGCTTACTCGTTTCGTCCTCACGGACTCATCAGATACGGG PcGH3-12-sgRNA3-F 'CTAGCCGACGTCTGATGAGTCCGTGAGGACGAAACGAGTAAGCTCGTCACGTCGTAGTGACCGATTGGG PcGH3-12-sgRNA3-R AAACCCCAATCGGTCACTACGACGTGACGAGCTTACTCGTTTCGTCCTCACGGACTCATCAGACGTCGG HPH-F TGTCAAGTCTCCACGAAG HPH-R CTATTCCTTTGCCCTCGGA M13-F GTTGTAAAACGACGGCCAG M13-R CAGGAAACAGCTATGACC -
质粒pBluescript SK II+用于构建基因敲除载体,经Pspx Ⅰ和Spe I双酶切处理后,与待敲除目的基因的上下游同源臂片段进行连接,通过大肠杆菌DH5α转化验证,测序结果准确无误后,获得同源重组质粒。质粒pYF515用于构建sgRNA载体,PcGH3-12基因特异性sgRNA借助基于网络的真核病原体CRISPR-guide RNA/DNA设计工具(
http://portals.broadinstitute.org/gpp/public/analysis-tools/sgrna-design )进行设计。扩增后的片段独立克隆并连接至经Bsa Ⅰ和Nhe Ⅰ双酶切处理后的pYF515质粒中,经大肠杆菌DH5α转化验证,测序正确后,得到sgRNA-pYF515载体质粒。采用聚乙二醇(PEG)介导的原生质体转化方法[27],将构建完成的pBS和pYF515质粒混合物转化至由辣椒疫霉菌LT1534菌株制备的原生质体中。将转化后的原生质体置于液体再生培养基(PM)中培养,并于25℃培养箱内黑暗条件下培养18 h。将转化体接种于含有50 μg/mL遗传霉素(G418)、100 μg/mL潮霉素的再生琼脂培养基(PAM)上,于25℃培养以预选具有G418抗性的菌丝。黑暗培养24~48 h后,补充含有G418和潮霉素的TA培养基作为第二筛选培养基,并于25℃黑暗条件下培养1~3 d。运用PCR、靶向限制性测序和第二代全基因组测序技术筛选潜在阳性的PcGH3-12基因敲除突变体。 -
采用10 μL移液枪头,自野生型LT1534、ΔPcGH3-12突变体以及EV菌株培养皿生长边缘的新鲜生长菌丝处进行连续打孔操作。将从单一菌株切下的菌丝体接种于90 mm TA琼脂培养板中央,于25℃条件下黑暗倒置培养4 d后,通过测量菌落直径来评估单一菌株的营养生长状况。每个菌株设置至少5个重复,开展至少3次独立试验。
将野生型LT1534、ΔPcGH3-12和EV菌株分别接种于10% TA琼脂培养基平板,统一于25℃黑暗倒置培养4 d后,去除封口膜,置于28℃光照培养箱中继续培养2 d以诱导孢子囊产生。使用2 mL ddH2O刮洗菌丝和孢子囊,制备孢子囊悬浮液,吸取10 μL滴于血球计数板上,在显微镜下观察孢子囊形态并统计数量。每个菌株设置至少3个重复,开展至少3次独立试验。
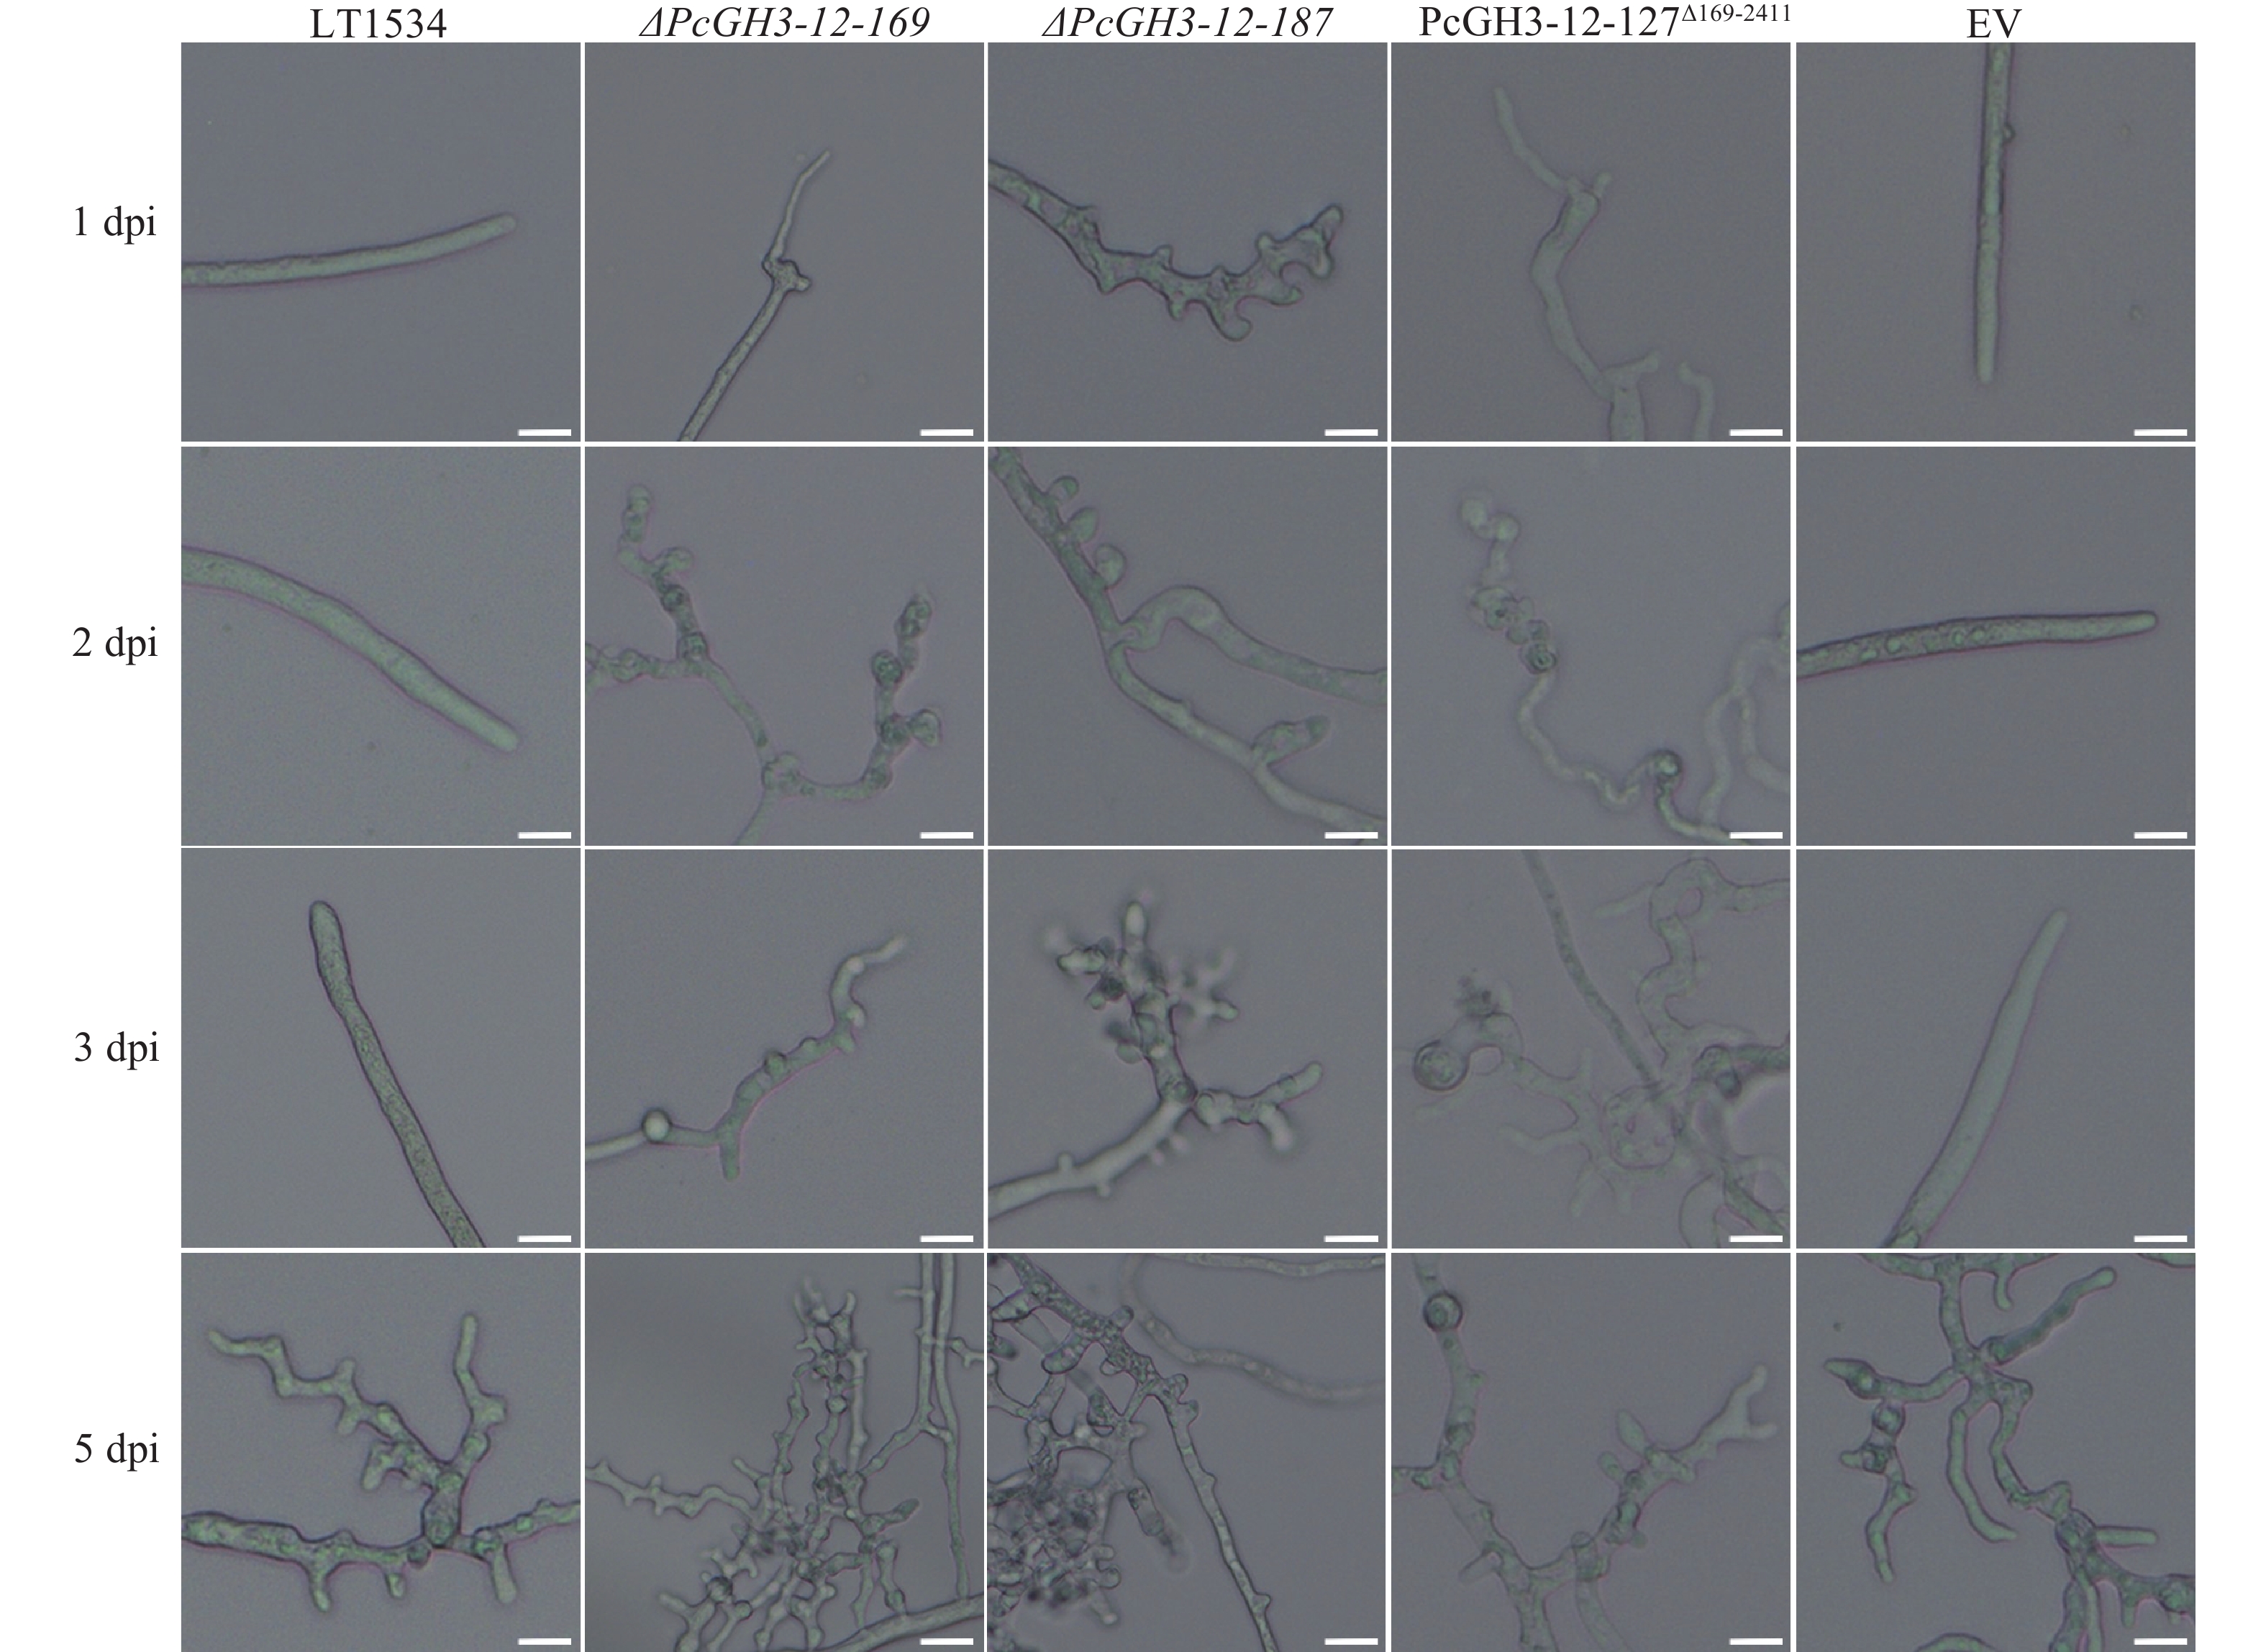
将野生型LT1534、ΔPcGH3-12和EV菌株分别接种于插有载玻片的10% TA琼脂培养基中,于25℃下进行黑暗培养。分别在培养1、2、3和5 d时取出载玻片,在倒置显微镜下观察菌丝形态。
-
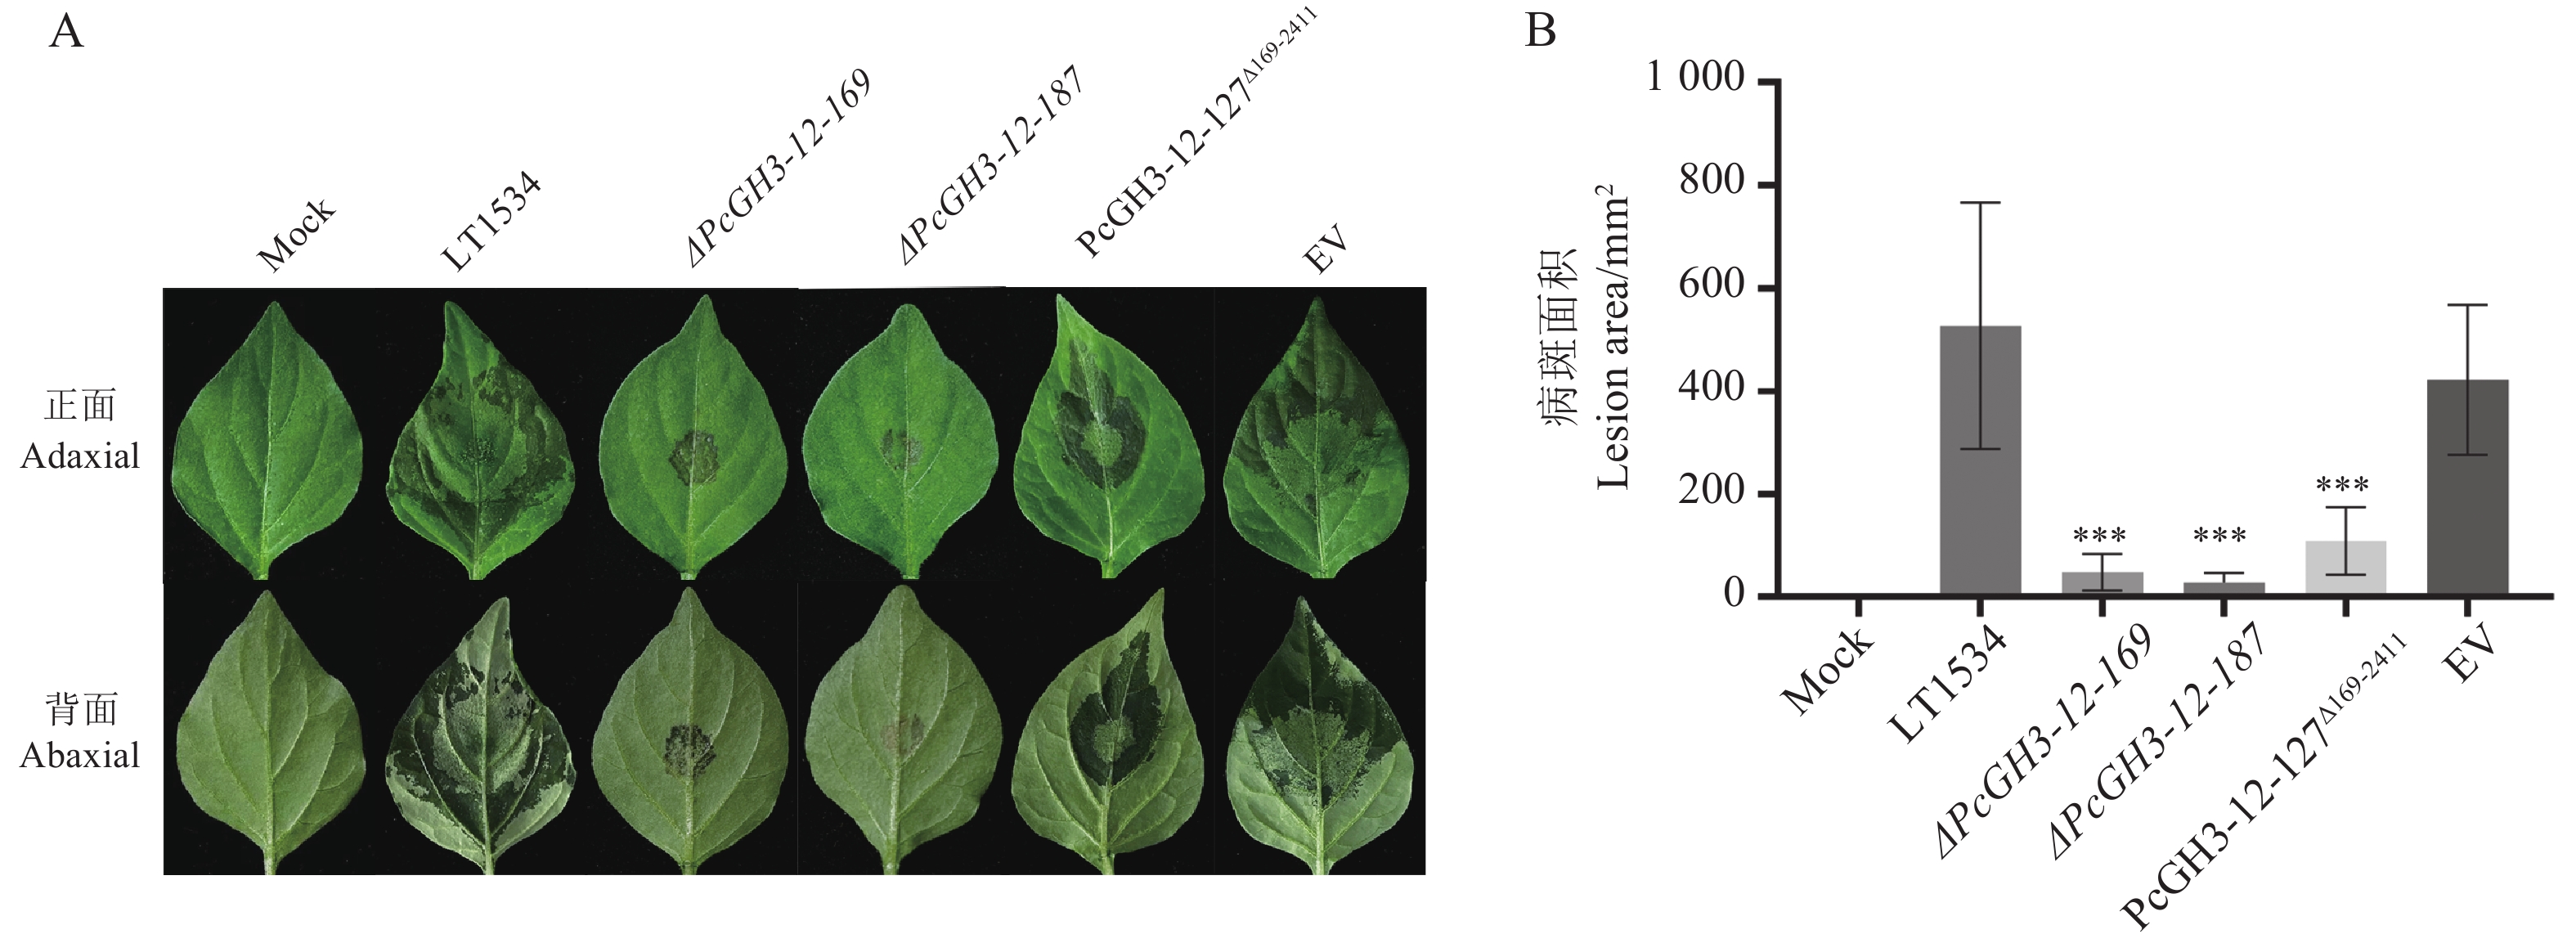
将野生型 LT1534、ΔPcGH3-12突变体及EV菌株从10% TA琼脂培养基平板上切取大小均一的菌块,转接至TA液体培养基中,在120 rpm、25℃条件下培养3 d。将等体积的菌丝球接种于活体辣椒植株无伤叶片正面中部表面,以空白琼脂块作为对照(Mock),先于25℃黑暗环境(湿度70%~90%)培养24 h,随后在25℃光照且保湿条件下培养2 d。待野生型出现完整病斑时,移除菌丝球,测量叶片病斑面积并拍照记录。每个处理选用3株辣椒苗(每株10片叶)进行重复试验,至少开展3次独立实验。
-
运用Microsoft Excel 2016开展数据整理工作,借助GraphPad Prism v9.0进行数据统计分析。采用单因素方差分析检验统计显著性。
-
基于辣椒疫霉菌LT1534的基因组数据,以GH3基因家族蛋白序列的保守结构域为靶向,运用隐马尔科夫模型开展检索,共计筛选出28个辣椒疫霉菌GH3基因家族成员(表2),并依据其在辣椒疫霉菌基因组中的基因位置依次予以命名。通过生物信息学手段分析可知,辣椒疫霉菌GH3基因家族编码产物的蛋白理化性质存在显著差异。其蛋白质序列长度介于575~877个氨基酸之间,分子量范围为
62851.00 ~94035.28 Da。其中,PcGH3-9的氨基酸数目最少,分子量为62851.00 Da;而PcGH3-19是该家族中氨基酸数目最多的成员,分子量为94035.28 Da。表 2 辣椒疫霉菌GH3基因家族蛋白的理化性质分析
Table 2. Analysis of physicochemical properties of GH3 gene family proteins in P. capsici
名称
Name基因银行
GenBank氨基酸
Amino acids分子量
Mw(Da)等电点
pI不稳定系数
Instability index脂肪系数
Aliphatic index亲水性平均系数
GRAVYPcGH3-1 KAG1713077.1 777 84974.58 4.76 23.95 82.23 -0.188 PcGH3-2 KAG1711297.1 781 85165.79 4.51 24.05 84.78 -0.122 PcGH3-3 KAG1711298.1 781 85428.36 4.65 24.79 82.16 -0.117 PcGH3-4 KAG1711299.1 781 85458.39 4.65 24.79 82.04 -0.120 PcGH3-5 KAG1711300.1 740 81360.83 4.57 29.35 86.05 -0.165 PcGH3-6 KAG1707973.1 776 85007.50 5.89 35.05 83.08 -0.107 PcGH3-7 KAG1705199.1 737 79752.51 4.78 33.40 85.14 -0.133 PcGH3-8 KAG1705200.1 802 88165.30 5.86 38.34 87.29 -0.147 PcGH3-9 KAG1705022.1 575 62851.00 4.73 28.07 89.65 -0.123 PcGH3-10 KAG1703190.1 665 72422.59 4.72 22.25 85.89 -0.143 PcGH3-11 KAG1703193.1 777 84693.14 4.53 24.20 83.11 -0.120 PcGH3-12 KAG1703272.1 737 80471.35 4.54 25.30 87.27 -0.113 PcGH3-13 KAG1703273.1 812 88978.17 4.66 24.37 84.56 -0.184 PcGH3-14 KAG1703274.1 787 86184.34 4.69 24.53 88.36 -0.134 PcGH3-15 KAG1703275.1 790 85898.81 4.47 27.26 88.97 -0.017 PcGH3-16 KAG1699780.1 731 80133.97 5.79 33.83 92.98 -0.114 PcGH3-17 KAG1697980.1 781 85717.18 5.02 24.77 87.29 -0.140 PcGH3-18 KAG1697981.1 776 84840.85 4.75 23.87 86.13 -0.155 PcGH3-19 KAG1697418.1 877 94035.28 4.44 27.34 83.32 -0.190 PcGH3-20 KAG1697270.1 788 86806.62 4.55 28.63 81.07 -0.216 PcGH3-21 KAG1697271.1 788 86836.65 4.55 28.31 80.94 -0.219 PcGH3-22 KAG1697317.1 758 82699.85 5.34 33.51 89.54 -0.131 PcGH3-23 KAG1695964.1 758 82607.66 5.29 33.70 89.16 -0.131 PcGH3-24 KAG1693069.1 755 82483.87 7.53 35.45 89.07 -0.158 PcGH3-25 KAG1690364.1 843 92350.74 5.37 34.38 89.05 -0.141 PcGH3-26 KAG1688059.1 755 82483.87 7.53 35.45 89.07 -0.158 PcGH3-27 KAG1684419.1 843 92350.74 5.37 34.38 89.05 -0.141 PcGH3-28 KAG1684306.1 776 84976.46 5.89 34.80 82.58 -0.113 进一步分析表明,辣椒疫霉菌的GH3基因家族蛋白大多为酸性蛋白。其中,PcGH3-26蛋白的等电点最高,达到7.53;而PcGH3-19蛋白的等电点最低,仅为4.44;PcGH3-12等电点为4.54,在基因家族成员中相对较低,属于酸性蛋白。辣椒疫霉菌GH3蛋白的不稳定系数范围为22.25~38.34,且不稳定系数均低于40。依据蛋白质稳定性分类标准,这表明该基因家族编码的蛋白质均属于稳定蛋白。
在热力学稳定性方面,辣椒疫霉菌GH3蛋白的脂肪系数范围为80.94~92.98。其中,PcGH3-21的脂肪系数最低,意味着其热稳定性最差;而PcGH3-16的脂肪系数最高,表明该蛋白热稳定性最佳;PcGH3-12脂肪系数较高,其热稳定性相对较优。此外,亲水性分析显示,所有GH3蛋白的平均亲水系数均为负值,这表明该家族成员整体呈现典型的亲水性特征,此特性可能与其在胞外基质的催化功能密切相关。
另外,基于WoLF PSORT、Euk-mPLoc及CELLO三个数据库的综合分析,对辣椒疫霉菌GH3基因家族成员的亚细胞定位进行预测,绝大部分蛋白均为胞外蛋白(表3)。
表 3 辣椒疫霉菌GH3基因家族蛋白的亚细胞定位预测
Table 3. Subcellular localization prediction of GH3 gene family proteins in P. capsici
基因名称
Gene不同数据库中亚细胞定位预测
Subcellular localization prediction in different databasesWoLF SPORT CELLO Euk-mPLoc PcGH3-1 胞外 extra 细胞骨架 cysk 细胞骨架 cysk PcGH3-2 胞外 extra 胞外 extra 线粒体 mito PcGH3-3 胞外 extra 细胞骨架 cysk 线粒体 mito PcGH3-4 胞外 extra 细胞骨架 cysk 线粒体 mito PcGH3-5 细胞骨架 cysk 细胞骨架 cysk 细胞骨架 cysk PcGH3-6 胞外 extra 胞外 extra 线粒体 mito PcGH3-7 胞内 cyto 液泡vacu 线粒体 mito PcGH3-8 胞外 extra − 线粒体 mito PcGH3-9 胞内 cyto 质膜 plas 线粒体 mito PcGH3-10 胞内 cyto 胞内/胞外 cyto/ extra 胞内/线粒体 cyto/ mito PcGH3-11 胞外 extra 质膜/胞外 plas/ extra 胞内/线粒体 cyto/ mito PcGH3-12 胞内 cyto 质膜 plas 线粒体 mito PcGH3-13 胞外 extra 胞内 cyto 线粒体 mito PcGH3-14 胞外 extra 胞内/胞外 cyto/ extra 线粒体 mito PcGH3-15 胞外 extra 胞外/质膜 extra/ plas 线粒体 mito PcGH3-16 胞内 cyto 胞内/质膜 cyto/ plas 胞内/线粒体 cyto/ mito PcGH3-17 胞外 extra 胞内 cyto 线粒体 mito PcGH3-18 胞外 extra 胞内 cyto 线粒体 mito PcGH3-19 胞外 extra 胞外 extra 胞内/胞外/线粒体
cyto/ extra/ mitoPcGH3-20 胞外 extra 胞内 cyto 胞内/线粒体 cyto/ mito PcGH3-21 胞外 extra 胞内 cyto 胞内/线粒体 cyto/ mito PcGH3-22 过氧化物酶体pero − 线粒体 mito PcGH3-23 过氧化物酶体pero − 线粒体 mito PcGH3-24 胞外 extra − 线粒体 mito PcGH3-25 胞外 extra 胞内 cyto 线粒体 mito PcGH3-26 胞外 extra − 线粒体 mito PcGH3-27 胞外 extra 胞内 cyto 线粒体 mito PcGH3-28 胞外 extra 胞外 extra 线粒体 mito -
利用SWISS-MODEL和Alphafold 3对辣椒疫霉菌PcGH3蛋白进行同源建模,结果显示,28个GH3蛋白可大致分为2个构型(图1)。其中,PcGH3-1、PcGH3-3、PcGH3-4、PcGH3-6、PcGH3-7、PcGH3-8、PcGH3-9、PcGH3-12、PcGH3-13、PcGH3-14、PcGH3-15、PcGH3-17、PcGH3-18、PcGH3-20、PcGH3-22、PcGH3-23、PcGH3-24、PcGH3-26和PcGH3-28具有相似的三角形蛋白构型,其中,PcGH3-12蛋白结构两端排序相对紧实有序;PcGH3-2、PcGH3-5、PcGH3-10、PcGH3-11、PcGH3-16、PcGH3-19、PcGH3-21、PcGH3-25和PcGH3-27的蛋白构型形似四边形。
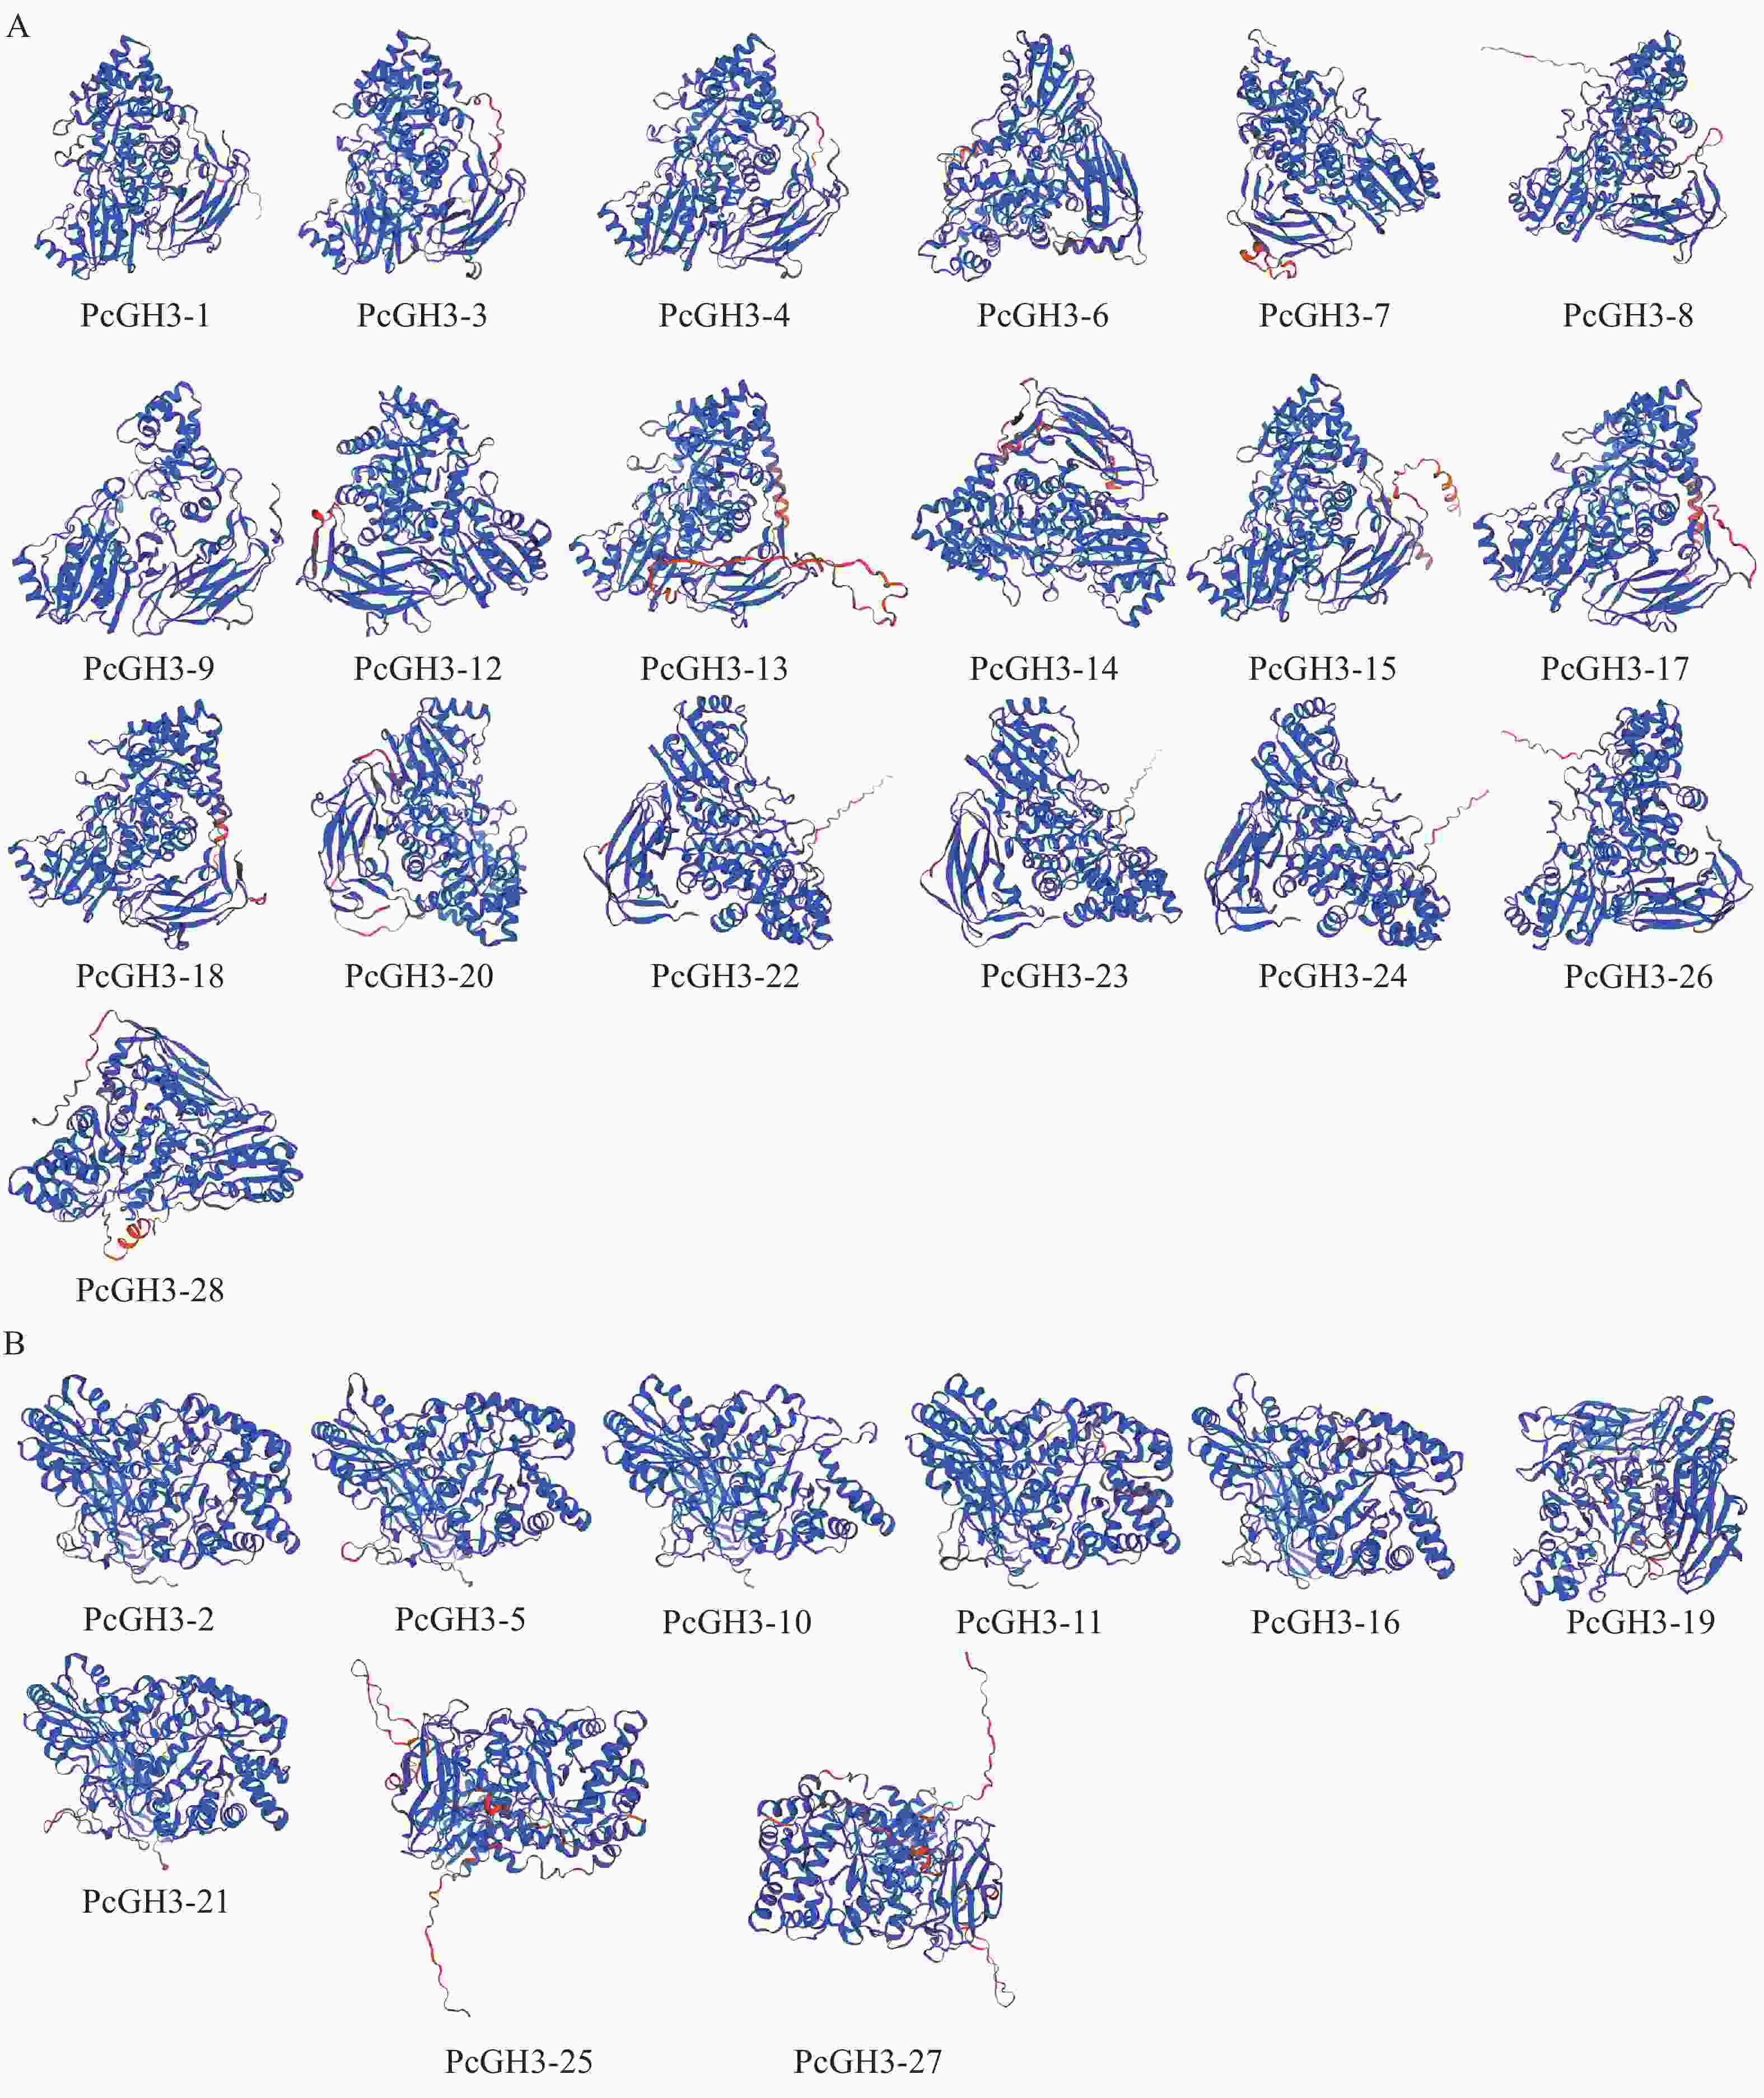
图 1 辣椒疫霉菌GH3基因家族成员蛋白三级结构
Figure 1. Protein tertiary structure of GH3 gene family members in P. capsici
-
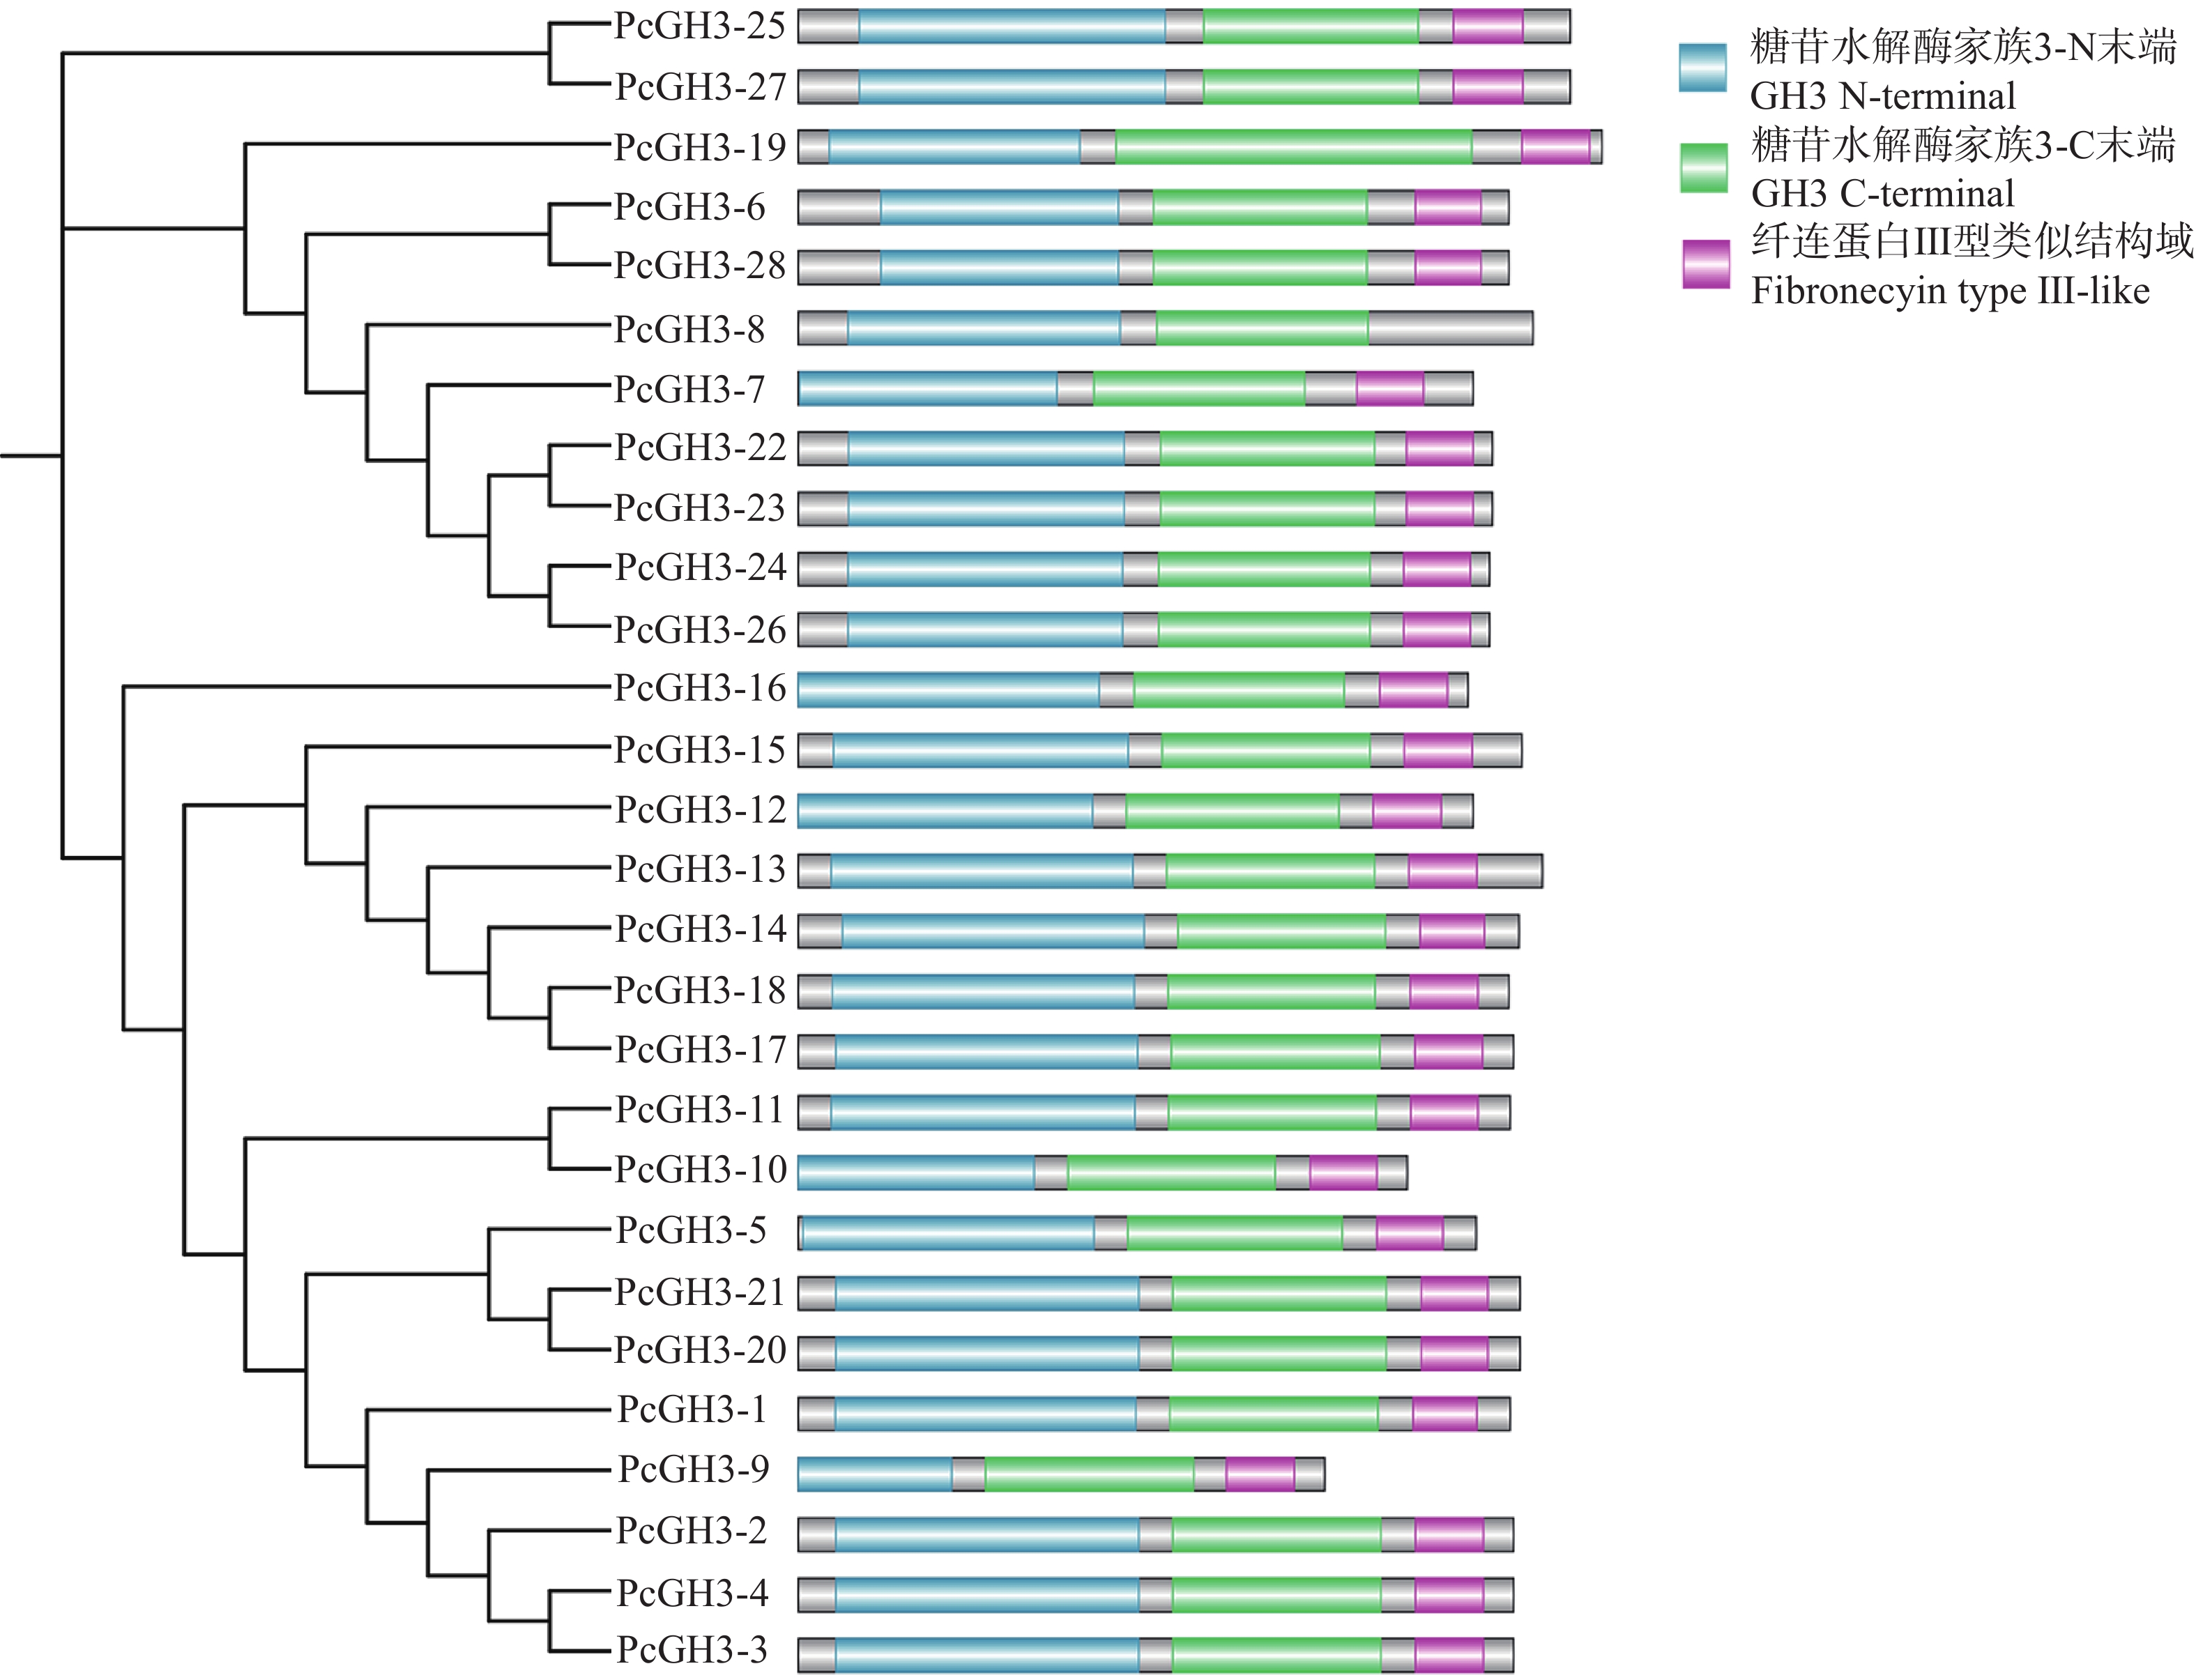
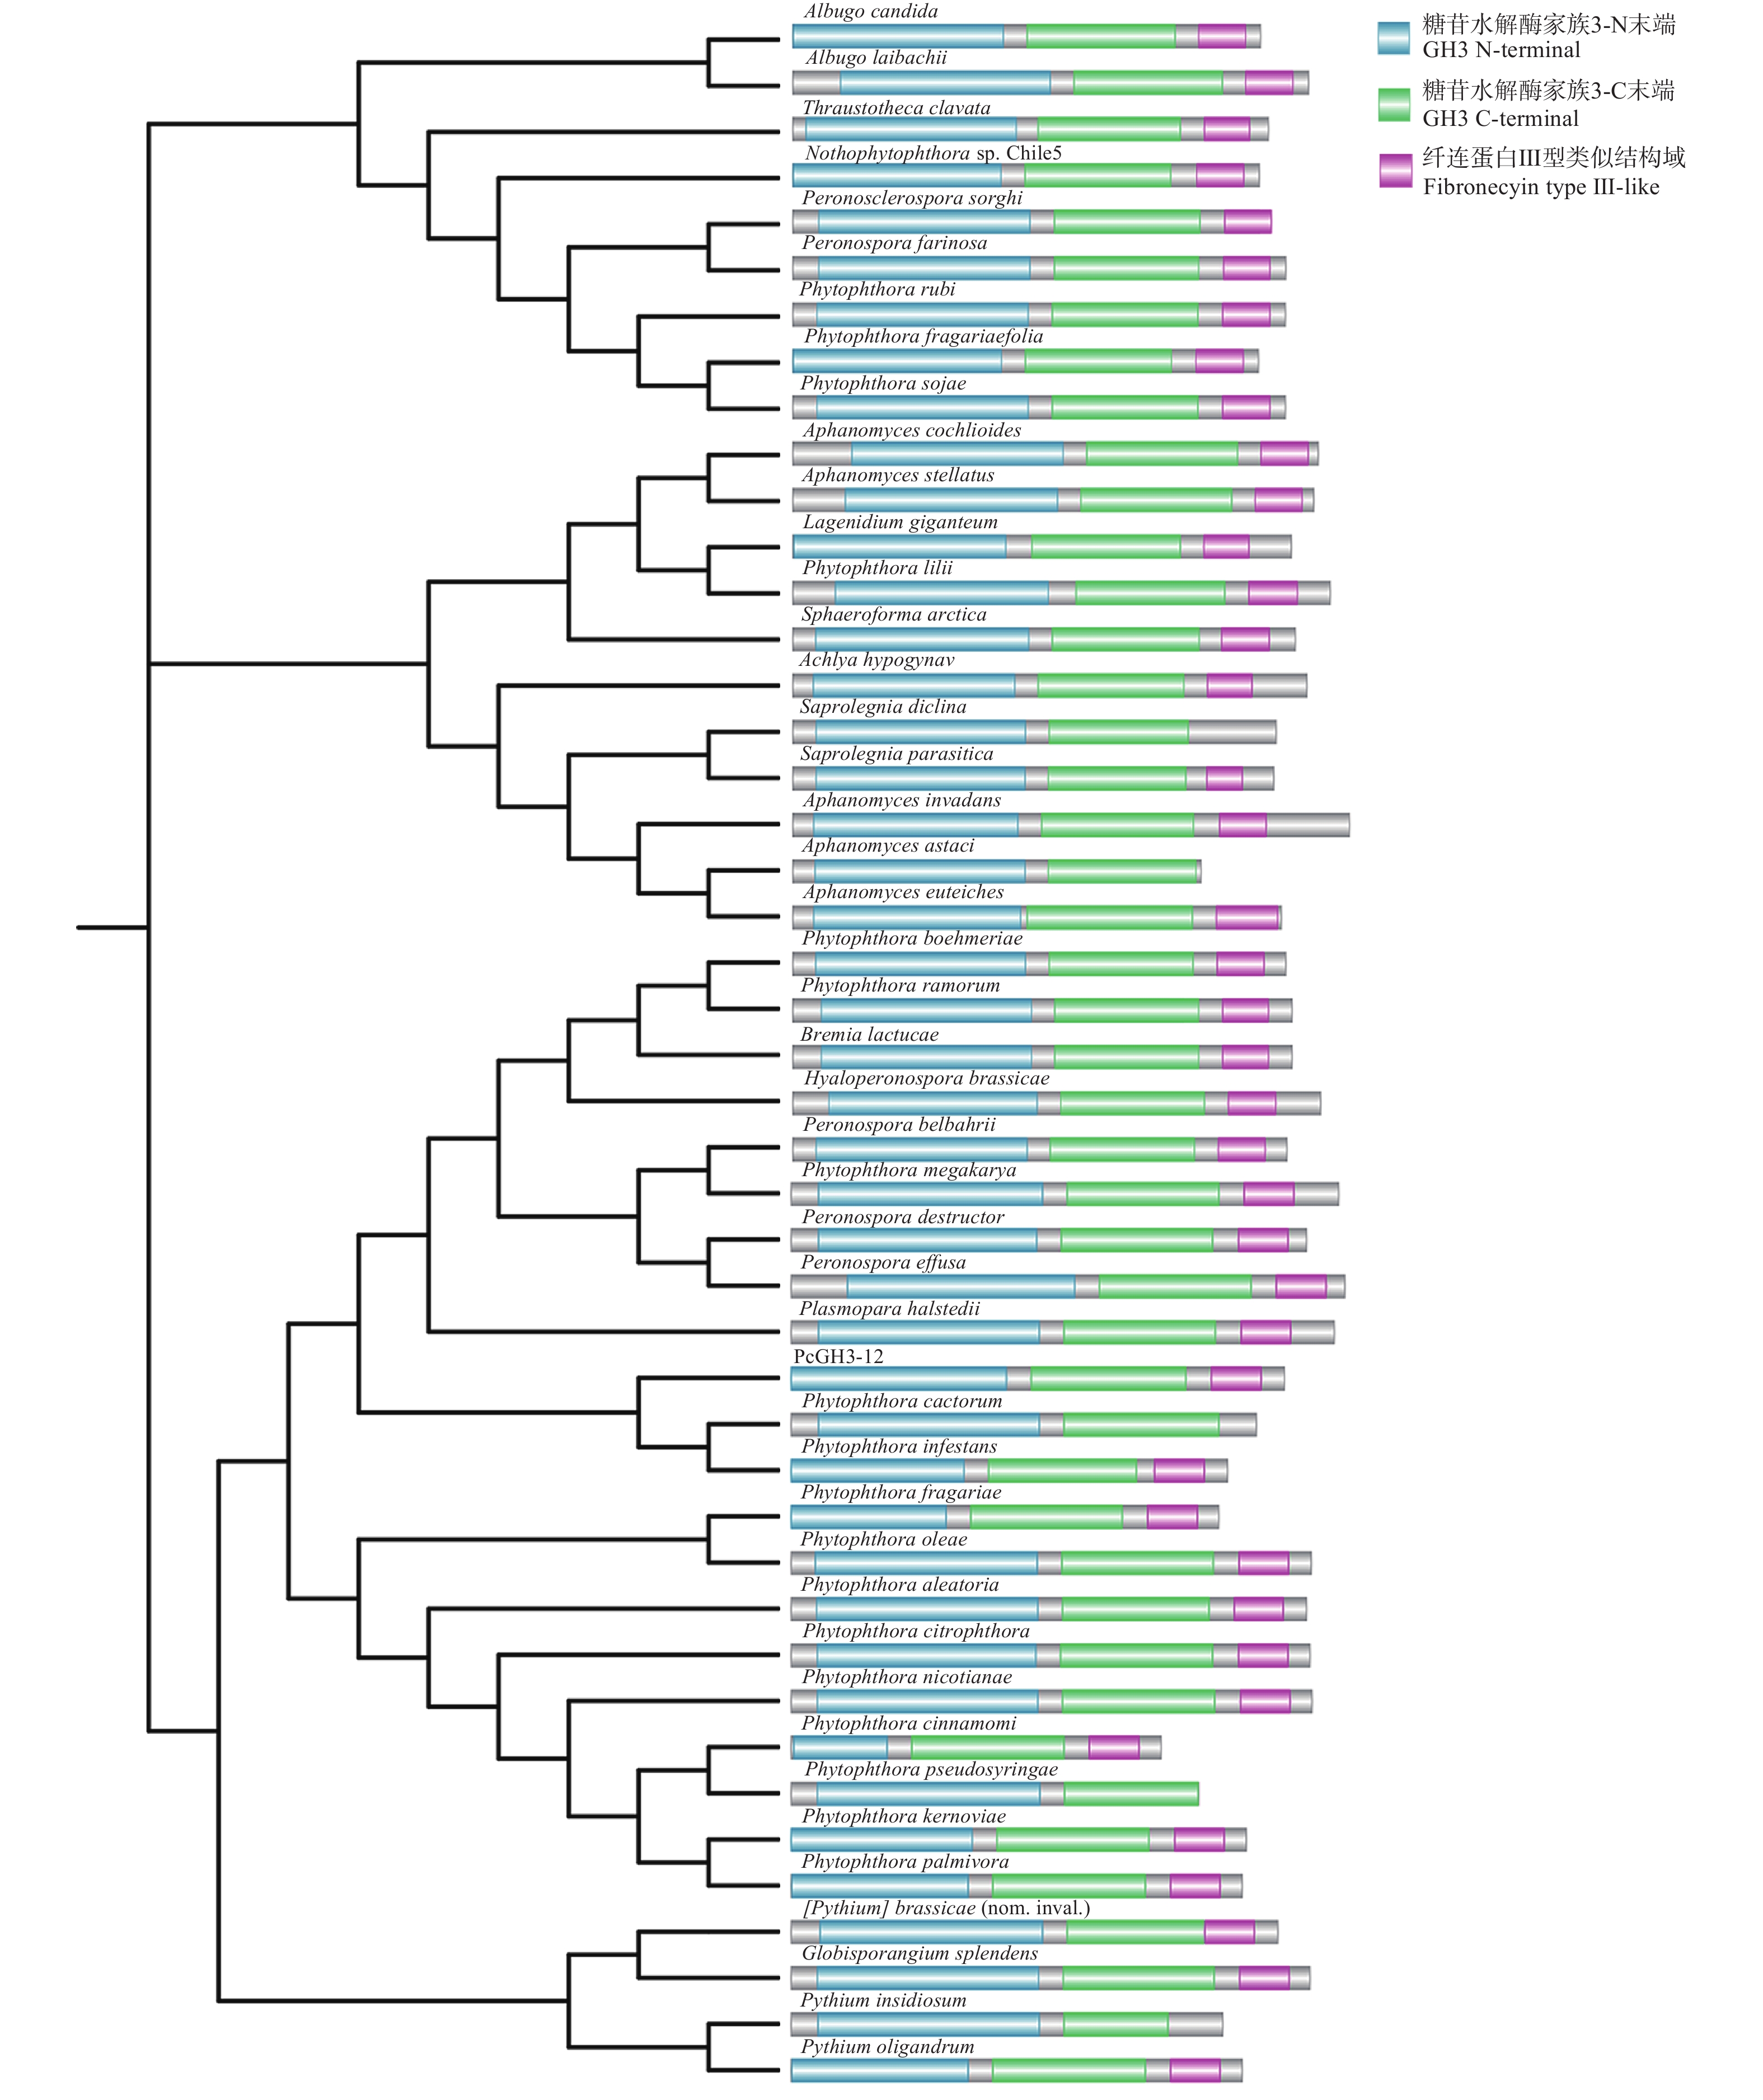
通过对辣椒疫霉菌GH3基因家族蛋白结构域分析,发现28个基因均具有完整结构域,PcGH3-12、PcGH3-10、PcGH3-7等蛋白结构中的糖苷水解酶家族3-N末端结构域(GH 3 N-terminal)位于该蛋白结构的起始端(图2)。蛋白序列特征分析表明,除了本研究发现的保守的GH3结构域外,还具有纤连蛋白Ⅲ型类似结构域(Fibronectin type Ⅲ- like)(图2),Fn3结构域在蛋白质中发挥着关键作用,主要体现在介导蛋白质之间的相互作用,通过维持蛋白质的稳定构象,确保蛋白质功能的正常发挥[28],同时,Fn3结构域能够促进酶催化结构域与底物或小分子的结合,进而推动酶促反应的顺利进行[29, 30]。
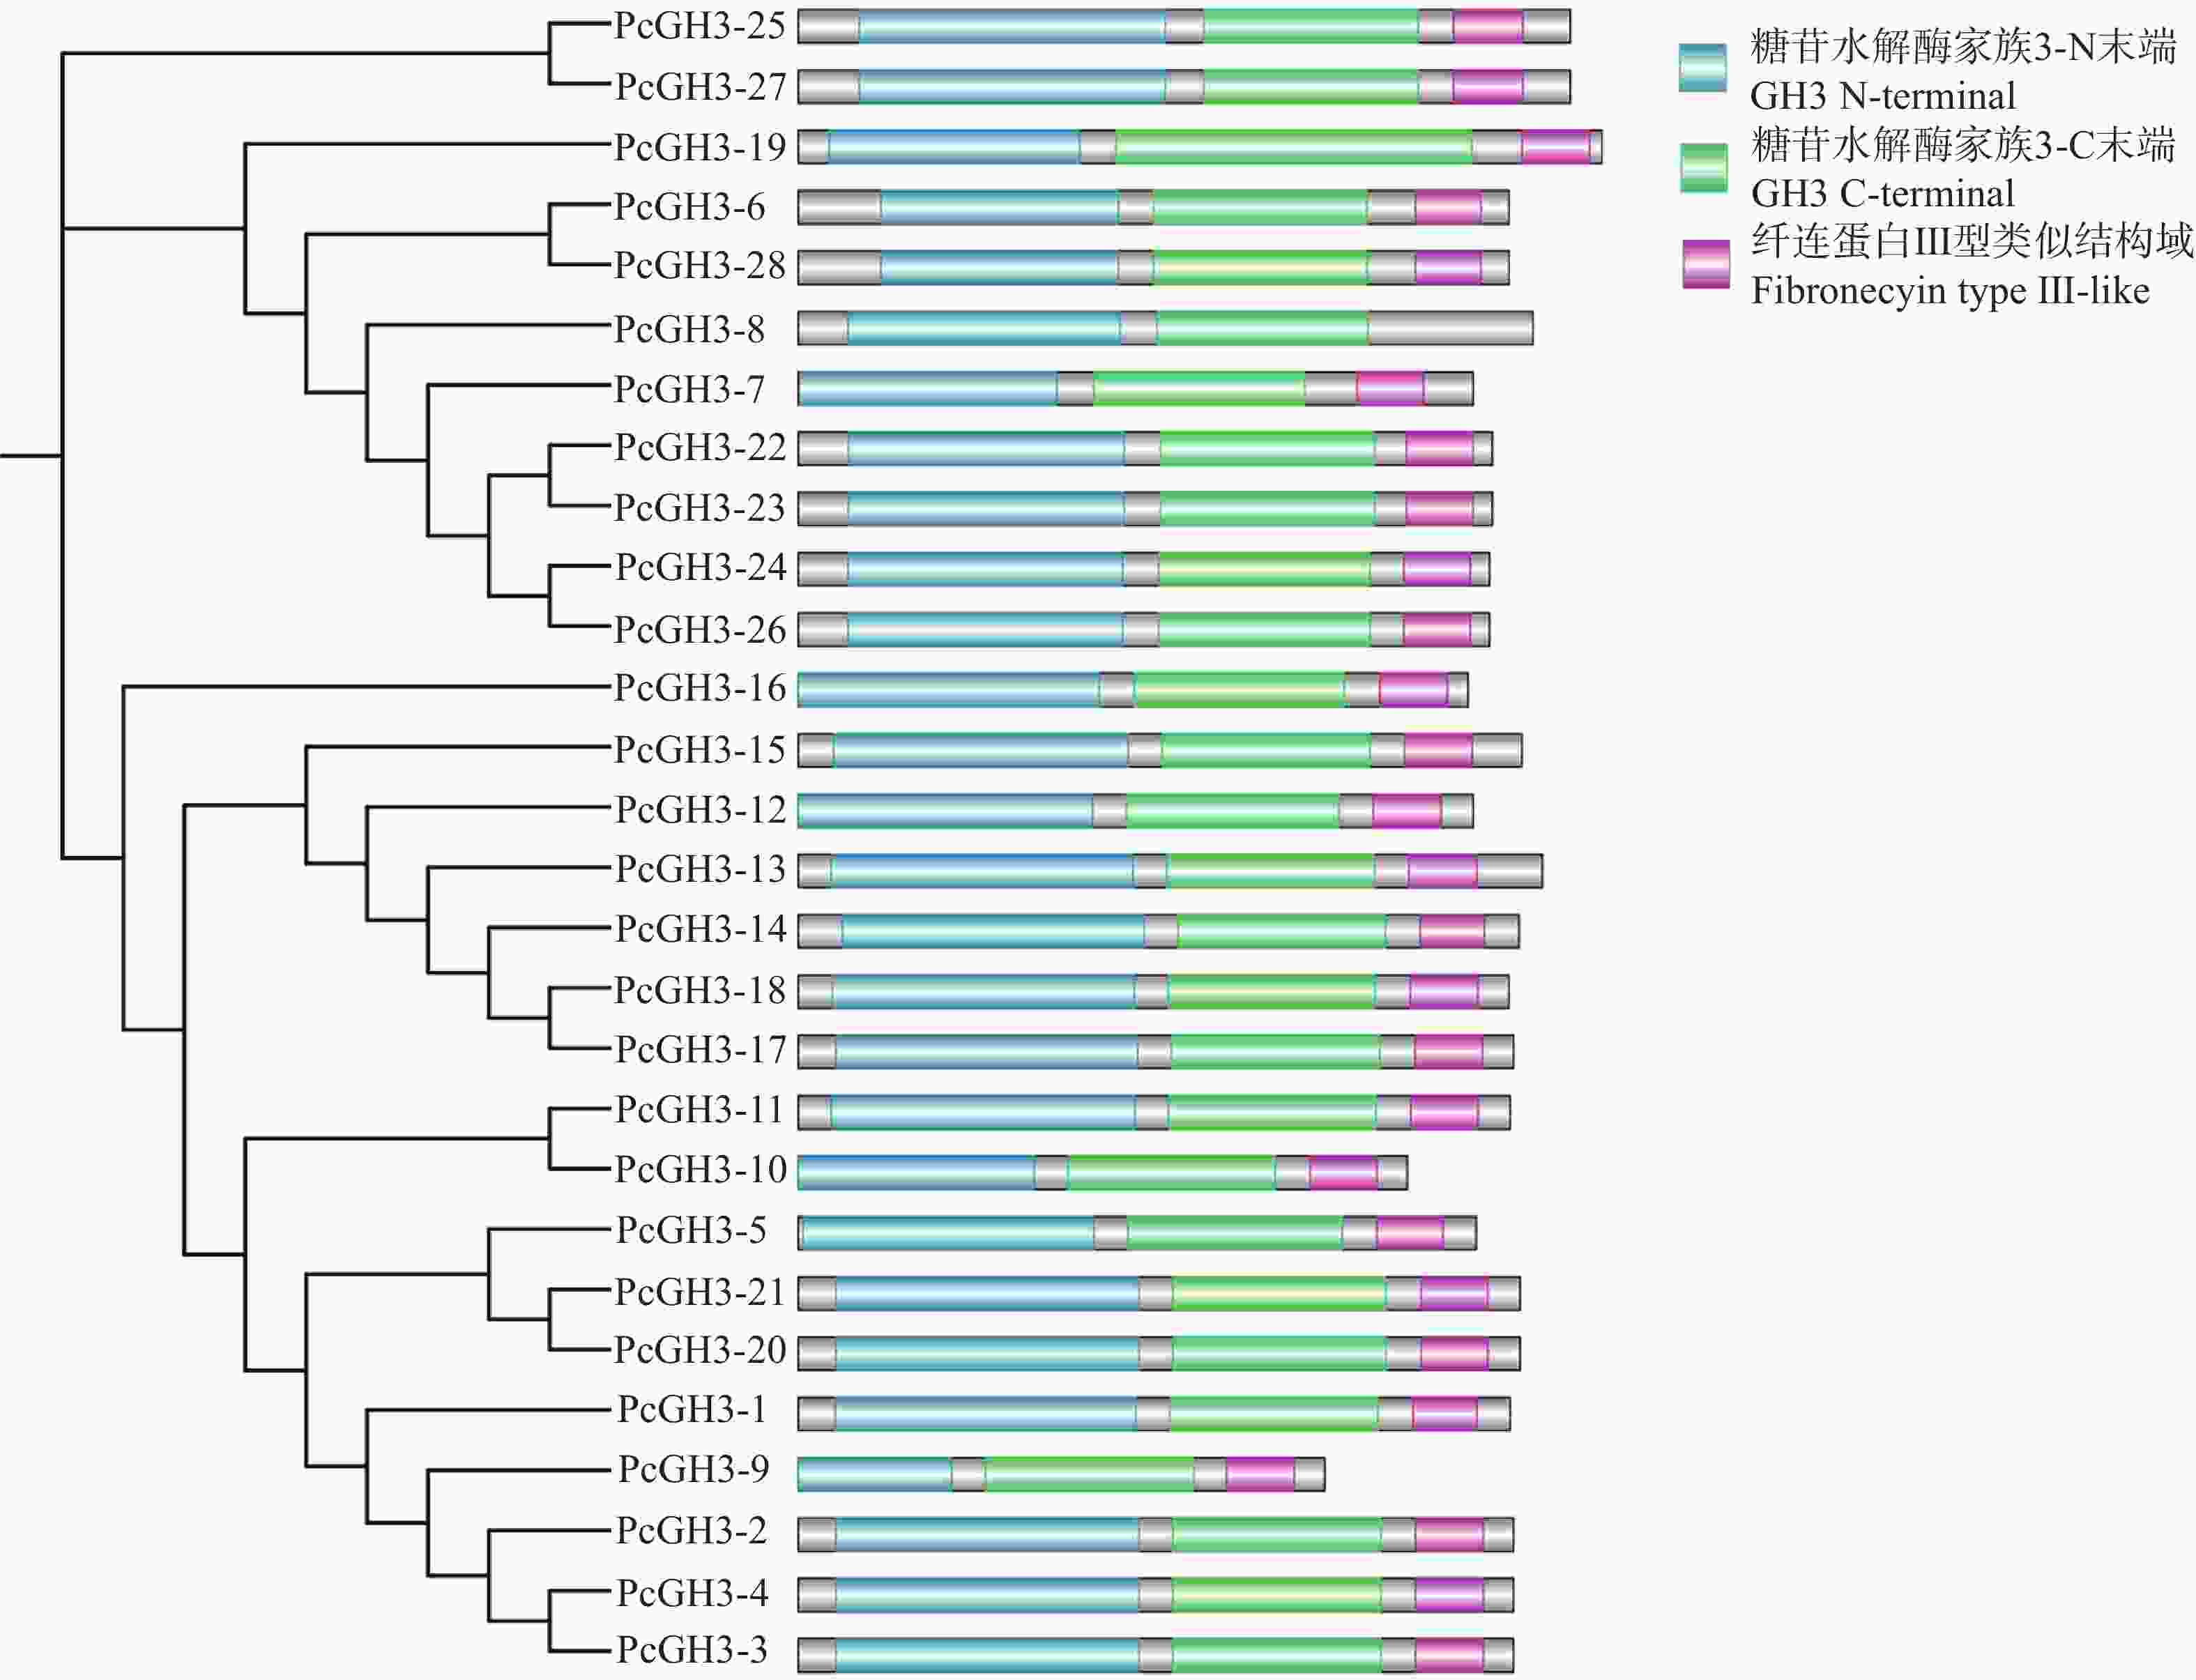
图 2 辣椒疫霉菌GH3基因家族成员蛋白功能结构域
Figure 2. Functional domains of GH3 gene family members in P. capsici
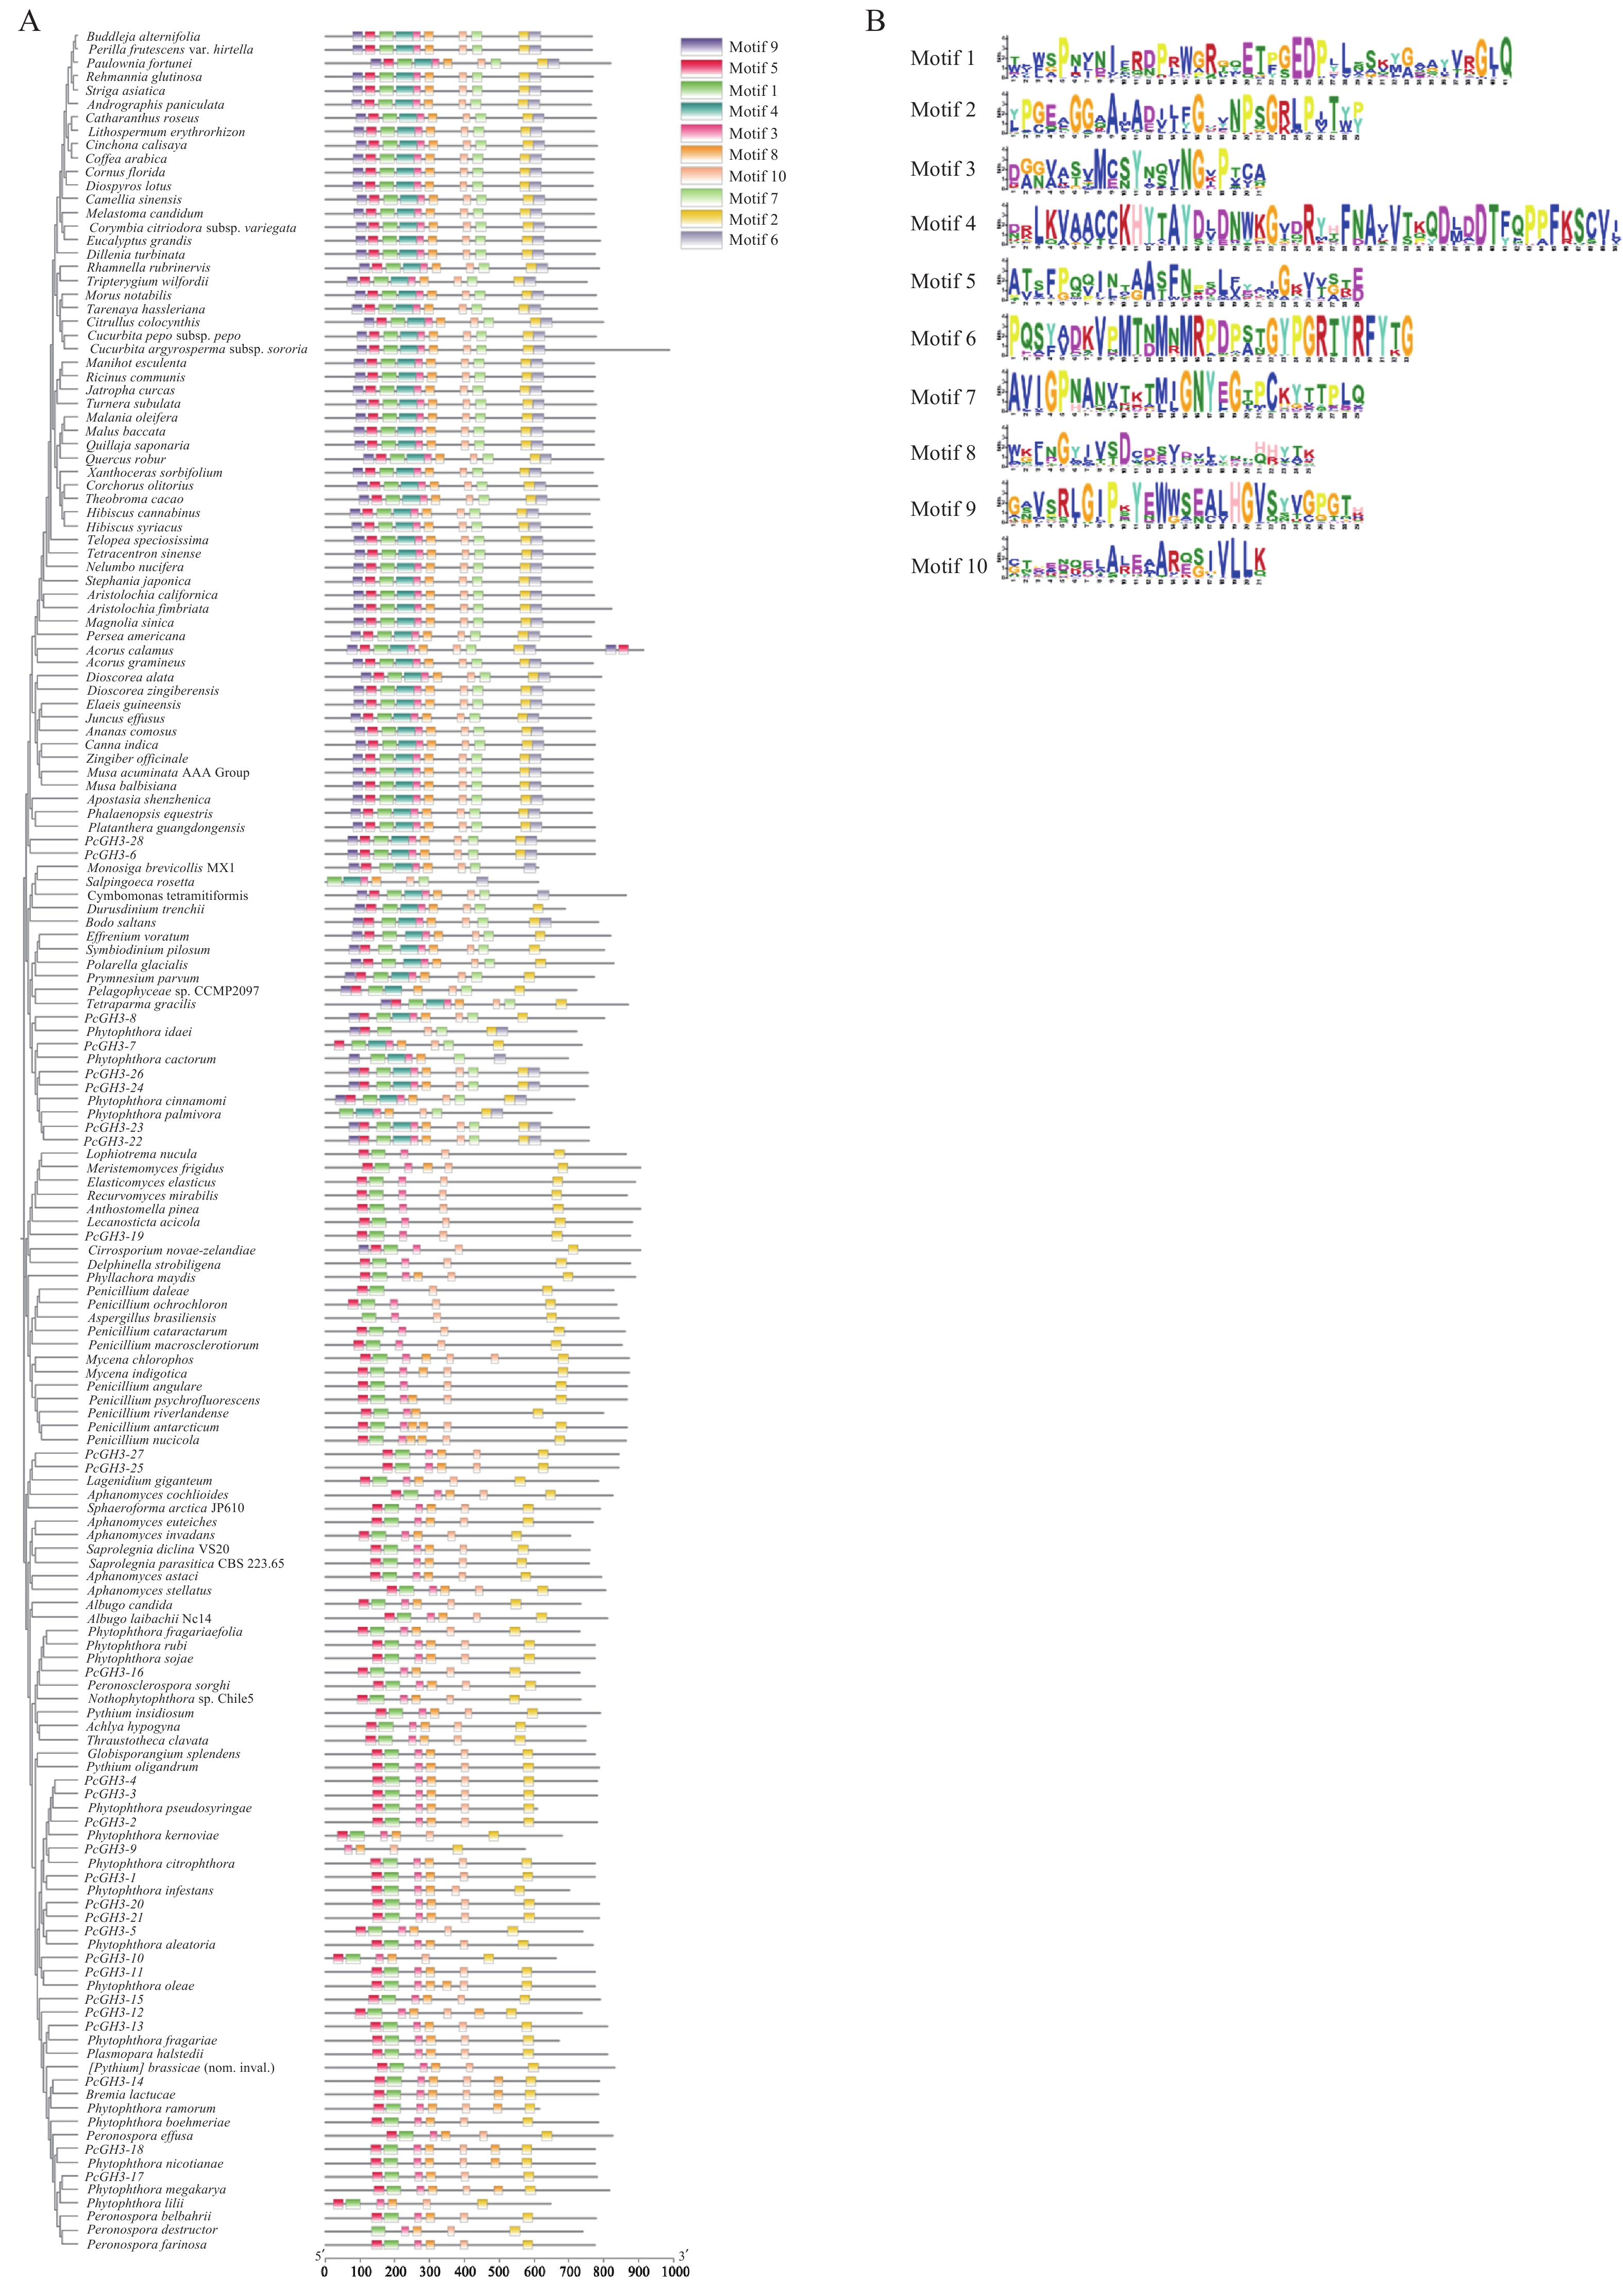
辣椒疫霉菌GH3基因家族中28个基因成员通过NCBI的位点特异性迭代BLAST(Position-Specific Iterated BLAST)经过多次迭代和位置特异性矩阵的更新获得其它物种的蛋白序列,筛选后使用在线软件MEME进行保守基序分析,将基序数设置为10,将其命名为Motif1-Motif10。分析结果发现28个辣椒疫霉菌GH3基因家族成员之间包含的保守基序数目和种类存在差异,其中Motif2、Motif3、Motif10是最保守的基序,存在于28个PcGH3成员中;6个PcGH3含有10个基序,PcGH3-9含有的基序最少,仅含有4个基序。PcGH3-12、PcGH3-14、PcGH3-18含有两个Motif8。此外,一些家族成员表现出相似的Motif组成,说明这些成员的基因功能上可能也同样具有较高的相似性(图3)。
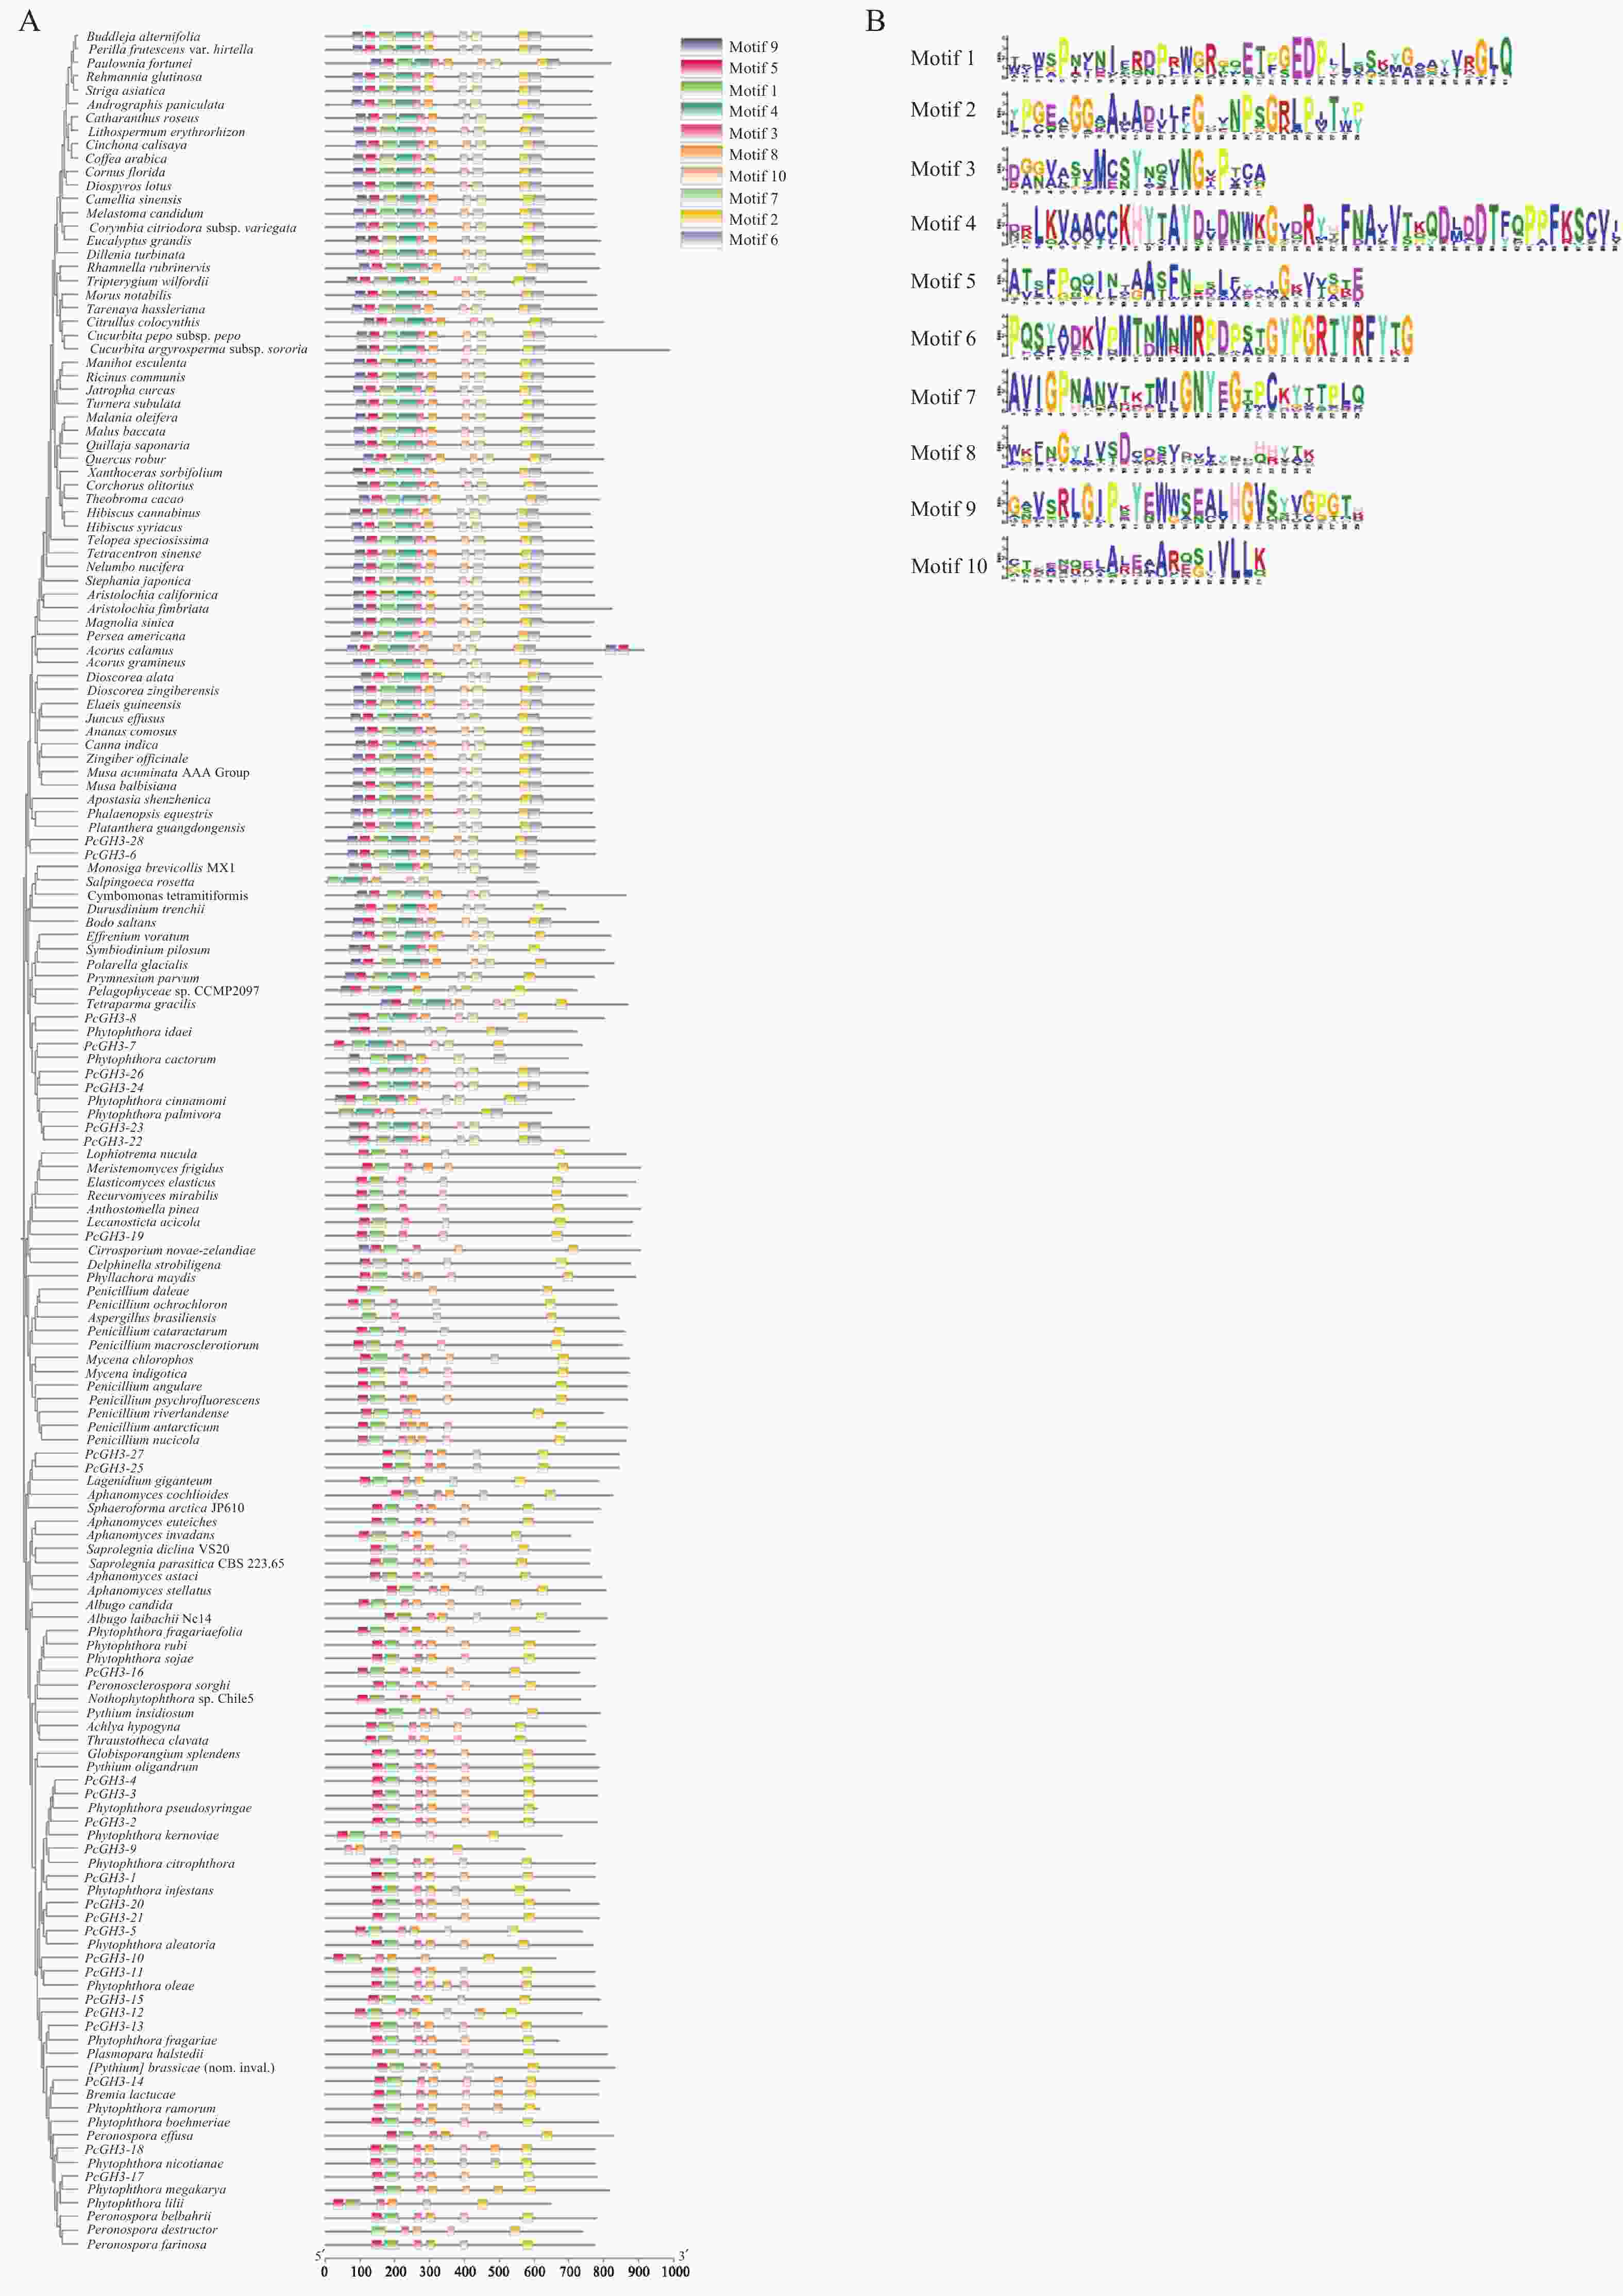
图 3 PcGH3蛋白和不同物种的基序结构及10个保守基序结构
Figure 3. PcGH3 protein and motif structure of different species and 10 conserved motifs domains
-
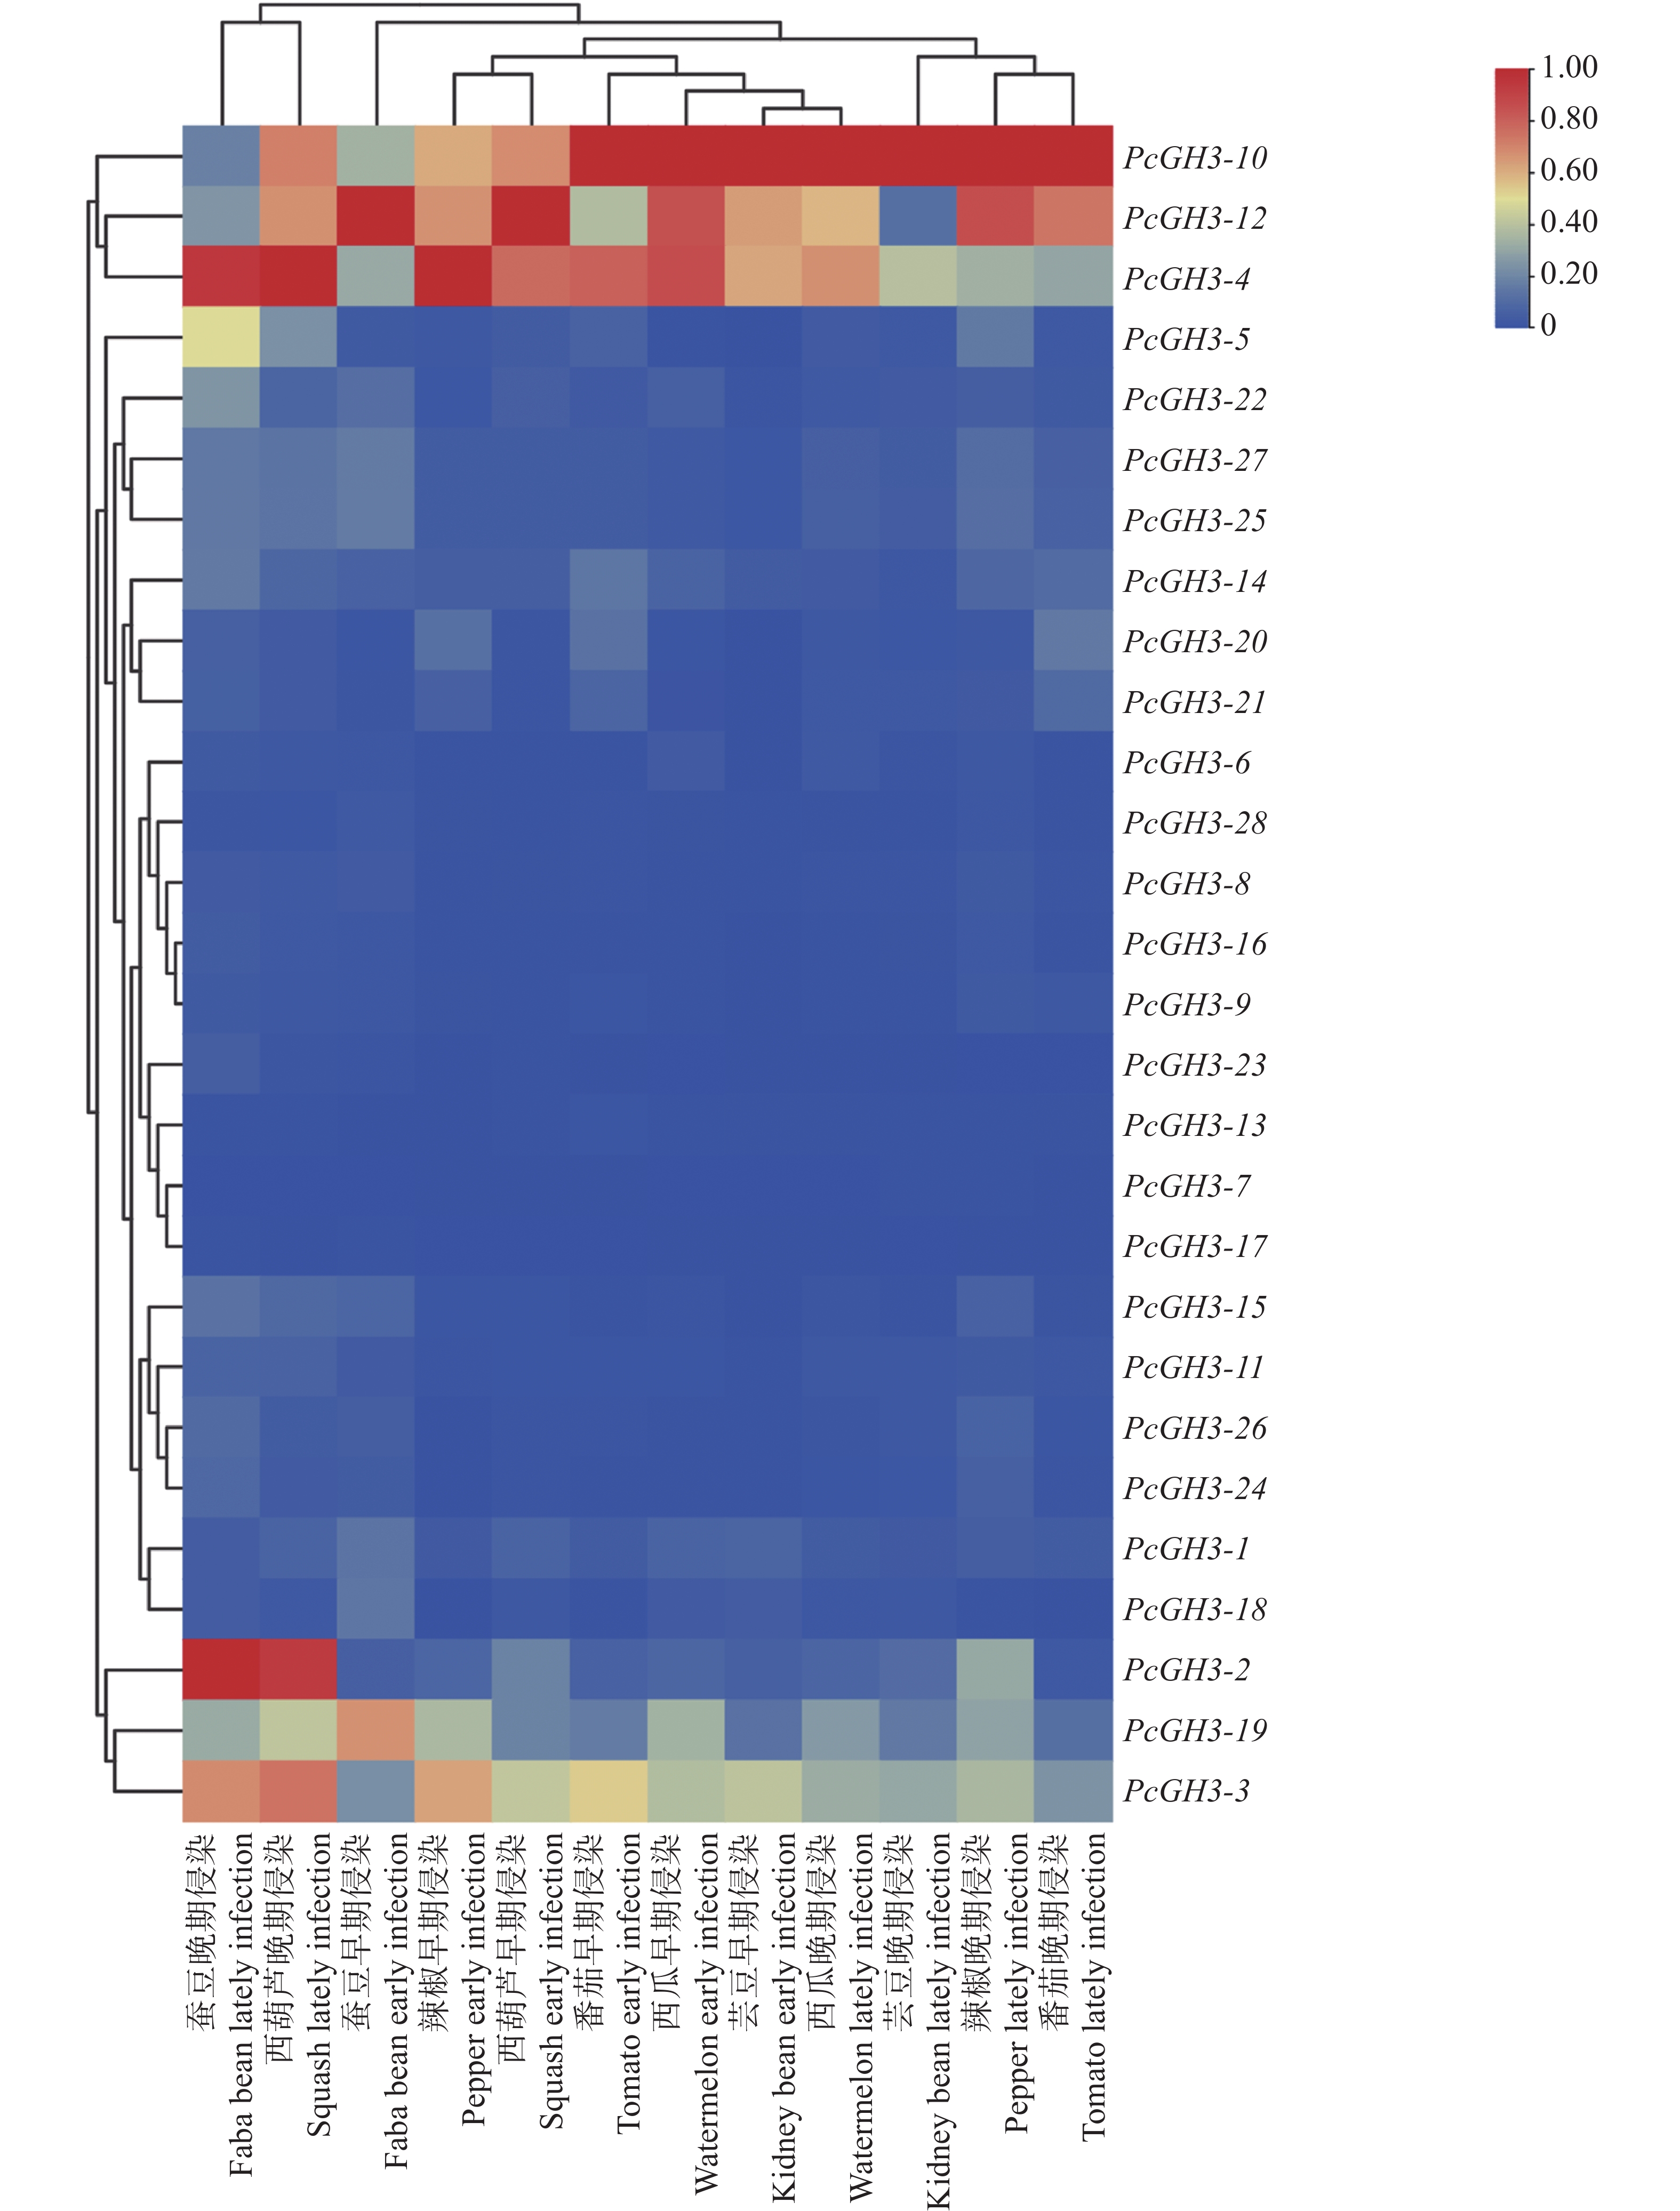
本研究通过辣椒疫霉菌LT1534菌株侵染辣椒、番茄、蚕豆、西葫芦、菜豆和西瓜叶片的互作转录组,筛选出在侵染不同寄主及不同时段的转录水平有显著上调的基因。比较分析发现,PcGH3-10、PcGH3-12在辣椒、番茄、蚕豆、西葫芦、菜豆和西瓜幼苗互作的早期(8~24 h)和晚期(36~72 h)表达强度相对较高,后续对PcGH3-12基因进行敲除,进行初步基因功能验证(图4)。
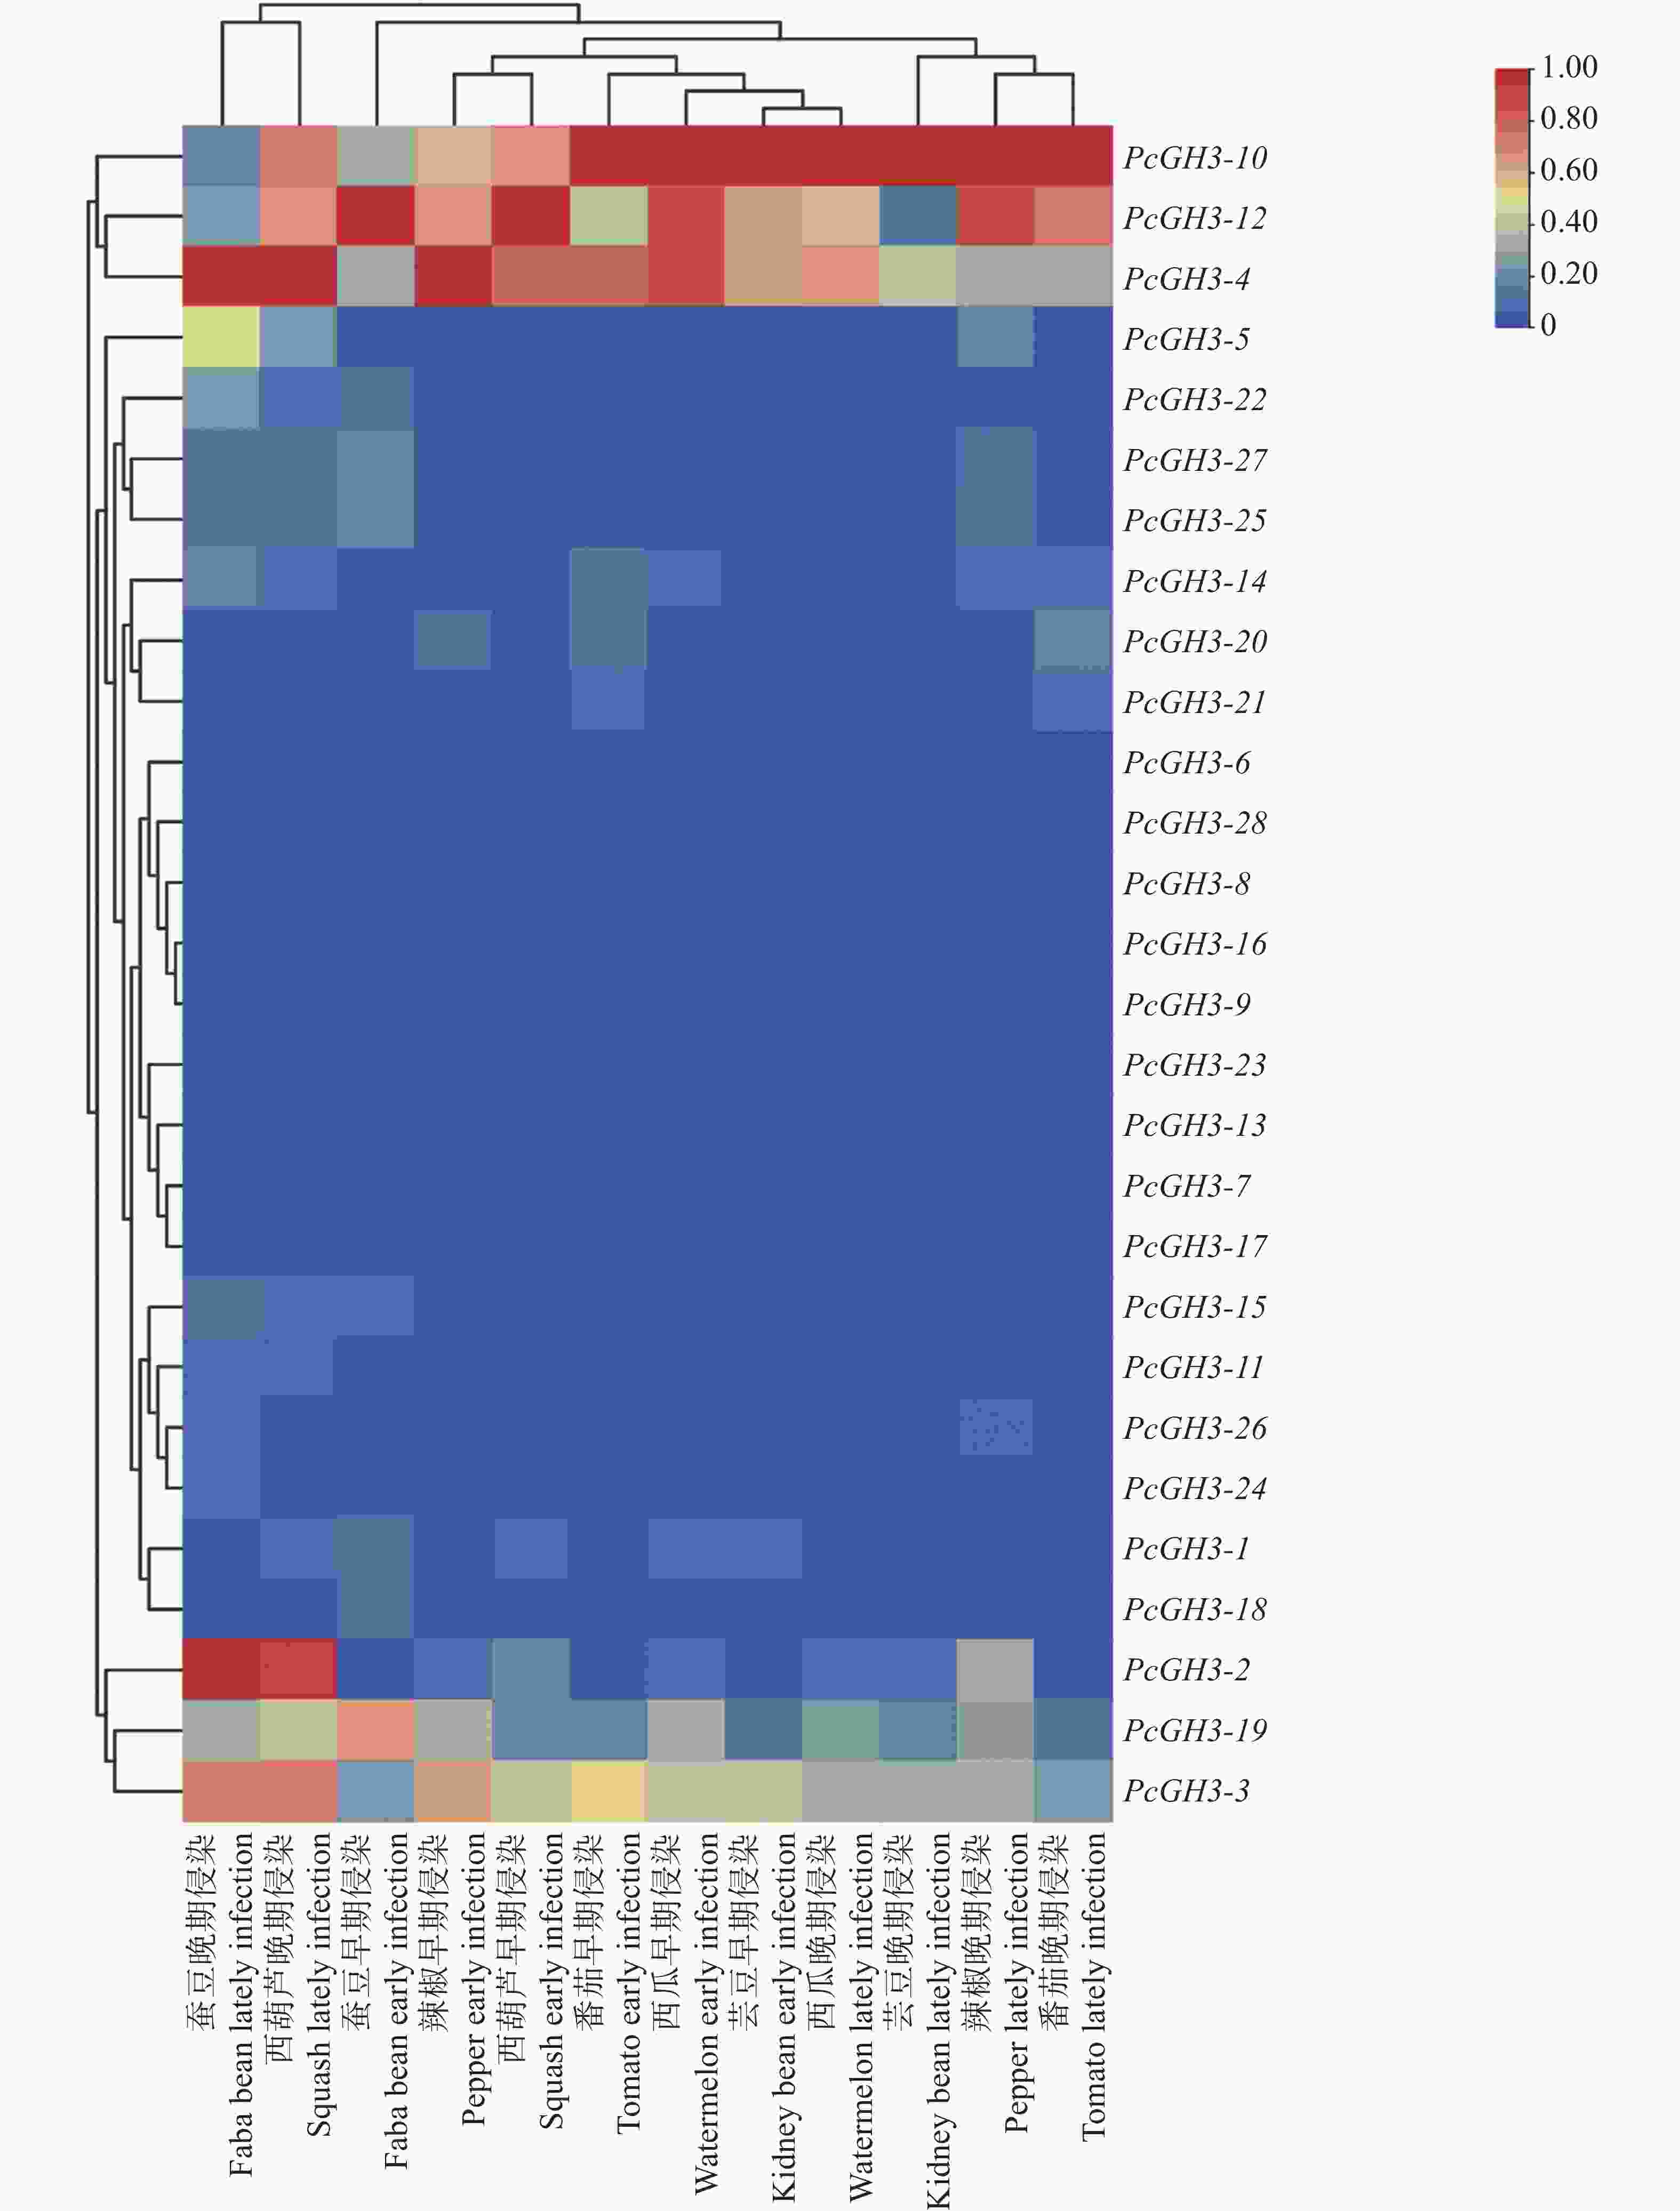
图 4 辣椒疫霉菌GH3基因家族成员侵染不同寄主时转录水平
Figure 4. Transcription level of GH3 gene family members of P. capsici infecting different hosts
辣椒疫霉菌GH3基因家族中的PcGH3-12通过NCBI的位点特异性迭代BLAST(Position-Specific Iterated BLAST)及反向BLASTp后检索得到44个物种(表4),进一步的系统进化发育表明,PcGH3-12与P. cactorum和P. infestans具有共同的进化关系。但与P. sojae存在一定的进化距离(图5)。同时,除了GH3结构域外,同样大部分也具有Fibronectin typeⅢ-like结构域(图5)。
表 4 物种种类信息
Table 4. Species information
登录号GenBank 物种名称Species Name 物种种类Species Type TYZ52676.1 [Pythium] brassicae(nom. inval.) 卵菌 AIG56284.1 Achlya hypogyna 卵菌 CCI44142.1 Albugo candida 卵菌 CCA27737.1 Albugo laibachii 卵菌 RHY95136.1 Aphanomyces astaci 卵菌 KAG9411740.1 Aphanomyces cochlioides 卵菌 KAH9079713.1 Aphanomyces euteiches 卵菌 RHY30244.1 Aphanomyces invadans 卵菌 KAF0684127.1 Aphanomyces stellatus 卵菌 XP_067814387.1 Bremia lactucae 卵菌 KAF1329267.1 Globisporangium splendens 卵菌 CAI5715517.1 Hyaloperonospora brassicae 卵菌 DBA03230.1 Lagenidium giganteum 卵菌 RLN13887.1 Nothophytophthora sp. Chile5 卵菌 KAI9906463.1 Peronosclerospora sorghi 卵菌 CAH0474296.1 Peronospora belbahrii 卵菌 CAI5741801.1 Peronospora destructor 卵菌 RQM09440.1 Peronospora effusa 卵菌 CAH0489132.1 Peronospora farinosa 卵菌 KAG6952226.1 Phytophthora aleatoria 卵菌 KAG7394890.1 Phytophthora boehmeriae 卵菌 KAG2846754.1 Phytophthora cactorum 卵菌 KAJ8520143.1 Phytophthora cinnamomi 卵菌 KAK1937012.1 Phytophthora citrophthora 卵菌 KAE8883255.1 Phytophthora fragariae 卵菌 GMF18360.1 Phytophthora fragariaefolia 卵菌 KAF4131432.1 Phytophthora infestans 卵菌 KAG2502365.1 Phytophthora kernoviae 卵菌 GMF10326.1 Phytophthora lilii 卵菌 OWZ02537.1 Phytophthora megakarya 卵菌 KUF66939.1 Phytophthora nicotianae 卵菌 KAL3673721.1 Phytophthora oleae 卵菌 POM58315.1 Phytophthora palmivora 卵菌 KAG7382608.1 Phytophthora pseudosyringae 卵菌 XP_067745200.1 Phytophthora ramorum 卵菌 KAE9025954.1 Phytophthora rubi 卵菌 XP_009514924.1 Phytophthora sojae 卵菌 XP_024581053.1 Plasmopara halstedii 卵菌 GLD91844.1 Pythium insidiosum 卵菌 TMW59545.1 Pythium oligandrum 卵菌 XP_008604021.1 Saprolegnia diclina VS20 卵菌 XP_012206904.1 Saprolegnia parasitica CBS 223.65 卵菌 XP_014149803.1 Sphaeroforma arctica JP610 真核生物 OQR91303.1 Thraustotheca clavata 卵菌 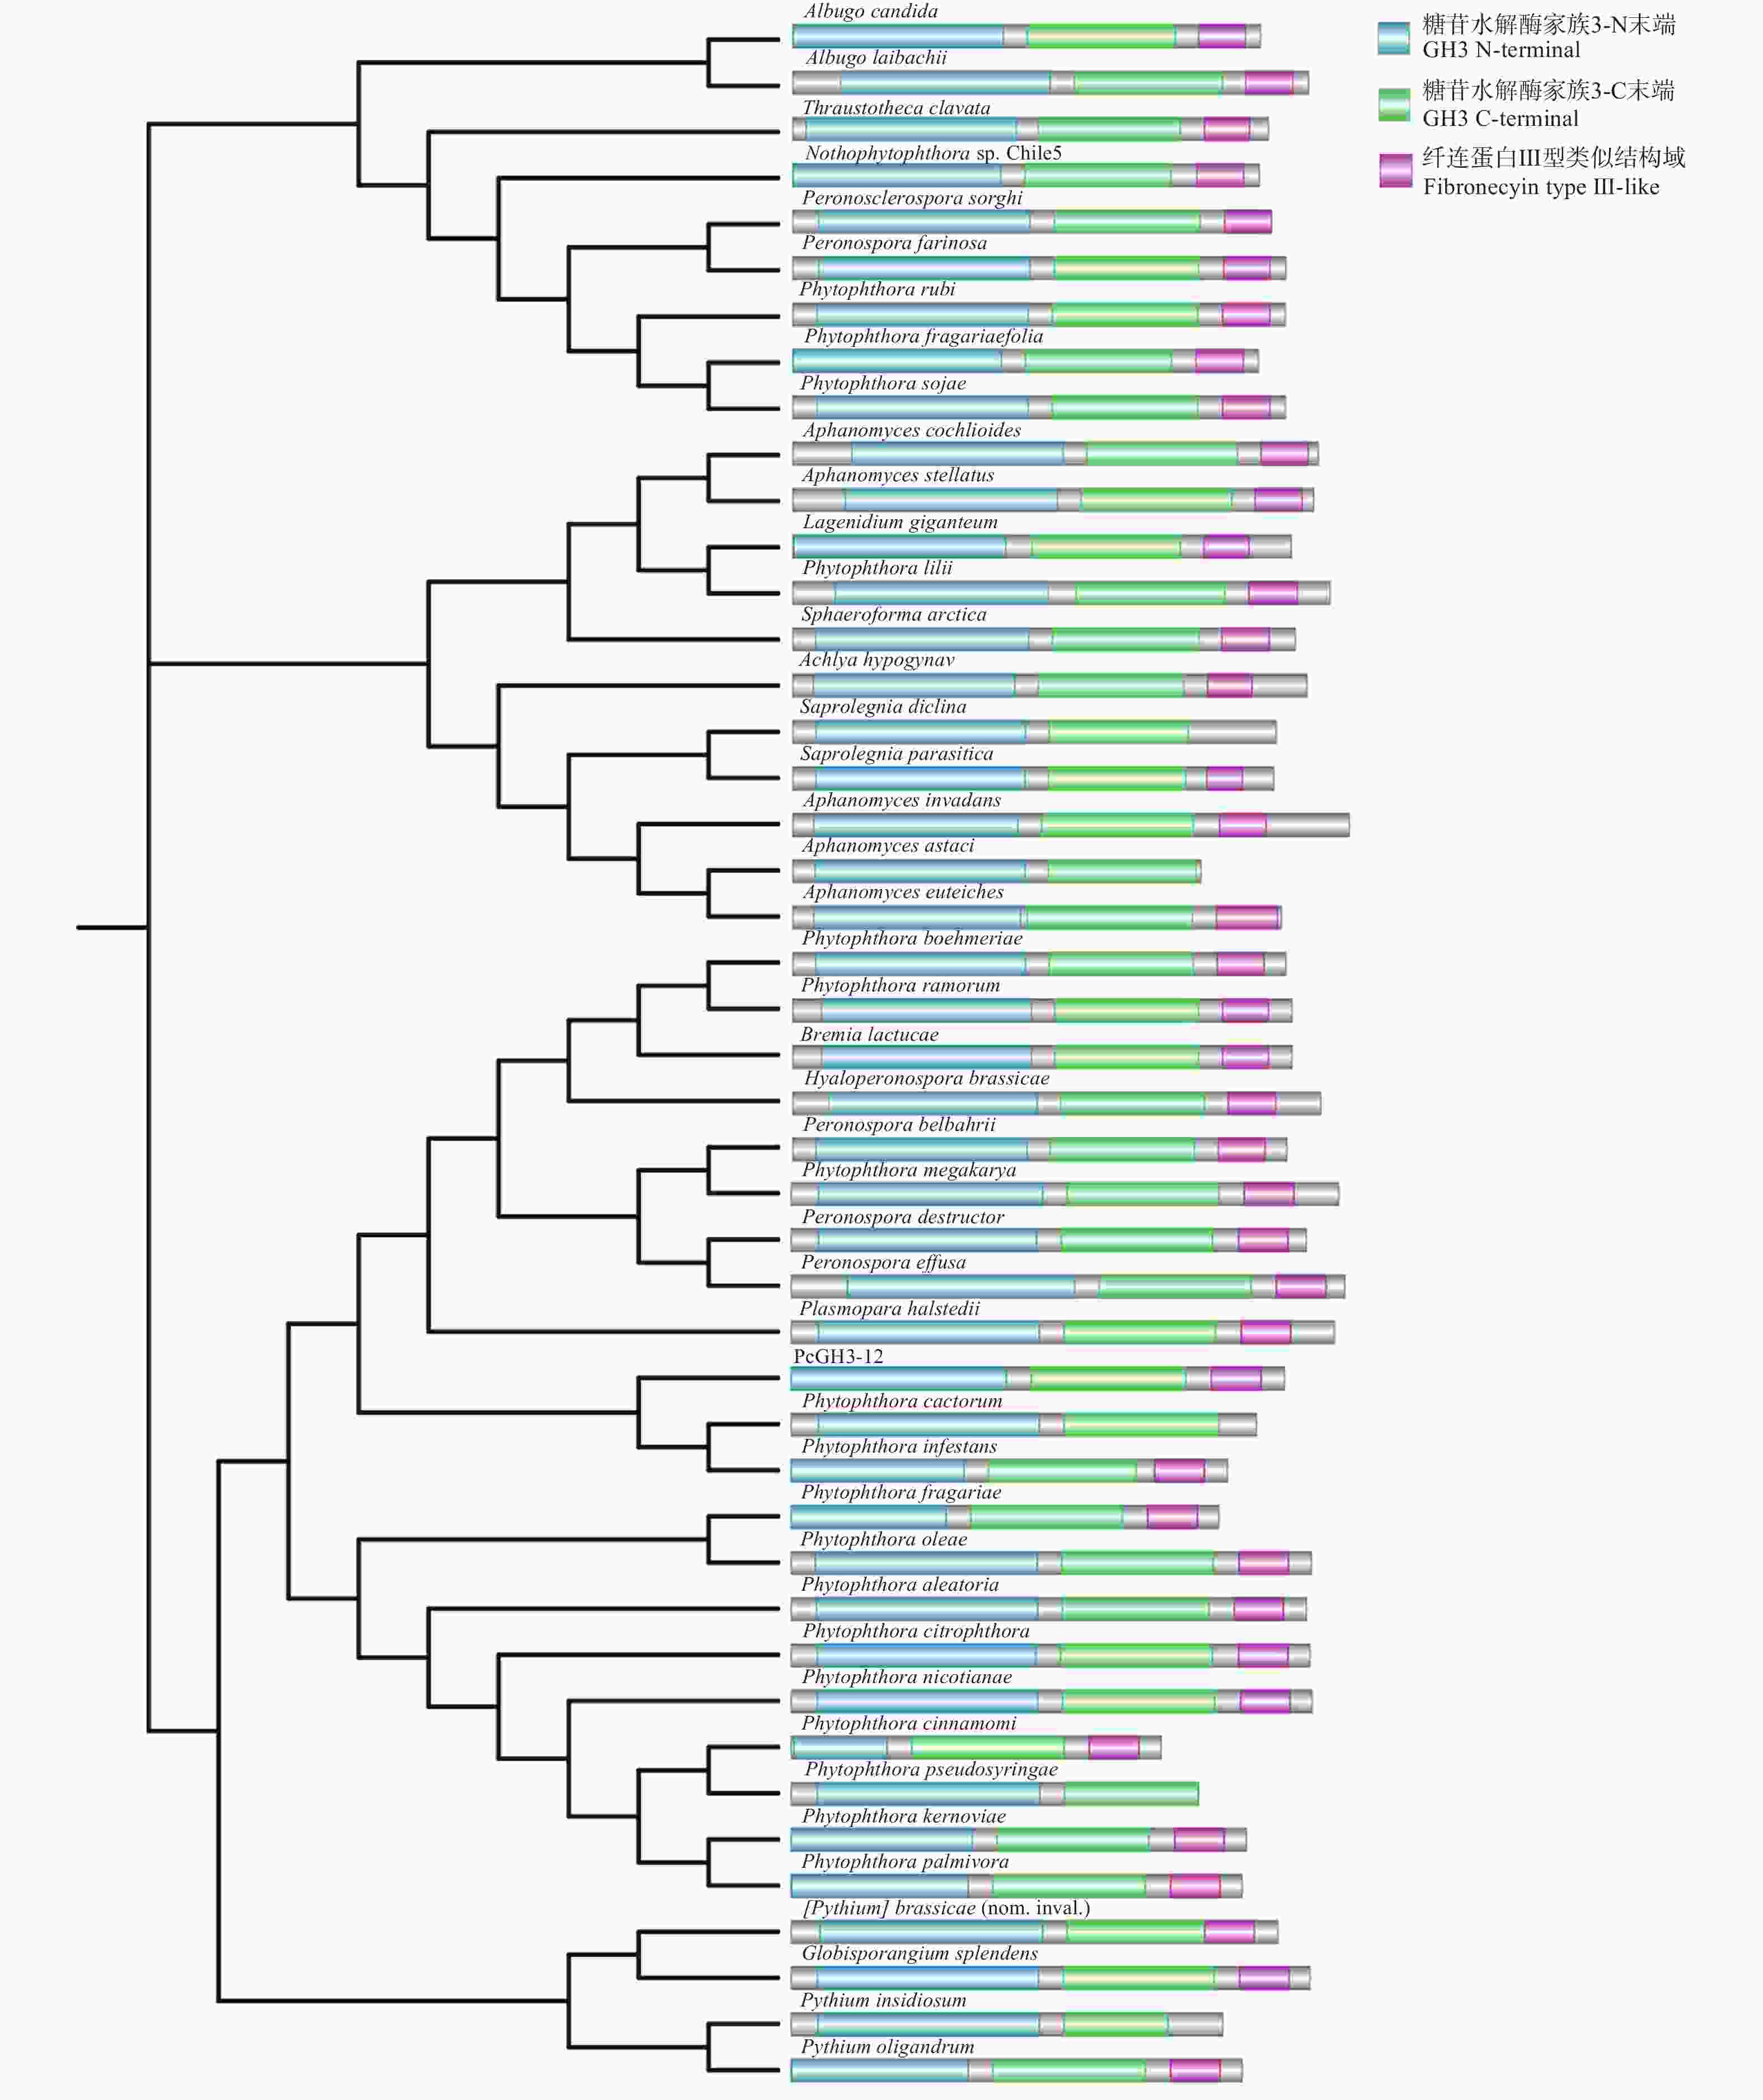
图 5 辣椒疫霉菌GH3基因家族系统发育树
Figure 5. Phylogenetic tree of GH3 gene family members of P. capsici
-
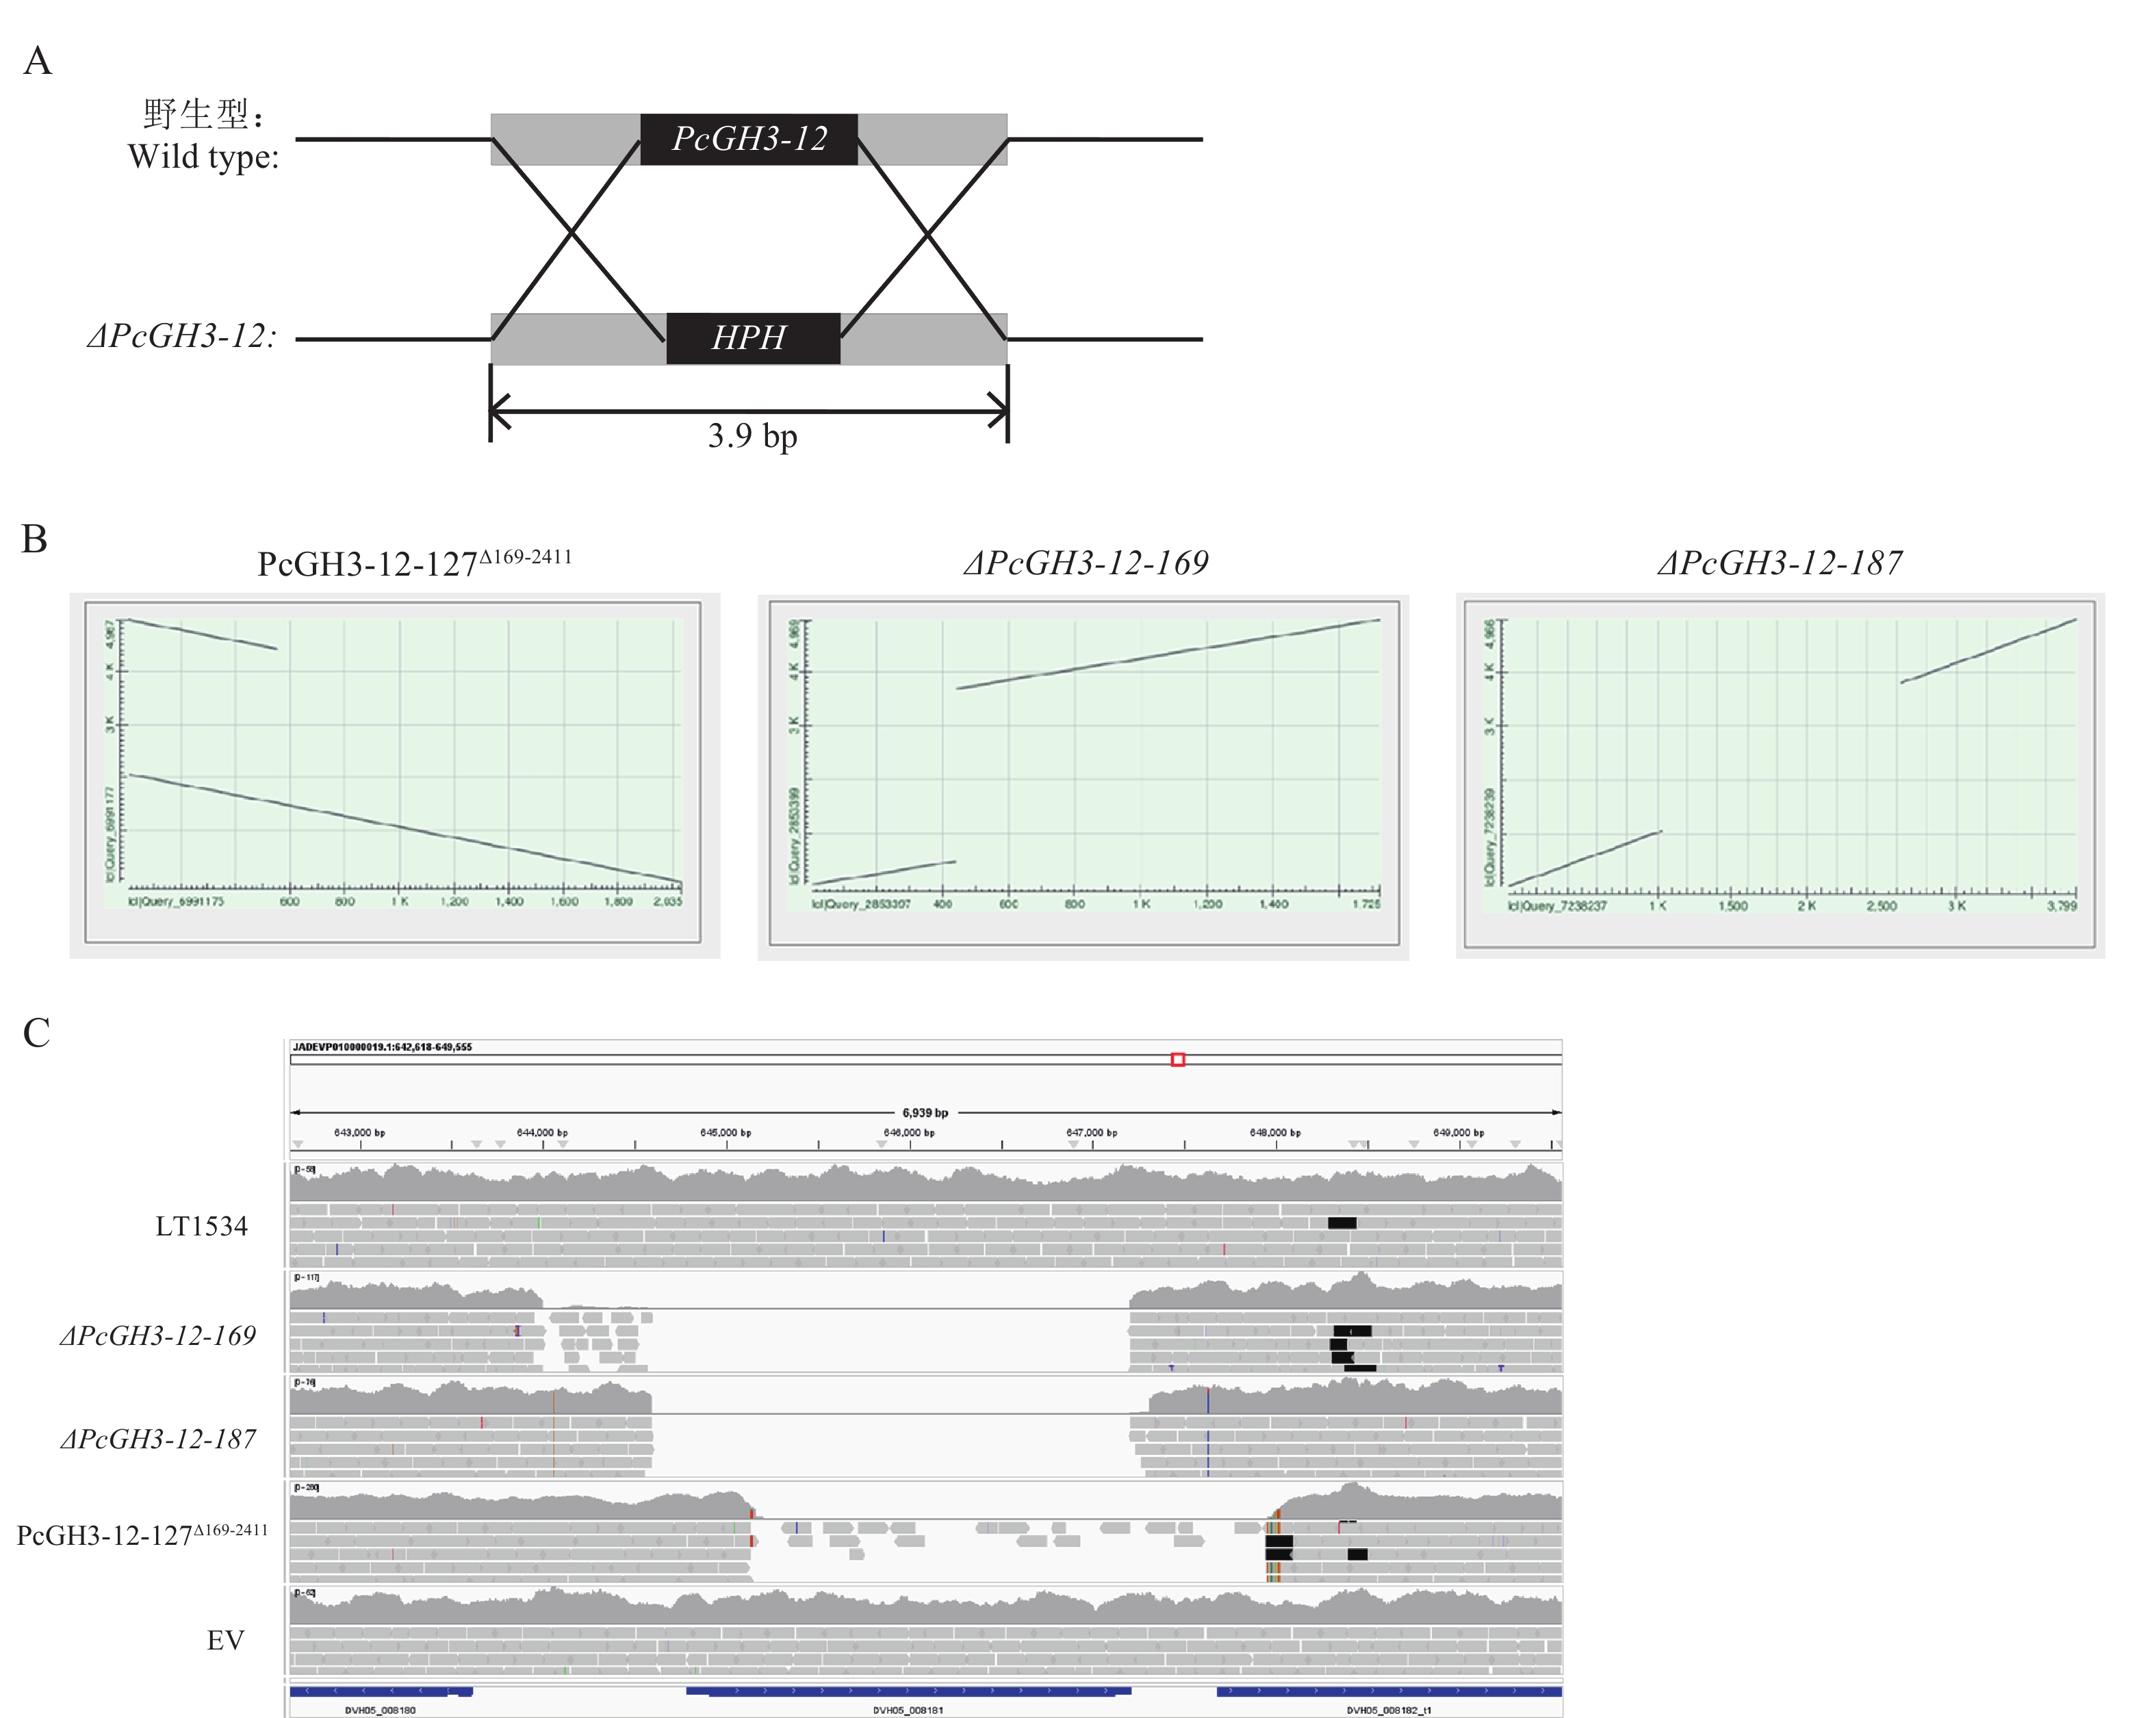
本研究通过同源重组及CRISPR-Cas9技术(图6-A),经过抗性筛选,用CTAB法提取候选突变体的DNA,使用引物(表1)验证PcGH3-12的ORF,进一步用引物(表1)扩增候选突变体的DNA并送生工生物工程(上海)股份有限公司测序(图6-B),并将菌丝送往武汉万摩科技有限公司进行全基因组测序(图6-C)。通过测序验证,获得了PcGH3-12的三个敲除突变体,分别命名为∆PcGH3-12-169、∆PcGH3-12-187、PcGH3-12-127∆169-
2411 ,其中∆PcGH3-12-169、∆PcGH3-12-187全敲突变体,PcGH3-12-127∆169-2411 为敲除编辑突变体,仅部分点位被敲除。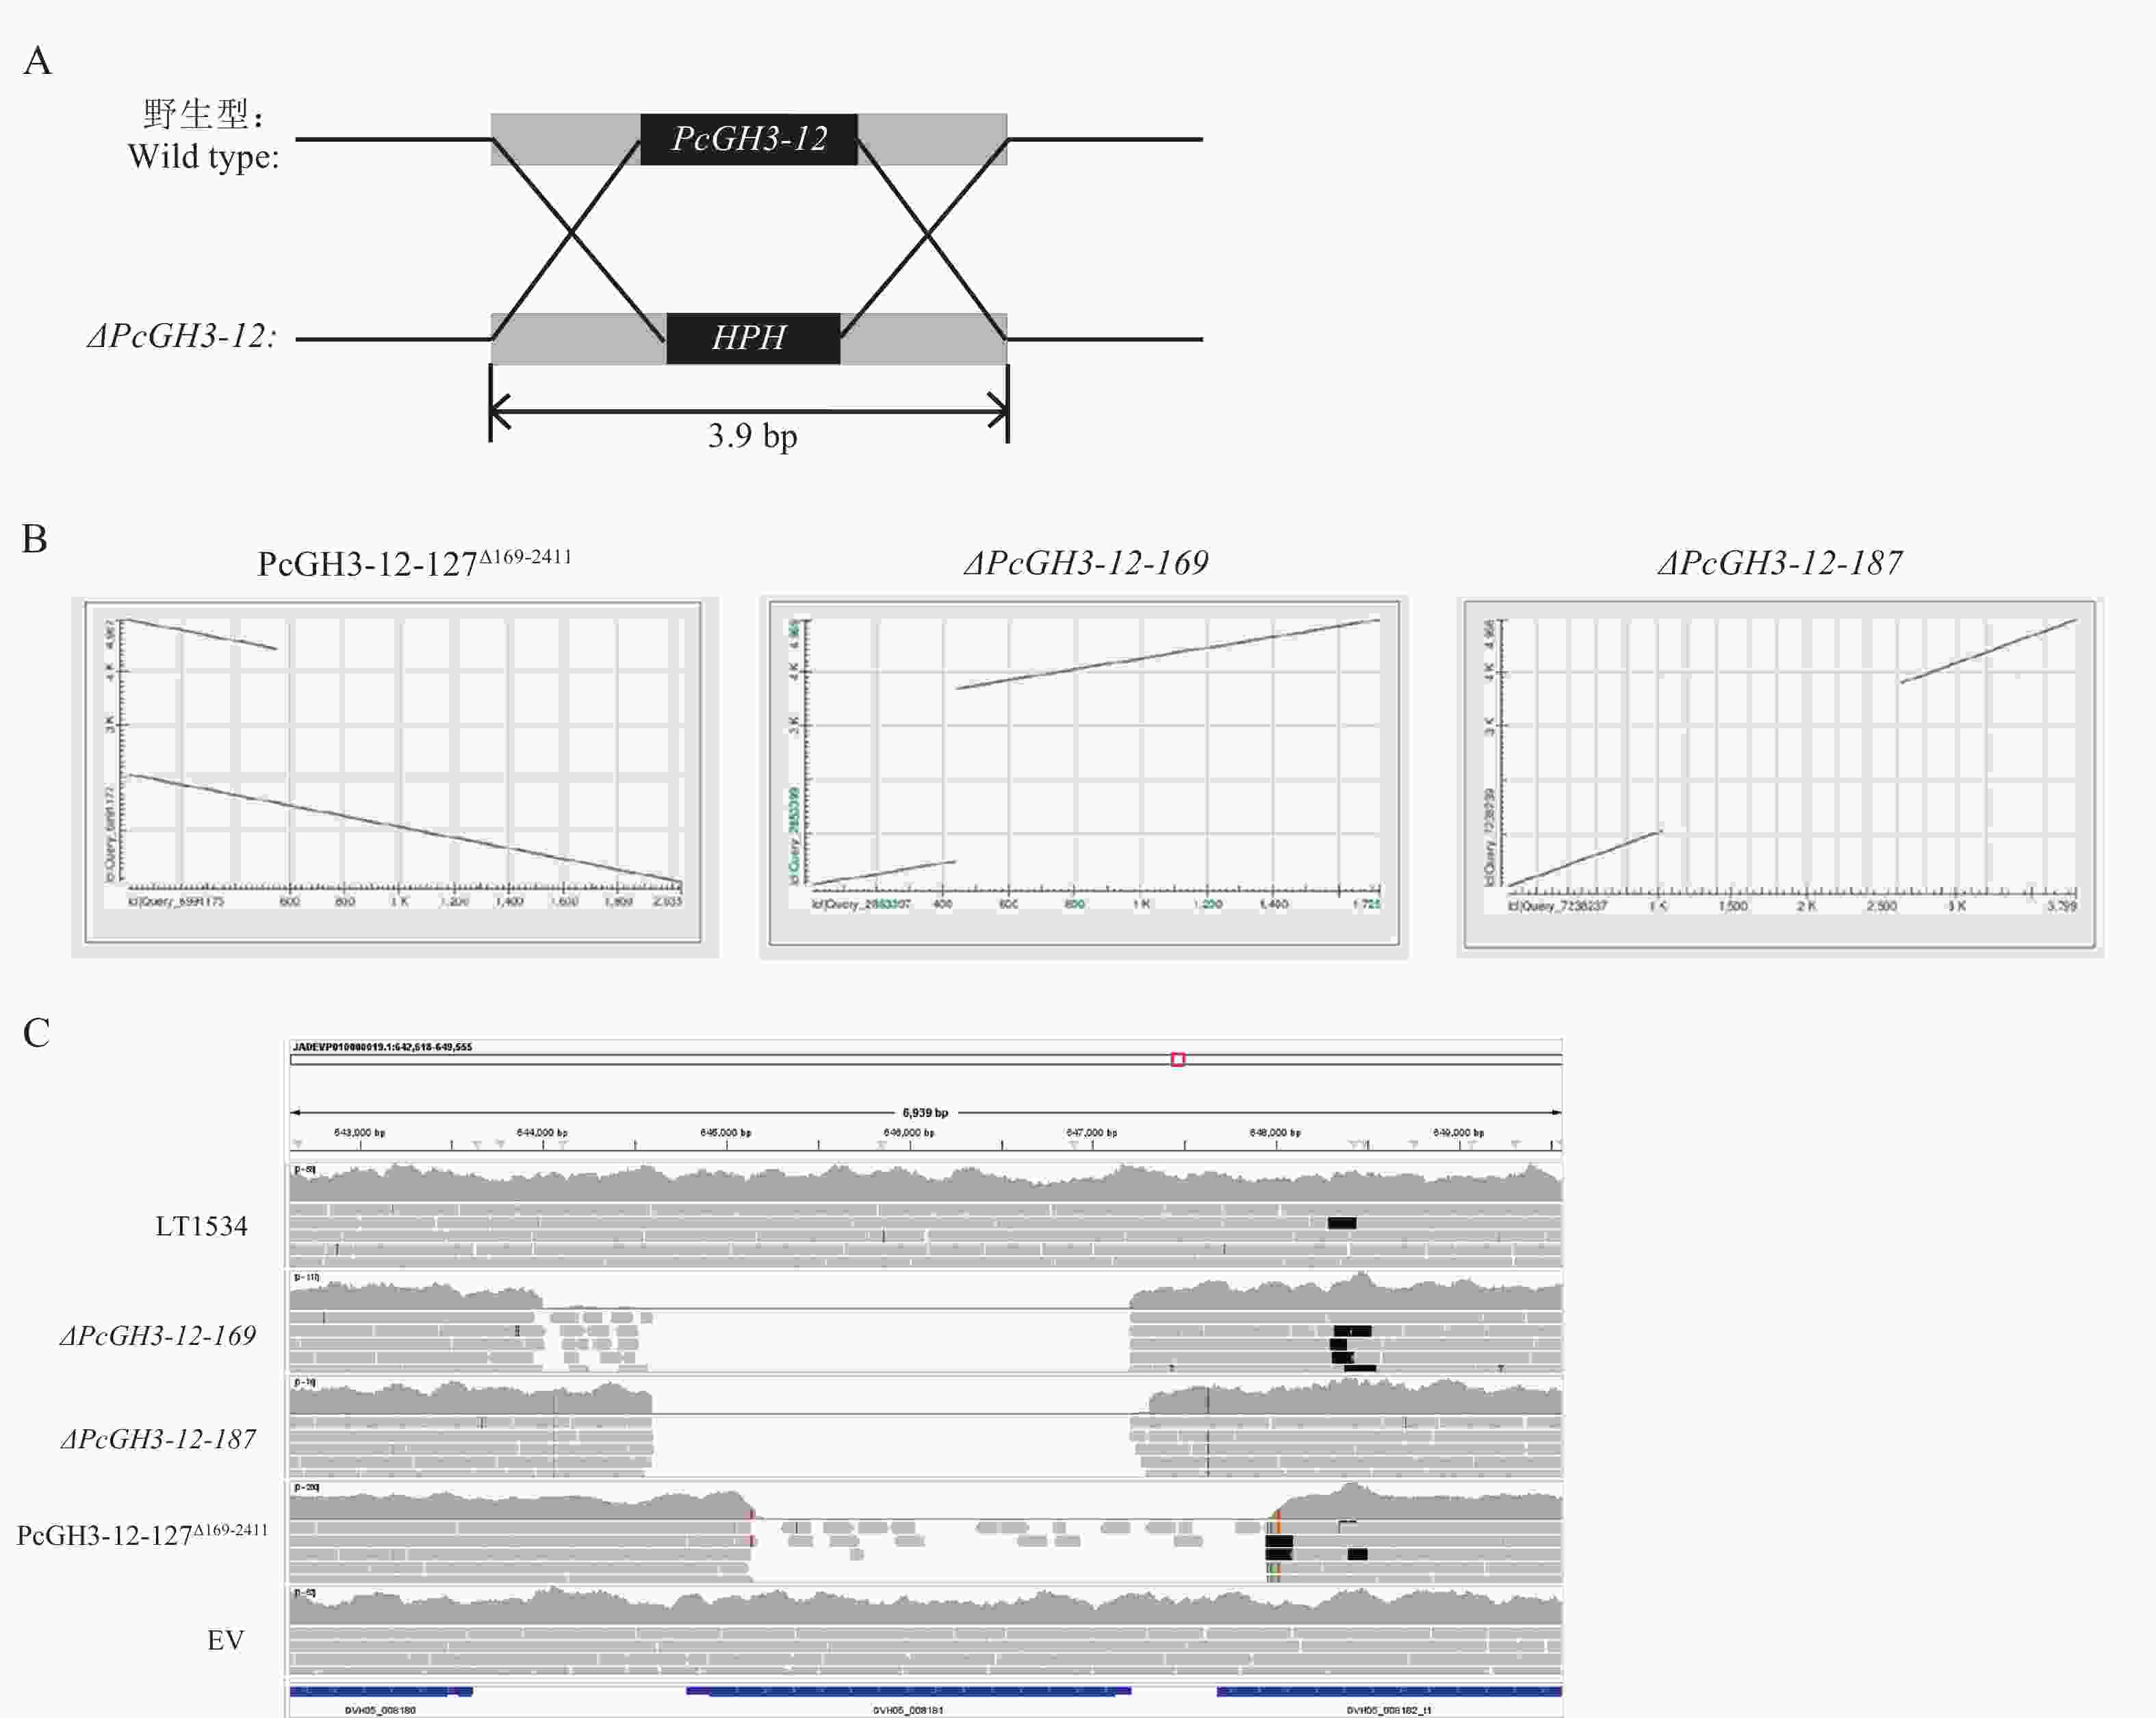
图 6 PcGH3-12敲除转化子验证
Figure 6. Verification of PcGH3-12 knockout transformants
-
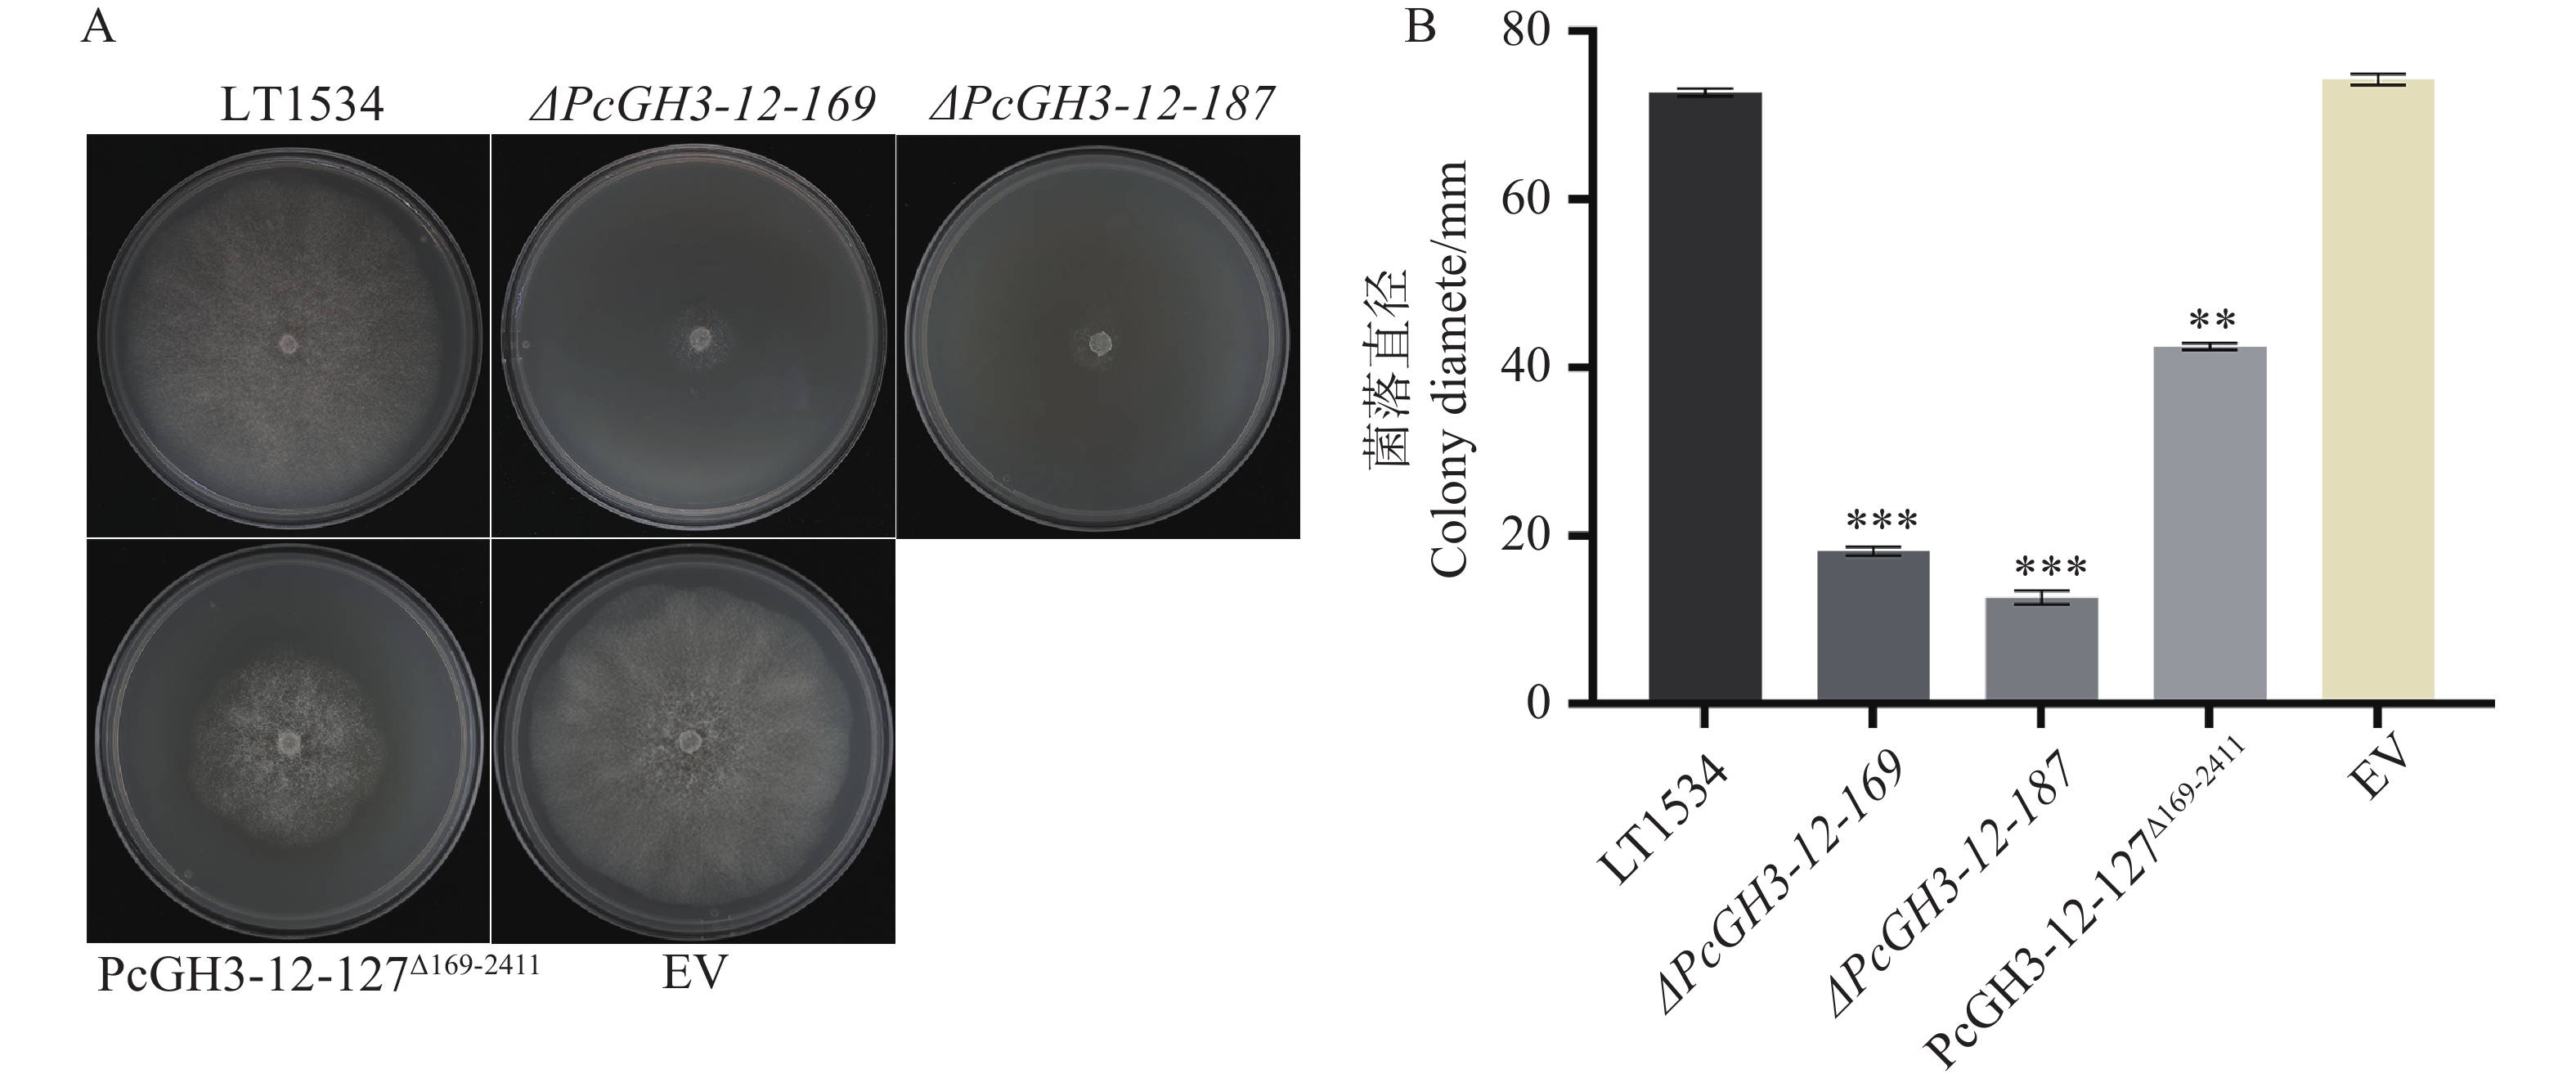
菌丝的发育对辣椒疫霉菌的成功侵染至关重要。为了确定PcGH3-12对辣椒疫霉菌营养生长的影响,将野生型LT1534、突变体菌株∆PcGH3-12-169、∆PcGH3-12-187、PcGH3-12-127 ∆169-
2411 以及EV菌株分别接种到TA培养基上25℃避光培养4 d后,观察菌落形态并测量菌落直径,结果显示,LT1534、EV、∆PcGH3-12-169、∆PcGH3-12-187和PcGH3-12-127∆169-2411 菌株的生长直径分别为:72.74±0.47 mm、74.28±0.63 mm、18.18±0.52 mm、12.67±0.82 mm和42.52±0.43 mm,在营养充足的生长条件下,突变菌株的生长速度明显慢于野生型菌株,突变体菌株的菌落形态无明显差异(图7)。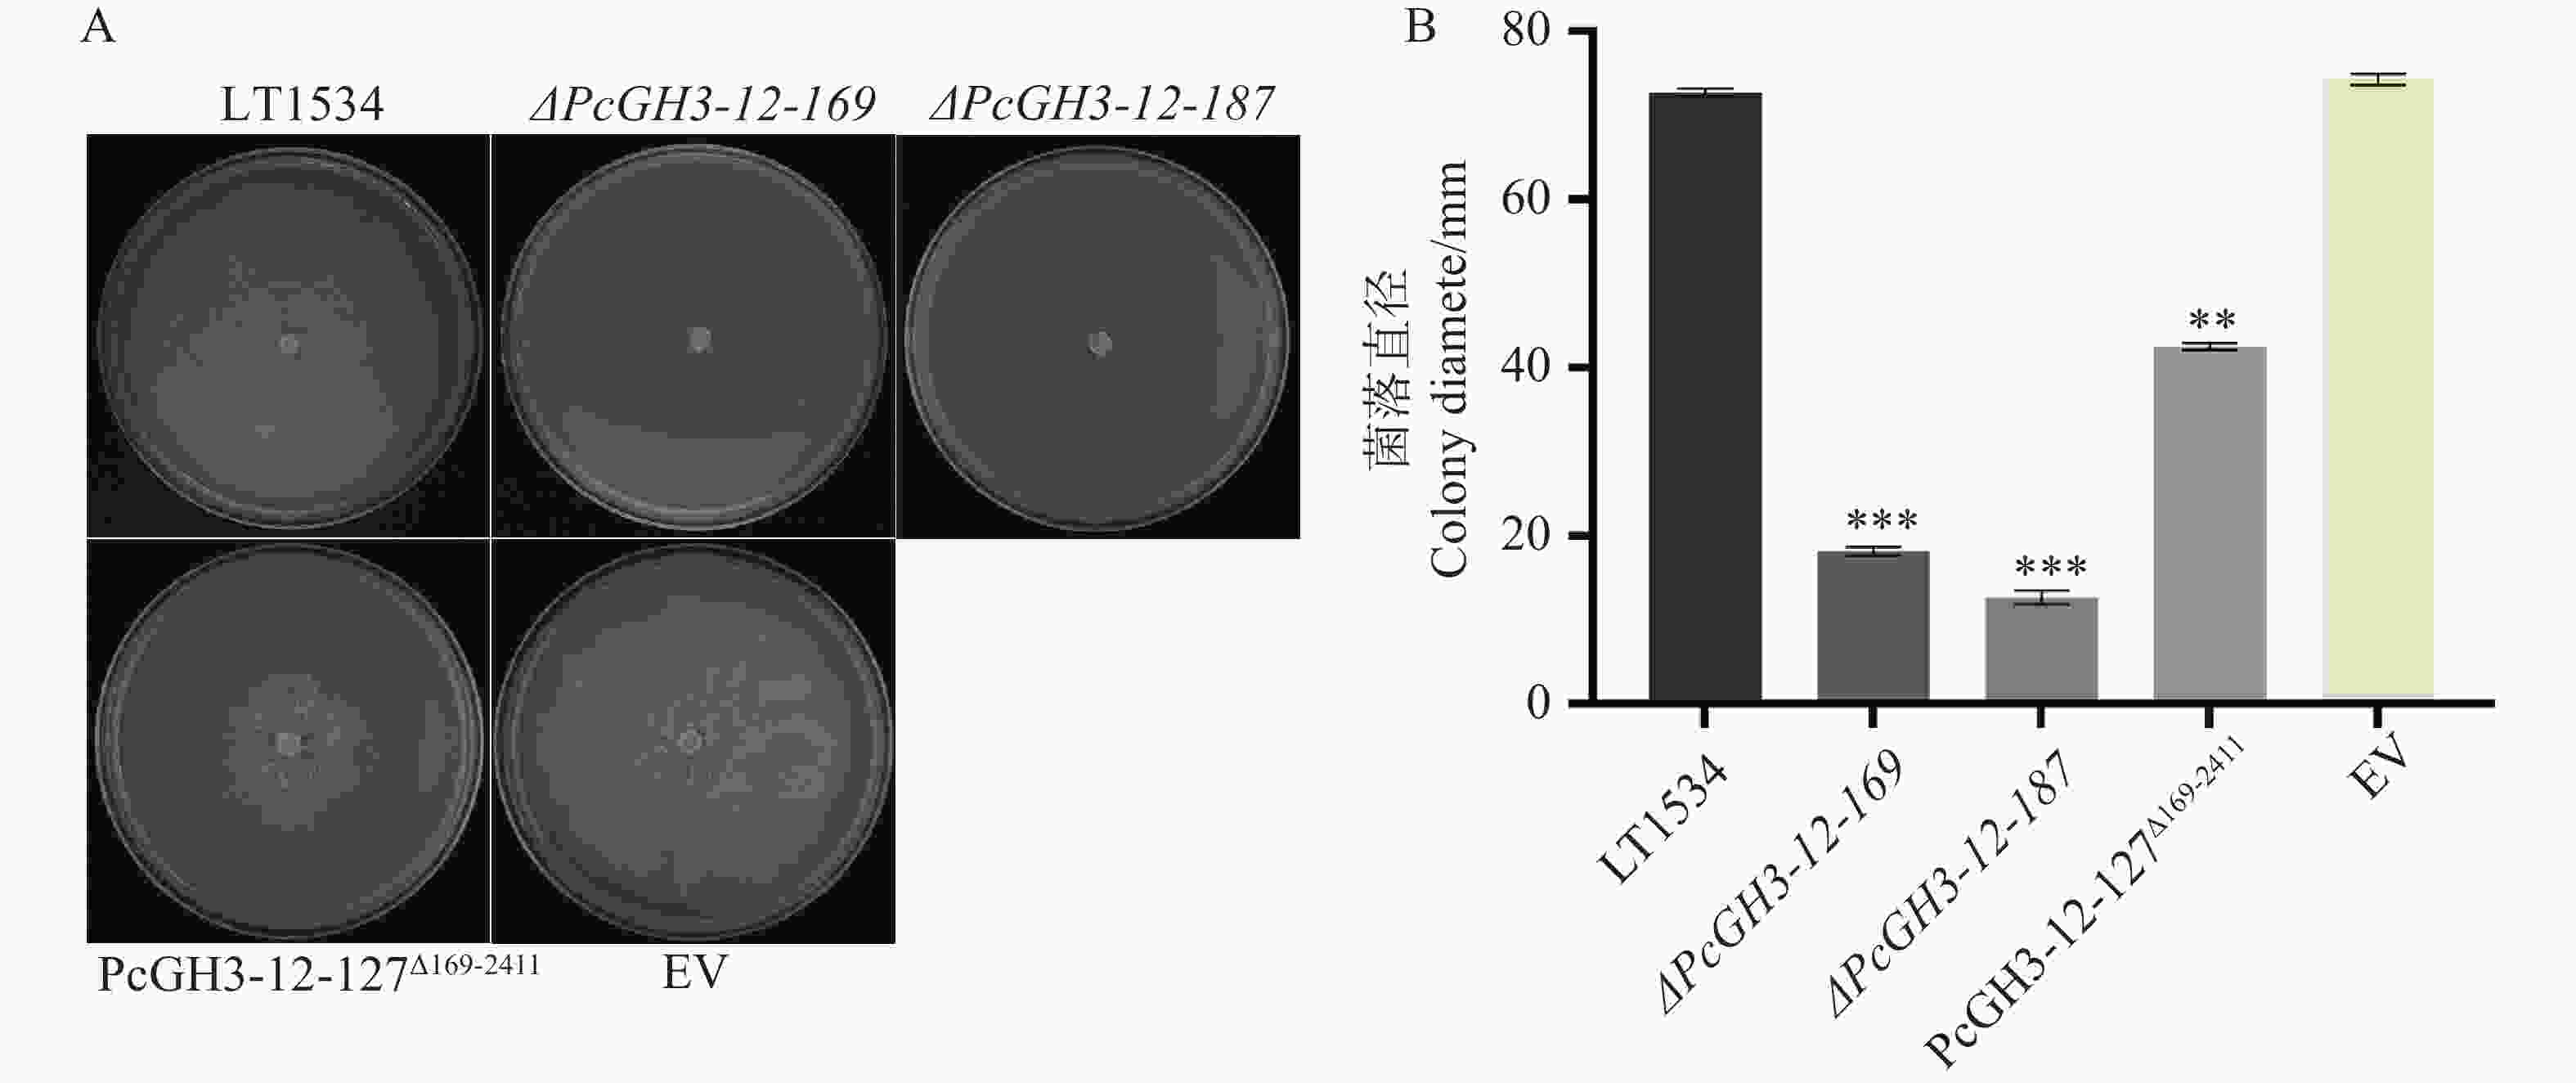
图 7 PcGH3-12缺失影响辣椒疫霉菌营养生长
Figure 7. Deletion of PcGH3-12 affects the vegetative growth of P. capsici
-
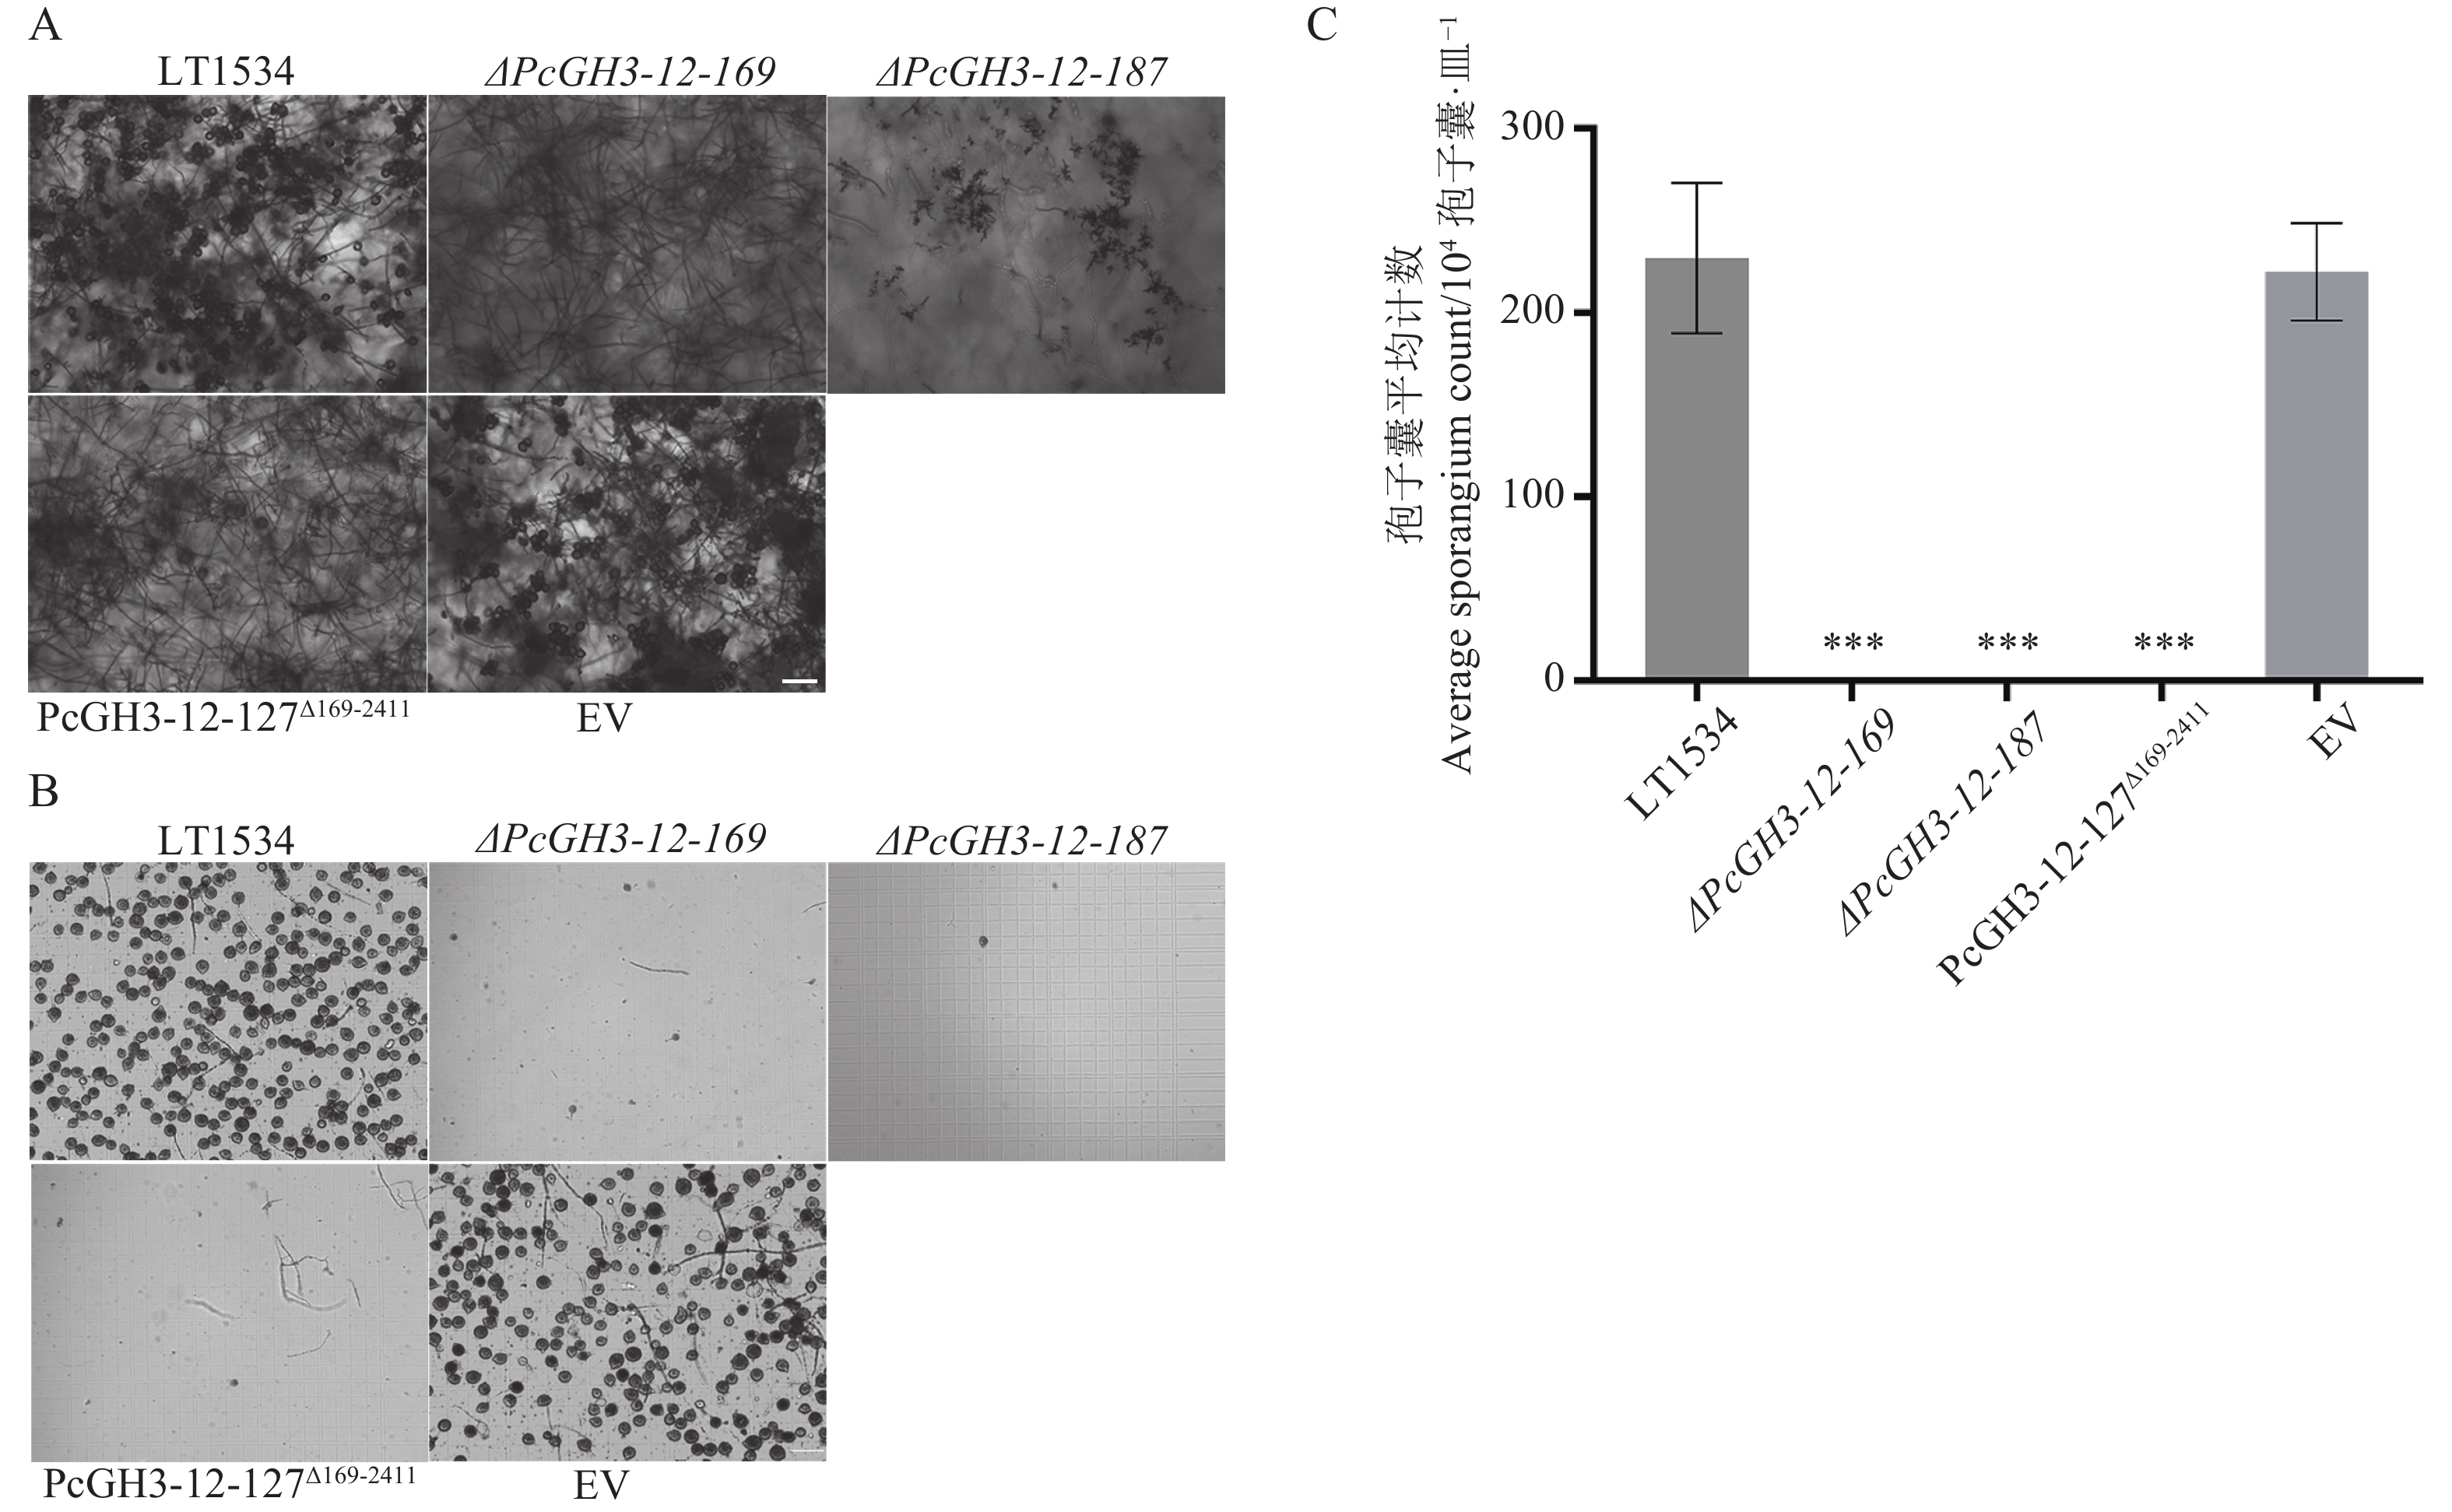
辣椒疫病是一种典型的多周期疫病,该菌的无性繁殖孢子是其传播致病关键环节。为明确PcGH3-12基因对无性生殖的影响,将野生型菌株和突变体菌株在25℃黑暗下培养4 d后,28℃光照条件下诱导2 d使辣椒疫霉菌产孢,收集孢子囊悬浮液后,对菌株产生的孢子囊进行了定量和定性评价。统计结果显示,同样单位面积下,10 μL孢子囊悬浮液中LT1534、EV、∆PcGH3-12-169、∆PcGH3-12-187和PcGH3-12-127∆169-
2411 菌株孢子囊数量分别为:229.67±40.83、222.11±26.45、0.67±0.33、0和0.22±0.19个,ΔPcGH3-12突变体菌株产生的孢子囊数量显著减少,孢子囊形态保持不变(图8)。结果表明,PcGH3-12基因的缺失严重影响了辣椒疫霉菌产生孢子囊的能力。PcGH3-12在辣椒疫霉菌的无性繁殖中发挥着重要的调控作用。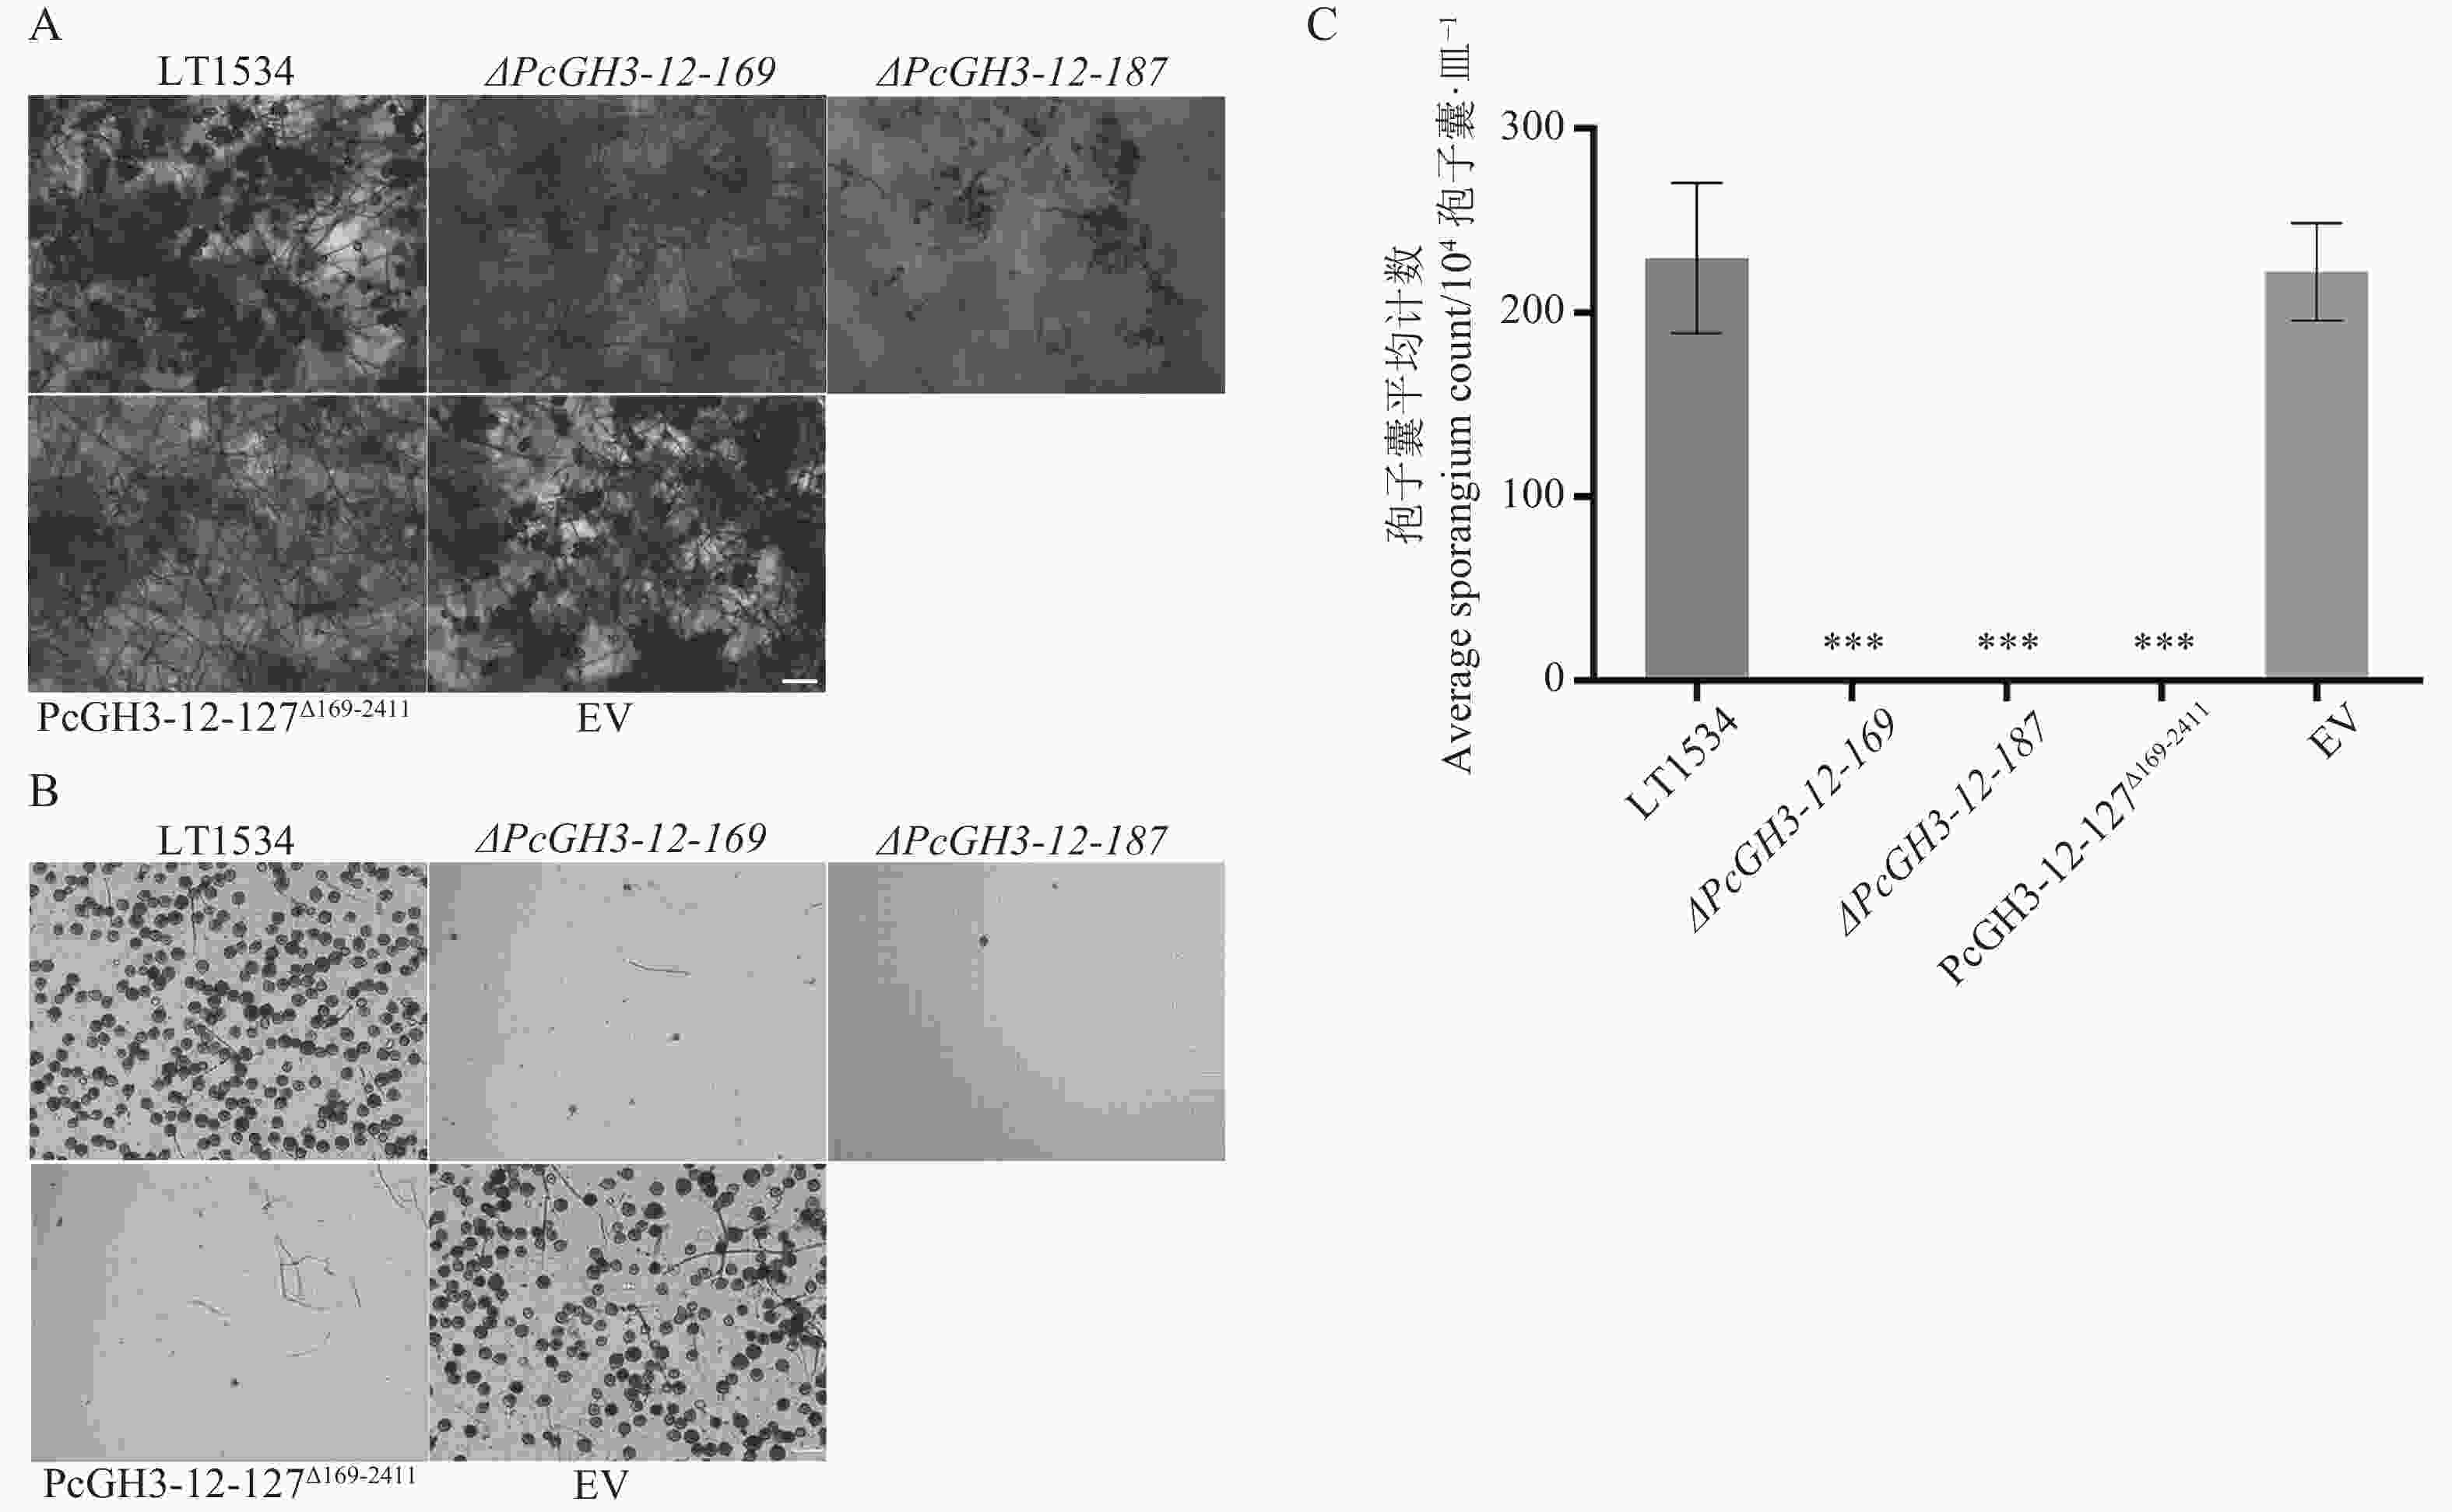
图 8 PcGH3-12缺失导致辣椒疫霉菌产孢能力显著降低
Figure 8. The deletion of PcGH3-12 in P. capsici resulted in significant decrease in sporulation ability
-
为探究PcGH3-12在辣椒疫霉菌致病过程中的作用,将液体培养基培养后的野生型LT1534、ΔPcGH3-12突变体菌株和空载体对照EV菌株的菌丝体分别接种于感病辣椒品种HNUCB0226的叶前组织上。病斑面积数据分析显示,LT1534、EV、∆PcGH3-12-169、∆PcGH3-12-187 和PcGH3-12-127 ∆169-
2411 菌株的病斑面积分别为:527.15±239.77、422.06±145.48、48.04±35.55、27.87±19.09和109.10±65.62 mm2,与野生型LT1534和空载体EV菌株相比,ΔPcGH3-12突变体菌株表现出明显的毒力缺陷,显著抑制辣椒疫霉菌的致病性(图9),表明PcGH3-12的缺失对辣椒疫霉菌的致病性有一定的影响。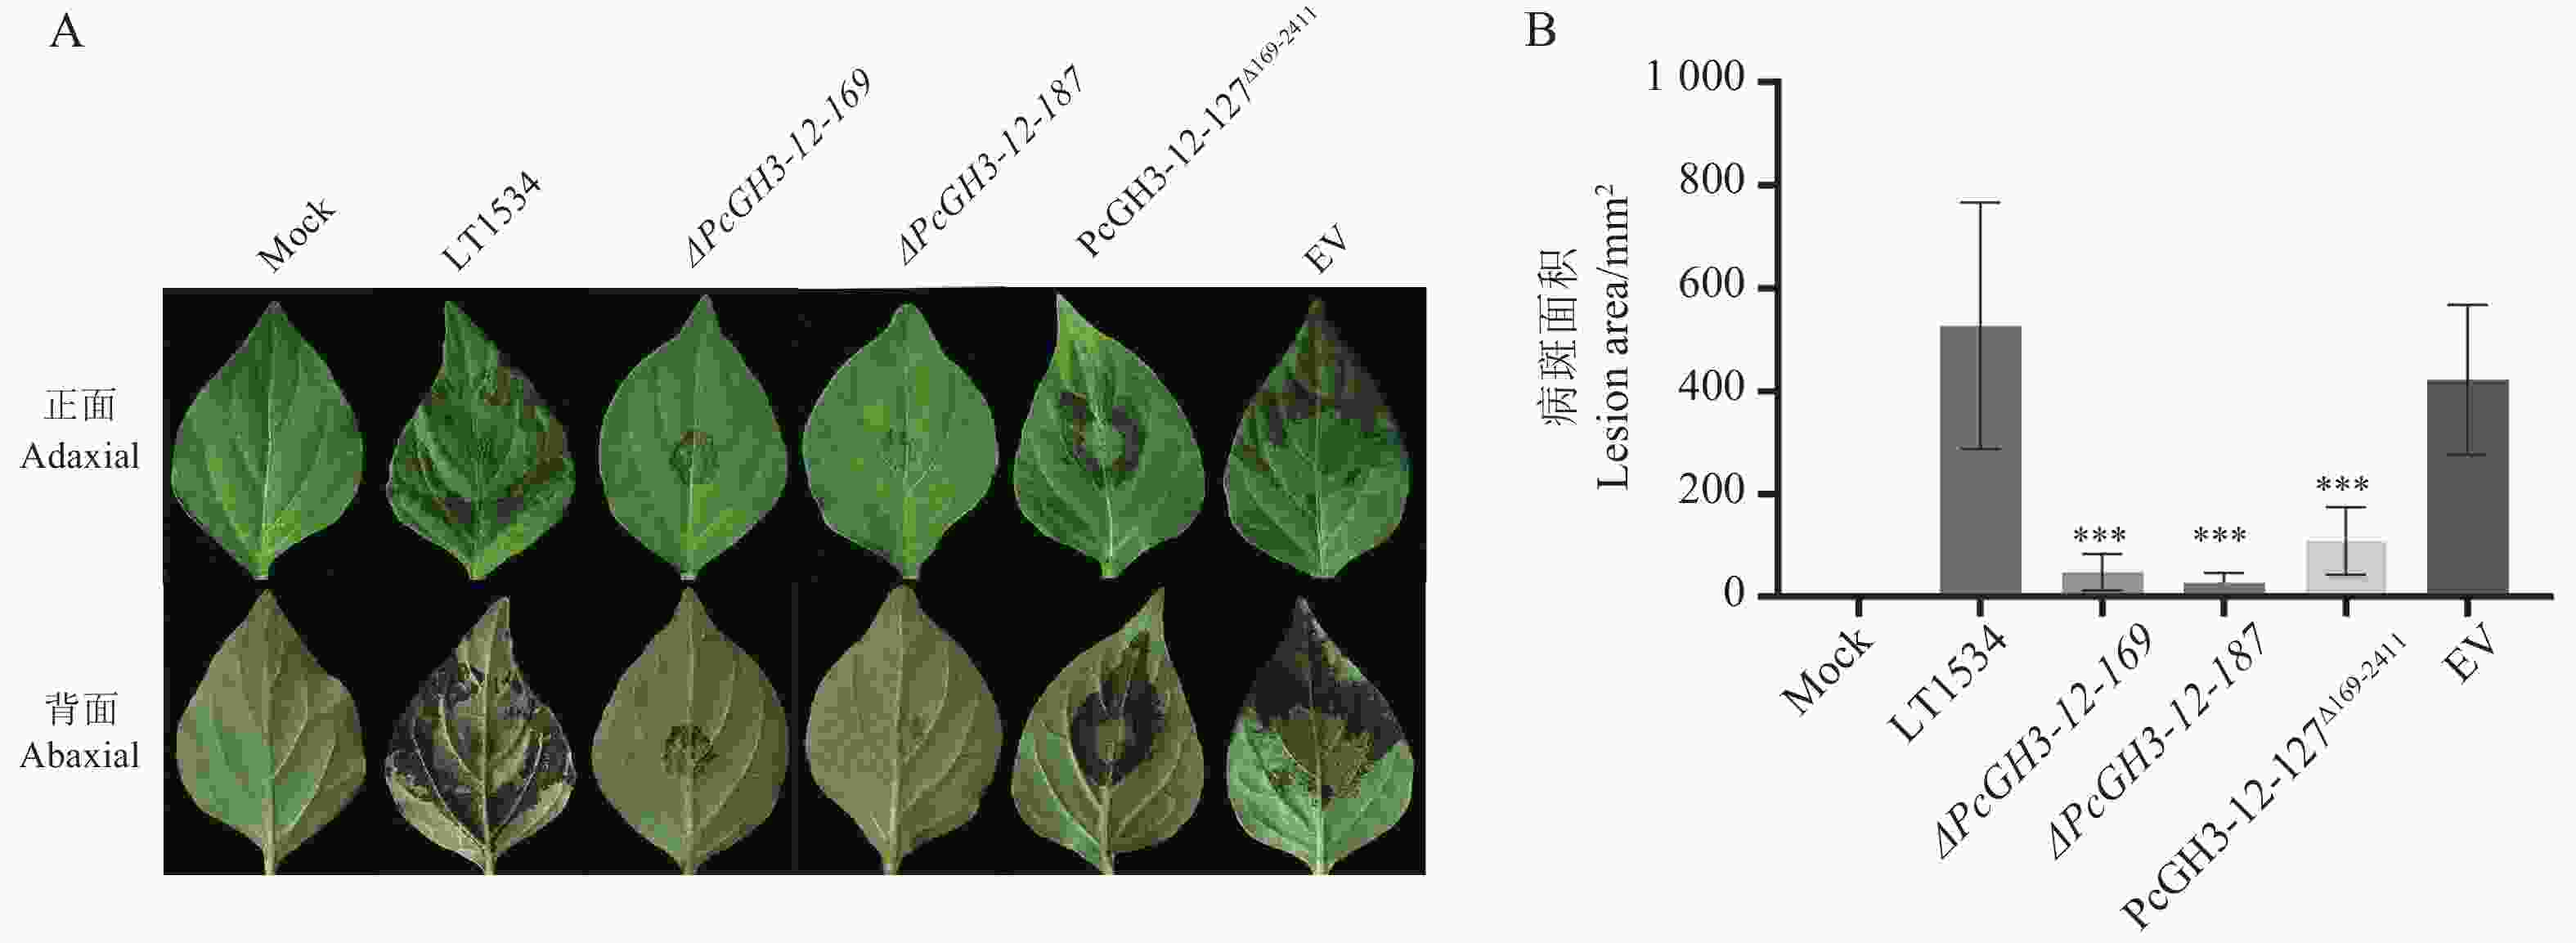
图 9 PcGH3-12影响辣椒疫霉菌致病力
Figure 9. PcGH3-12 is involved in the pathogenicity of P. capsici
-
在产孢实验中,观察到突变体的菌丝形态发生了改变,对野生型和突变体菌株的菌丝进行了不同时间段的观察。与辣椒疫霉菌野生型LT1534菌株和EV菌株相比,ΔPcGH3-12突变体的菌丝形态存在明显差异,表现为孢囊梗分叉速度加快,孢囊梗顶端发育孢子囊将其释放到外界,与病原菌的致病扩散策略密切相关。实验表明PcGH3-12基因参与调控孢囊梗的生长(图10)。
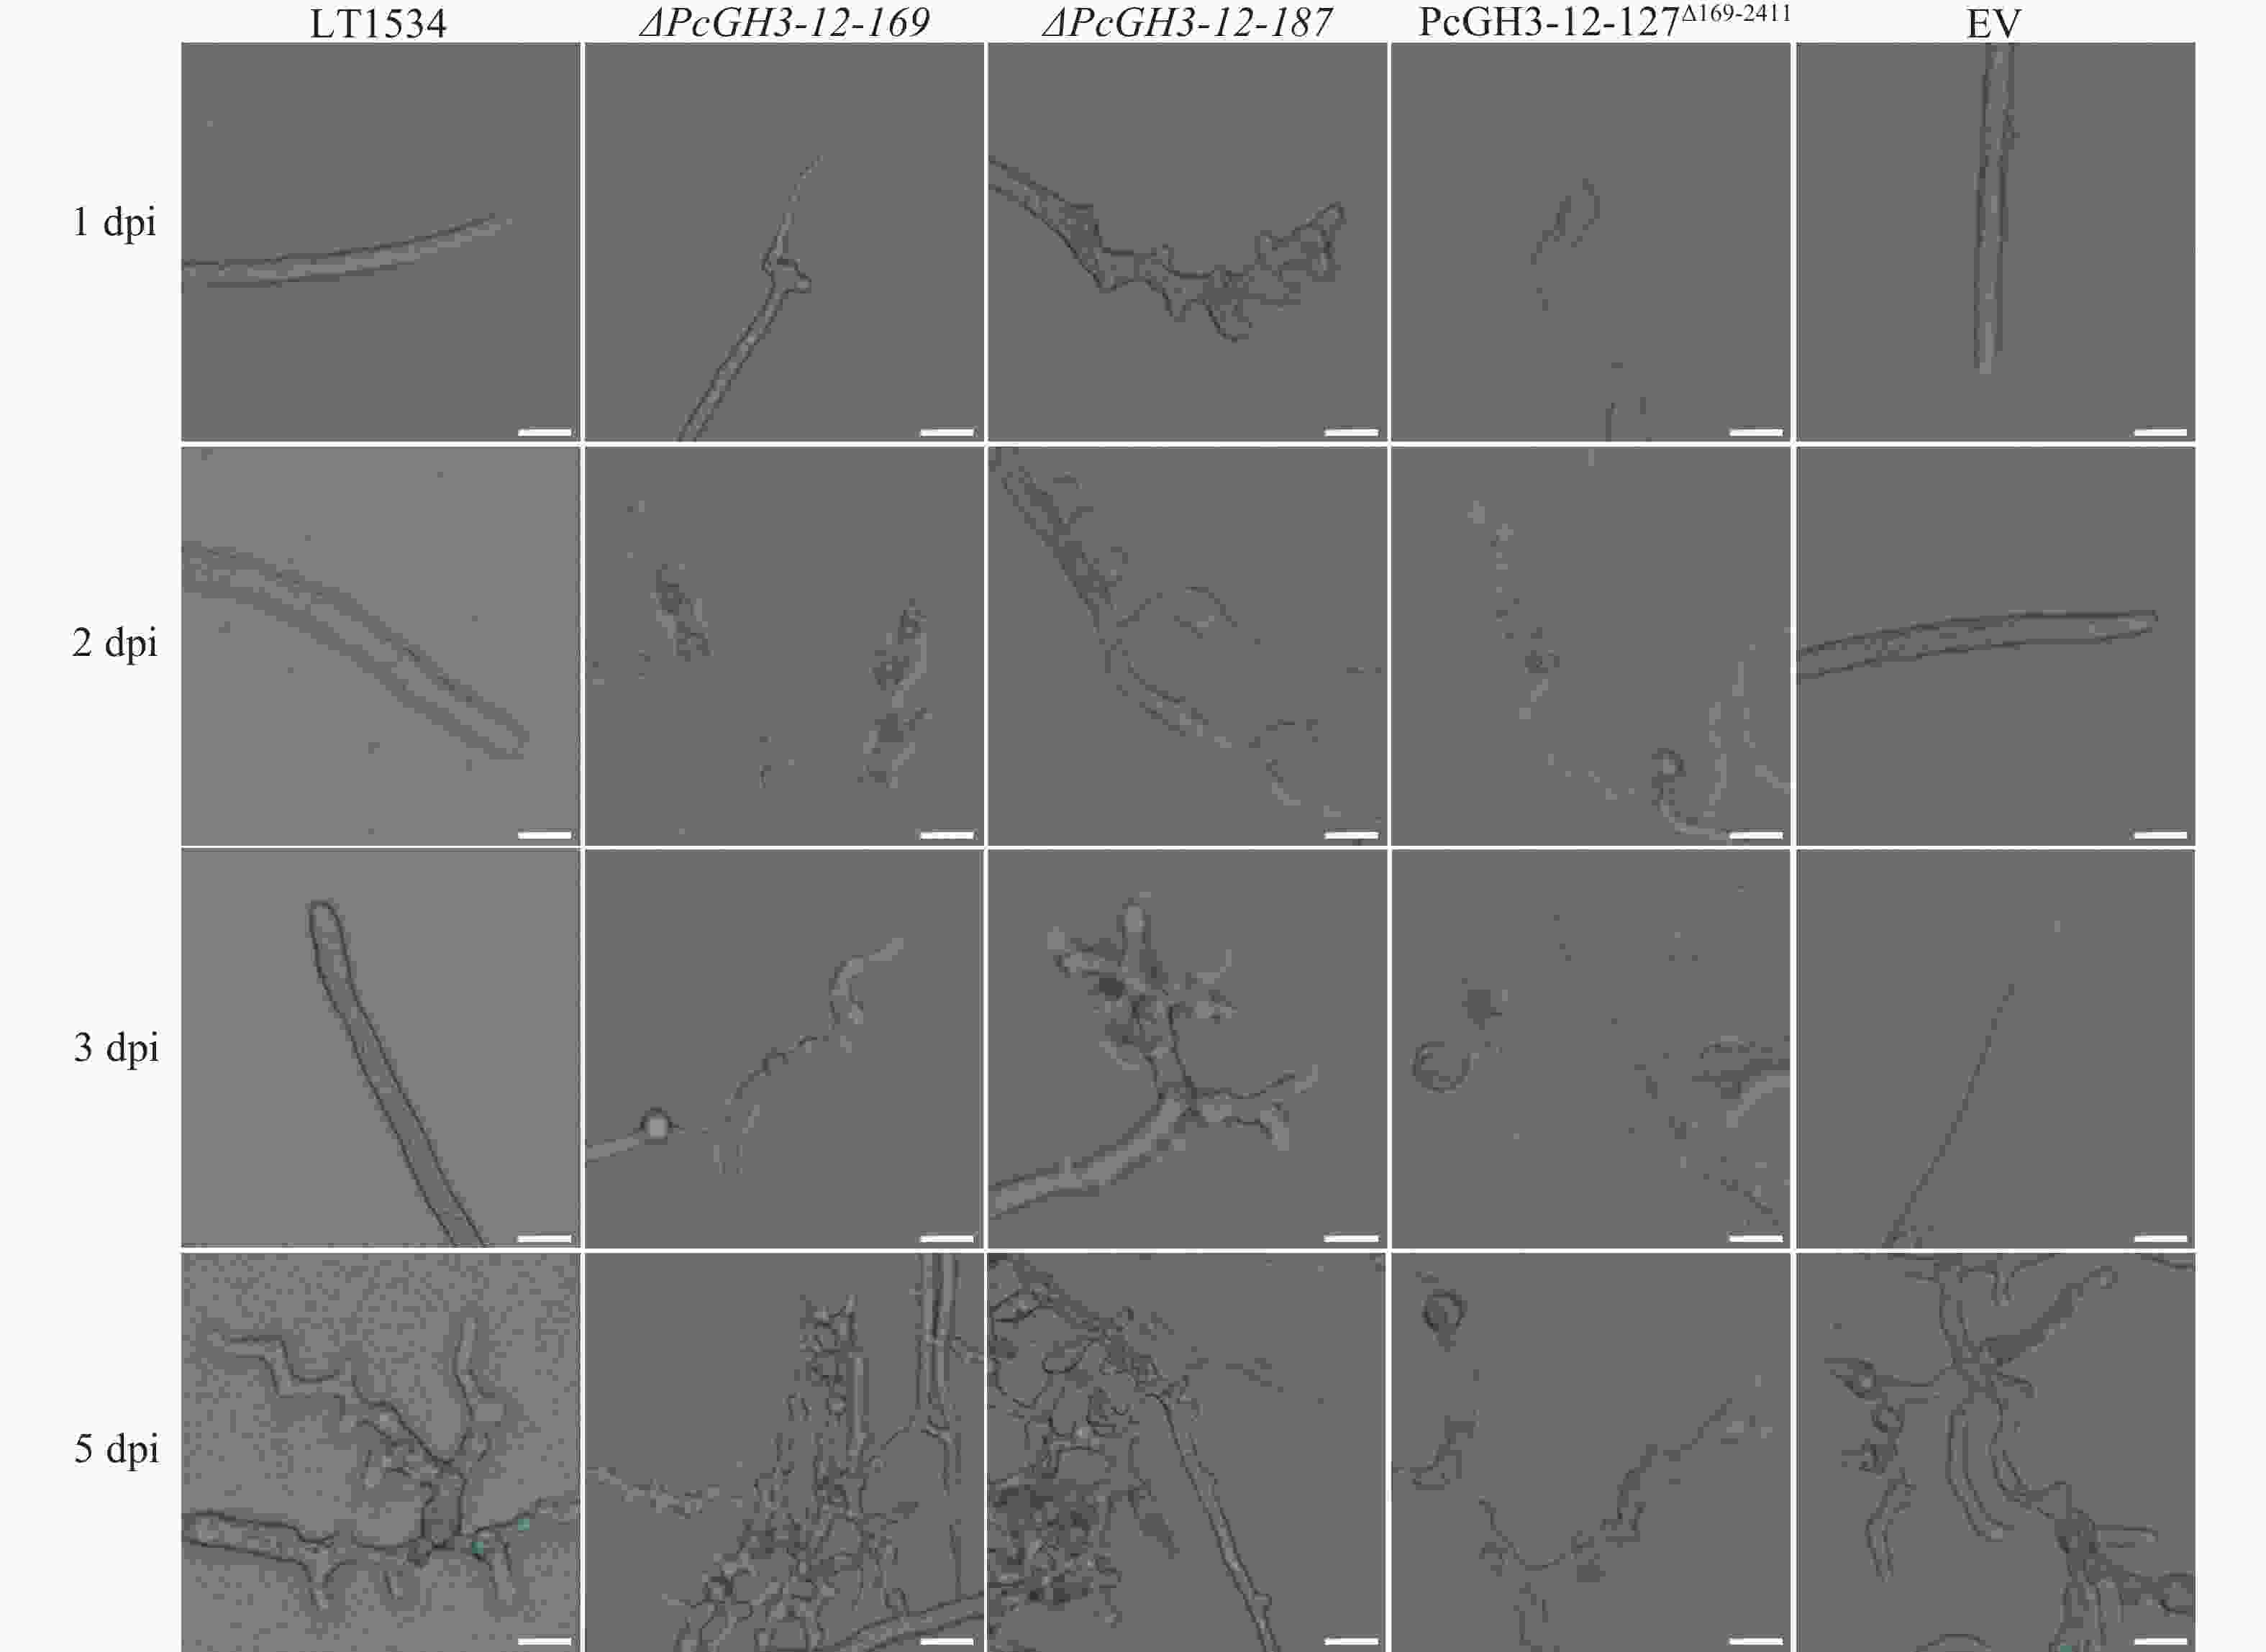
图 10 PcGH3-12缺失加快辣椒疫霉菌孢囊梗分叉(标尺=20 μm)
Figure 10. Deletion of PcGH3-12 accelerated the bifurcation of P. capsici cysts (scale bar=20 μm)
-
GH3基因家族成员主要编码胞外β-葡萄糖苷酶,在纤维素降解进程中发挥关键作用,有利于病原菌更高效地侵染寄主。基于此,本研究对辣椒疫霉菌中的GH3基因家族成员开展鉴定工作,系统剖析了辣椒疫霉菌中28个GH3基因家族成员的基因结构、理化特性、亚细胞定位以及转录水平,并通过敲除PcGH3-12来评估GH3在辣椒疫霉菌中的活性特征与生物学意义。
已有研究报道了灰葡萄孢菌(Botrytis cinerea)中一个编码属于糖基水解酶家族11的内切β-1,4-木聚糖酶的基因xyn11A,证明由木聚糖诱导并被葡萄糖抑制,敲除该基因导致其生长速率适度下降[31]。同样的,本研究敲除PcGH3-12基因后,辣椒疫霉菌的营养生长显著受到抑制,表明PcGH3-12在辣椒疫霉菌的生长过程中发挥了关键作用。作为辣椒疫霉菌GH3家族成员,PcGH3-12基因可能参与了能量获取、物质运输等与生长相关的代谢过程,这些都对辣椒疫霉菌的存活和繁殖至关重要。此外,PcGH3-12基因的缺失可能导致糖苷水解酶在辣椒疫霉细胞间的交流受阻,从而影响辣椒疫霉菌的生长节律。
已有研究证明,纤维素酶CLR1是许多真菌作为唯一碳源的生长所必需的,CLR1基因突变体使纤维素酶活性的降低,严重损害了尖孢镰刀菌(Fusarium oxysporum)腐生生长期间的纤维素代谢,显著抑制其产生小分生孢子[32]。敲除轮枝镰孢菌(Fusarium verticillioides)中GH3家族基因FvGH3-6,降低了该菌孢子的形成能力,与野生型相比,FvGH3-6敲除突变体对玉米谷物和茎的致病性较弱,这表明GH3基因家族参与了该菌的致病性,而FvGH3-6在F. verticillioides的分生孢子生成和致病性中发挥了重要作用[33]。在本研究中,PcGH3-12基因的缺失同样极大地影响孢子的产生,另外还使得辣椒疫霉菌的孢囊梗分叉速度明显加快。而孢囊梗在无性繁殖过程中发挥关键作用,促进物种的繁殖,极有可能是孢囊梗的生长影响到辣椒疫霉菌的产孢。
近年来,糖苷水解酶家族的细胞壁降解酶在真菌和卵菌对植物宿主的入侵、致病性或毒性中的作用已经得到证实,但确切的机制仍然知之甚少[34]。研究表明,果胶酶、木聚糖酶、木葡聚糖酶、纤维素酶和几丁质酶与真菌的致病性有关[35, 36]。红球丛赤壳(Nectria hematococca)中果胶酸裂解酶基因的破坏导致豌豆致病性降低[37]。纤维素酶、木聚糖酶和角质酶在稻瘟菌(M. oryzae)的毒性中起着至关重要的作用[38]。在本研究中,PcGH3-12基因敲除突变体的致病力低于野生型,在致病性中起到了关键作用,然而,关于PcGH3-12基因的致病机制尚不清楚,值得进一步深入研究。
-
本研究通过生物信息学分析鉴定了辣椒疫霉菌中GH3基因家族成员,并利用同源重组和CRISPR-Cas9技术敲除了其家族成员PcGH3-12,并对其进行表型实验分析。ΔPcGH3-12敲除突变体与野生型相比,其营养生长受到抑制且孢子囊产量显著降低,同时孢囊梗分叉速度明显加快。致病性测定发现ΔPcGH3-12敲除突变体的致病力低于野生型。研究表明,PcGH3-12在辣椒疫霉菌的生长发育和致病过程中发挥关键作用,为进一步解析GH3基因家族对卵菌致病过程的调控提供了理论依据。
辣椒疫霉菌GH3基因家族鉴定及PcGH3-12基因功能研究
DOI: 10.15886/j.cnki.rdswxb.20260046
 CSTR: 32425.14.j.cnki.rdswxb.20260046
Identification of GH3 gene family and functional analysis of PcGH3-12 in Phytophthora capsici
-
摘要: 病原菌中的糖苷水解酶家族3(glycoside hydrolase family 3,GH3)在侵染植物过程中起到降解植物细胞壁果胶、纤维素及半纤维素等物质的重要作用。本研究通过生物信息学方法系统鉴定辣椒疫霉菌(Phytophthora capsici)中GH3基因家族成员,并对其基因结构、理化性质、亚细胞定位及蛋白结构进行分析。利用RNA-seq技术对辣椒疫霉菌侵染寄主辣椒、四季豆、蚕豆、番茄、南瓜、西瓜等作物的早期、中期及晚期的互作转录组进行分析,明确GH3基因家族成员转录水平,利用同源重组及CRISPR-Cas9技术,对在侵染过程中显著上调表达的基因进行敲除,验证其在疫霉菌中的致病功能。结果显示,在辣椒疫霉菌LT1534菌株基因组中共鉴定到28个GH3基因家族成员,分子量在
62851.00 ~94035.28 Da,亚细胞定位分析显示主要定位于胞外,除了具有GH3结构域外,还具有Fibronectin type Ⅲ-like结构域。蛋白三级结构有三角形和四边形2种构型。PcGH3-12基因在互作转录组中表现为侵染6种作物的早期和晚期上调表达。PcGH3-12基因敲除突变体导致辣椒疫霉菌的菌丝生长减缓、产孢量减少、致病性减弱,并使孢囊梗分枝迅速形成。推测PcGH3-12基因在辣椒疫霉菌的生长发育和致病过程中发挥重要的作用,这一发现有助于理解辣椒疫霉菌中GH3在调控病原菌的营养生长和致病性方面的作用,为抗病品种的培育提供了理论支持。-
关键词:
- 辣椒疫霉菌 /
- 糖苷水解酶家族3 /
- PcGH3-12基因 /
- 基因敲除 /
- 致病力
Abstract: Glycoside hydrolase family 3 (GH3) plays an important role in degrading pectin, cellulose and hemicellulose in plant cell walls during infection. In this context the members of the GH3 gene family in Phytophthora capsici were systematically identified by using biological information methods, and their gene structure, physicochemical properties, subcellular localization, and protein structure were analyzed. RNA-seq (RNA Sequencing) was used to analyze the early, middle and late interaction transcriptome of Pepper, Kidney Bean, Faba Bean, Tomato, Squash, Watermelon and other crops infected by P. capsici. The transcription level of the GH3 gene family members was analyzed. Using homologous recombination and CRISPR-Cas9 technology, the genes significantly up-regulated during infection were knocked out to verify their pathogenic function in P. capsici. The results showed that a total of 28 GH3 gene family members were identified in the genome of P. capsici LT1534 strain, with a molecular weight of62851.00 –94035.28 Da. Subcellular localization analysis showed that they were mainly located outside the cell. In addition to the GH3 structure, they also have a Fibronectin type III-like domain. The protein tertiary structure has two configurations: triangle and quadrilateral. The PcGH3-12 was up-regulated in the early and late stages of infection of six crops in the interaction transcriptome. The knockout mutant of PcGH3-12 resulted in slow mycelial growth, low sporulation, weak pathogenicity, and rapid formation of sporangium branches. It is speculated that PcGH3-12 plays an essential role in the growth, development and pathogenicity of P. capsici. These findings provide an in-depth understanding of the GH3 in P. capsici, which plays an important role in regulating the vegetative growth and pathogenicity of P. capsici and provides theoretical support for breeding of resistant varieties of crops.-
Key words:
- Phytophthora capsici /
- glycoside hydrolase family 3 /
- PcGH3-12 gene /
- gene knockout /
- virulence
-
图 2 辣椒疫霉菌GH3基因家族成员蛋白功能结构域
Fig. 2 Functional domains of GH3 gene family members in P. capsici
图 3 PcGH3蛋白和不同物种的基序结构及10个保守基序结构
Fig. 3 PcGH3 protein and motif structure of different species and 10 conserved motifs domains
图 4 辣椒疫霉菌GH3基因家族成员侵染不同寄主时转录水平
Fig. 4 Transcription level of GH3 gene family members of P. capsici infecting different hosts
图 5 辣椒疫霉菌GH3基因家族系统发育树
Fig. 5 Phylogenetic tree of GH3 gene family members of P. capsici
图 7 PcGH3-12缺失影响辣椒疫霉菌营养生长
注:***:P﹤0.0001,**:P﹤0.01。下同。
Fig. 7 Deletion of PcGH3-12 affects the vegetative growth of P. capsici
Note: ***: P < 0.0001, **: P < 0.01. Similarly hereinafter.
图 8 PcGH3-12缺失导致辣椒疫霉菌产孢能力显著降低
Fig. 8 The deletion of PcGH3-12 in P. capsici resulted in significant decrease in sporulation ability
图 10 PcGH3-12缺失加快辣椒疫霉菌孢囊梗分叉(标尺=20 μm)
Fig. 10 Deletion of PcGH3-12 accelerated the bifurcation of P. capsici cysts (scale bar=20 μm)
表 1 引物名称及序列
Table 1 Primers and sequences
引物名称 Primer 序列 Sequence(5’-3’) PcGH3-12-AF CGGCGTTTCCTACCTGTT PcGH3-12-AR ATCCTGGTGATACCTTCCGT PcGH3-12-BF ATTCGGCGTGCTGTGCT PcGH3-12-BR GTCGTTTAGAATGCGAGGGT PcGH3-12-ORF-F TGGAGCTTCGTTCAATCCC PcGH3-12-ORF-R GCAATACTCCACCCACCACAT PcGH3-12-sgRNA1-F CTAGCTCAGCACTGATGAGTCCGTGAGGACGAAACGAGTAAGCTCGTCTGCTGACGATGTGTACGACT PcGH3-12-sgRNA1-R AAACAGTCGTACACATCGTCAGCAGACGAGCTTACTCGTTTCGTCCTCACGGACTCATCAGTGCTGAG PcGH3-12-sgRNA2-F CTAGCCCGTATCTGATGAGTCCGTGAGGACGAAACGAGTAAGCTCGTCATACGGATTAGACTCGGTGCA PcGH3-12-sgRNA2-R AAACTGCACCGAGTCTAATCCGTATGACGAGCTTACTCGTTTCGTCCTCACGGACTCATCAGATACGGG PcGH3-12-sgRNA3-F 'CTAGCCGACGTCTGATGAGTCCGTGAGGACGAAACGAGTAAGCTCGTCACGTCGTAGTGACCGATTGGG PcGH3-12-sgRNA3-R AAACCCCAATCGGTCACTACGACGTGACGAGCTTACTCGTTTCGTCCTCACGGACTCATCAGACGTCGG HPH-F TGTCAAGTCTCCACGAAG HPH-R CTATTCCTTTGCCCTCGGA M13-F GTTGTAAAACGACGGCCAG M13-R CAGGAAACAGCTATGACC  下载: 导出CSV
表 2 辣椒疫霉菌GH3基因家族蛋白的理化性质分析
Table 2 Analysis of physicochemical properties of GH3 gene family proteins in P. capsici
名称
Name基因银行
GenBank氨基酸
Amino acids分子量
Mw(Da)等电点
pI不稳定系数
Instability index脂肪系数
Aliphatic index亲水性平均系数
GRAVYPcGH3-1 KAG1713077.1 777 84974.58 4.76 23.95 82.23 -0.188 PcGH3-2 KAG1711297.1 781 85165.79 4.51 24.05 84.78 -0.122 PcGH3-3 KAG1711298.1 781 85428.36 4.65 24.79 82.16 -0.117 PcGH3-4 KAG1711299.1 781 85458.39 4.65 24.79 82.04 -0.120 PcGH3-5 KAG1711300.1 740 81360.83 4.57 29.35 86.05 -0.165 PcGH3-6 KAG1707973.1 776 85007.50 5.89 35.05 83.08 -0.107 PcGH3-7 KAG1705199.1 737 79752.51 4.78 33.40 85.14 -0.133 PcGH3-8 KAG1705200.1 802 88165.30 5.86 38.34 87.29 -0.147 PcGH3-9 KAG1705022.1 575 62851.00 4.73 28.07 89.65 -0.123 PcGH3-10 KAG1703190.1 665 72422.59 4.72 22.25 85.89 -0.143 PcGH3-11 KAG1703193.1 777 84693.14 4.53 24.20 83.11 -0.120 PcGH3-12 KAG1703272.1 737 80471.35 4.54 25.30 87.27 -0.113 PcGH3-13 KAG1703273.1 812 88978.17 4.66 24.37 84.56 -0.184 PcGH3-14 KAG1703274.1 787 86184.34 4.69 24.53 88.36 -0.134 PcGH3-15 KAG1703275.1 790 85898.81 4.47 27.26 88.97 -0.017 PcGH3-16 KAG1699780.1 731 80133.97 5.79 33.83 92.98 -0.114 PcGH3-17 KAG1697980.1 781 85717.18 5.02 24.77 87.29 -0.140 PcGH3-18 KAG1697981.1 776 84840.85 4.75 23.87 86.13 -0.155 PcGH3-19 KAG1697418.1 877 94035.28 4.44 27.34 83.32 -0.190 PcGH3-20 KAG1697270.1 788 86806.62 4.55 28.63 81.07 -0.216 PcGH3-21 KAG1697271.1 788 86836.65 4.55 28.31 80.94 -0.219 PcGH3-22 KAG1697317.1 758 82699.85 5.34 33.51 89.54 -0.131 PcGH3-23 KAG1695964.1 758 82607.66 5.29 33.70 89.16 -0.131 PcGH3-24 KAG1693069.1 755 82483.87 7.53 35.45 89.07 -0.158 PcGH3-25 KAG1690364.1 843 92350.74 5.37 34.38 89.05 -0.141 PcGH3-26 KAG1688059.1 755 82483.87 7.53 35.45 89.07 -0.158 PcGH3-27 KAG1684419.1 843 92350.74 5.37 34.38 89.05 -0.141 PcGH3-28 KAG1684306.1 776 84976.46 5.89 34.80 82.58 -0.113
下载: 导出CSV
表 3 辣椒疫霉菌GH3基因家族蛋白的亚细胞定位预测
Table 3 Subcellular localization prediction of GH3 gene family proteins in P. capsici
基因名称
Gene不同数据库中亚细胞定位预测
Subcellular localization prediction in different databasesWoLF SPORT CELLO Euk-mPLoc PcGH3-1 胞外 extra 细胞骨架 cysk 细胞骨架 cysk PcGH3-2 胞外 extra 胞外 extra 线粒体 mito PcGH3-3 胞外 extra 细胞骨架 cysk 线粒体 mito PcGH3-4 胞外 extra 细胞骨架 cysk 线粒体 mito PcGH3-5 细胞骨架 cysk 细胞骨架 cysk 细胞骨架 cysk PcGH3-6 胞外 extra 胞外 extra 线粒体 mito PcGH3-7 胞内 cyto 液泡vacu 线粒体 mito PcGH3-8 胞外 extra − 线粒体 mito PcGH3-9 胞内 cyto 质膜 plas 线粒体 mito PcGH3-10 胞内 cyto 胞内/胞外 cyto/ extra 胞内/线粒体 cyto/ mito PcGH3-11 胞外 extra 质膜/胞外 plas/ extra 胞内/线粒体 cyto/ mito PcGH3-12 胞内 cyto 质膜 plas 线粒体 mito PcGH3-13 胞外 extra 胞内 cyto 线粒体 mito PcGH3-14 胞外 extra 胞内/胞外 cyto/ extra 线粒体 mito PcGH3-15 胞外 extra 胞外/质膜 extra/ plas 线粒体 mito PcGH3-16 胞内 cyto 胞内/质膜 cyto/ plas 胞内/线粒体 cyto/ mito PcGH3-17 胞外 extra 胞内 cyto 线粒体 mito PcGH3-18 胞外 extra 胞内 cyto 线粒体 mito PcGH3-19 胞外 extra 胞外 extra 胞内/胞外/线粒体
cyto/ extra/ mitoPcGH3-20 胞外 extra 胞内 cyto 胞内/线粒体 cyto/ mito PcGH3-21 胞外 extra 胞内 cyto 胞内/线粒体 cyto/ mito PcGH3-22 过氧化物酶体pero − 线粒体 mito PcGH3-23 过氧化物酶体pero − 线粒体 mito PcGH3-24 胞外 extra − 线粒体 mito PcGH3-25 胞外 extra 胞内 cyto 线粒体 mito PcGH3-26 胞外 extra − 线粒体 mito PcGH3-27 胞外 extra 胞内 cyto 线粒体 mito PcGH3-28 胞外 extra 胞外 extra 线粒体 mito
下载: 导出CSV
表 4 物种种类信息
Table 4 Species information
登录号GenBank 物种名称Species Name 物种种类Species Type TYZ52676.1 [Pythium] brassicae(nom. inval.) 卵菌 AIG56284.1 Achlya hypogyna 卵菌 CCI44142.1 Albugo candida 卵菌 CCA27737.1 Albugo laibachii 卵菌 RHY95136.1 Aphanomyces astaci 卵菌 KAG9411740.1 Aphanomyces cochlioides 卵菌 KAH9079713.1 Aphanomyces euteiches 卵菌 RHY30244.1 Aphanomyces invadans 卵菌 KAF0684127.1 Aphanomyces stellatus 卵菌 XP_067814387.1 Bremia lactucae 卵菌 KAF1329267.1 Globisporangium splendens 卵菌 CAI5715517.1 Hyaloperonospora brassicae 卵菌 DBA03230.1 Lagenidium giganteum 卵菌 RLN13887.1 Nothophytophthora sp. Chile5 卵菌 KAI9906463.1 Peronosclerospora sorghi 卵菌 CAH0474296.1 Peronospora belbahrii 卵菌 CAI5741801.1 Peronospora destructor 卵菌 RQM09440.1 Peronospora effusa 卵菌 CAH0489132.1 Peronospora farinosa 卵菌 KAG6952226.1 Phytophthora aleatoria 卵菌 KAG7394890.1 Phytophthora boehmeriae 卵菌 KAG2846754.1 Phytophthora cactorum 卵菌 KAJ8520143.1 Phytophthora cinnamomi 卵菌 KAK1937012.1 Phytophthora citrophthora 卵菌 KAE8883255.1 Phytophthora fragariae 卵菌 GMF18360.1 Phytophthora fragariaefolia 卵菌 KAF4131432.1 Phytophthora infestans 卵菌 KAG2502365.1 Phytophthora kernoviae 卵菌 GMF10326.1 Phytophthora lilii 卵菌 OWZ02537.1 Phytophthora megakarya 卵菌 KUF66939.1 Phytophthora nicotianae 卵菌 KAL3673721.1 Phytophthora oleae 卵菌 POM58315.1 Phytophthora palmivora 卵菌 KAG7382608.1 Phytophthora pseudosyringae 卵菌 XP_067745200.1 Phytophthora ramorum 卵菌 KAE9025954.1 Phytophthora rubi 卵菌 XP_009514924.1 Phytophthora sojae 卵菌 XP_024581053.1 Plasmopara halstedii 卵菌 GLD91844.1 Pythium insidiosum 卵菌 TMW59545.1 Pythium oligandrum 卵菌 XP_008604021.1 Saprolegnia diclina VS20 卵菌 XP_012206904.1 Saprolegnia parasitica CBS 223.65 卵菌 XP_014149803.1 Sphaeroforma arctica JP610 真核生物 OQR91303.1 Thraustotheca clavata 卵菌
下载: 导出CSV
-
[1] Quesada-Ocampo L M, Parada-Rojas C H, Hansen Z, et al. Phytophthora capsici: recent progress on fundamental biology and disease management 100 years after its description [J]. Annual Review of Phytopathology, 2023, 61(1): 185−208. https://doi.org/10.1146/annurev-phyto-021622-103801 doi: 10.1146/annurev-phyto-021622-103801 [2] Barchenger D W, Lamour K H, Bosland P W. Challenges and strategies for breeding resistance in Capsicum annuum to the multifarious pathogen, Phytophthora capsici [J]. Frontiers in Plant Science, 2018, 9: 628. https://doi.org/10.3389/fpls.2018.00628 doi: 10.3389/fpls.2018.00628 [3] Lampugnani E R, Khan G A, Somssich M, et al. Building a plant cell wall at a glance [J]. Journal of Cell Science, 2018, 131(2): jcs207373. https://doi.org/10.1242/jcs.207373 doi: 10.1242/jcs.207373 [4] Yang C, Liu R, Pang J H, et al. Poaceae-specific cell wall-derived oligosaccharides activate plant immunity via OsCERK1 during Magnaporthe oryzae infection in rice [J]. Nature Communications, 2021, 12(1): 2178. https://doi.org/10.1038/s41467-021-22456-x doi: 10.1038/s41467-021-22456-x [5] de Azevedo Souza C, Li S D, Lin A Z, et al. Cellulose-derived oligomers act as damage-associated molecular patterns and trigger defense-like responses [J]. Plant Physiology, 2017, 173(4): 2383−2398. https://doi.org/10.1104/pp.16.01680 doi: 10.1104/pp.16.01680 [6] Wang Y, Tyler B M, Wang Y C. Defense and counterdefense during plant-pathogenic oomycete infection [J]. Annual Review of Microbiology, 2019, 73(1): 667−696. https://doi.org/10.1146/annurev-micro-020518-120022 doi: 10.1146/annurev-micro-020518-120022 [7] Bradley E L, Ökmen B, Doehlemann G, et al. Secreted glycoside hydrolase proteins as effectors and invasion patterns of plant-associated fungi and oomycetes [J]. Frontiers in Plant Science, 2022, 13: 853106. https://doi.org/10.3389/fpls.2022.853106 doi: 10.3389/fpls.2022.853106 [8] Dora S, Terrett O M, Sánchez-Rodríguez C. Plant–microbe interactions in the apoplast: communication at the plant cell wall [J]. The Plant Cell, 2022, 34(5): 1532−1550. https://doi.org/10.1093/plcell/koac040 doi: 10.1093/plcell/koac040 [9] 屈阳, 沈加星, 靳晶豪, 等. 辣椒疫霉果胶裂解酶PcPL23的功能分析[J]. 植物病理学报, 2025, 55(5): 1070−1080. https://doi.org/10.13926/j.cnki.apps.001670 doi: 10.13926/j.cnki.apps.001670 [10] Drula E, Garron M L, Dogan S, et al. The carbohydrate-active enzyme database: functions and literature [J]. Nucleic Acids Research, 2022, 50(D1): D571−D577. https://doi.org/10.1093/nar/gkab1045 doi: 10.1093/nar/gkab1045 [11] Koga S Y, Miyahara T, Nishizaki Y, et al. Anthocyanin glucosylation mediated by a glycoside hydrolase family 3 protein in purple carrot [J]. The Plant Journal, 2024, 119(4): 1816−1829. https://doi.org/10.1111/tpj.16886 doi: 10.1111/tpj.16886 [12] Choknud S, Prawisut A, Gorantla J N, et al. Expression, purification, characterization and glycoside production potential of rice β-d-glucan glucohydrolase I (OsExoI) [J]. Process Biochemistry, 2023, 127: 145−154. https://doi.org/10.1016/j.procbio.2023.02.015 doi: 10.1016/j.procbio.2023.02.015 [13] Cai L N, Xu S N, Lu T, et al. Directed expression of halophilic and acidophilic β-glucosidases by introducing homologous constitutive expression cassettes in marine Aspergillus niger [J]. Journal of Biotechnology, 2019, 292: 12−22. https://doi.org/10.1016/j.jbiotec.2018.12.015 doi: 10.1016/j.jbiotec.2018.12.015 [14] 周洁. Sphingomonas sp. ATCC 31555家族3糖苷水解酶的功能研究及Fn3_like结构域的功能初探[D]. 南宁: 广西大学, 2022. https://doi.org/10.27034/d.cnki.ggxiu.2022.002151 [15] Vasquez R, Mendoza R M, Cañas V A, et al. Characterization of recombinant GH 43 β-xylosidases and a GH 3 β-glucosidase from Levilactobacillus brevis for the hydrolysis of lignocellulose-derived substrates [J]. Journal of Microbiology and Biotechnology, 2026, 36: e2601031. https://doi.org/10.4014/jmb.2601.01031 doi: 10.4014/jmb.2601.01031 [16] Ara K Z G, Månberger A, Gabriško M, et al. Characterization and diversity of the complete set of GH family 3 enzymes from Rhodothermus marinus DSM 4253 [J]. Scientific Reports, 2020, 10(1): 1329. https://doi.org/10.1038/s41598-020-58015-5 doi: 10.1038/s41598-020-58015-5 [17] Thongpoo P, Mckee L S, Araújo A C, et al. Identification of the acid/base catalyst of a glycoside hydrolase family 3 (GH3) β-glucosidase from Aspergillus niger ASKU28 [J]. Biochimica et Biophysica Acta (BBA) - General Subjects, 2013, 1830(3): 2739−2749. https://doi.org/10.1016/j.bbagen.2012.11.014 doi: 10.1016/j.bbagen.2012.11.014 [18] Kudo K, Watanabe A, Ujiie S, et al. Purification and enzymatic characterization of secretory glycoside hydrolase family 3 (GH3) aryl β-glucosidases screened from Aspergillus oryzae genome [J]. Journal of Bioscience and Bioengineering, 2015, 120(6): 614−623. https://doi.org/10.1016/j.jbiosc.2015.03.019 doi: 10.1016/j.jbiosc.2015.03.019 [19] Morales-Cruz A, Amrine K C H, Blanco-Ulate B, et al. Distinctive expansion of gene families associated with plant cell wall degradation, secondary metabolism, and nutrient uptake in the genomes of grapevine trunk pathogens [J]. BMC Genomics, 2015, 16(1): 469. https://doi.org/10.1186/s12864-015-1624-z doi: 10.1186/s12864-015-1624-z [20] Pérez-Hernández A, González M, González C, et al. BcSUN1, a B. cinerea SUN-family protein, is involved in virulence [J]. Frontiers in Microbiology, 2017, 8: 35. https://doi.org/10.3389/fmicb.2017.00035 doi: 10.3389/fmicb.2017.00035 [21] Resjö S, Brus M, Ali A, et al. Proteomic analysis of Phytophthora infestans reveals the importance of cell wall proteins in pathogenicity [J]. Molecular & Cellular Proteomics, 2017, 16(11): 1958−1971. https://doi.org/10.1074/mcp.M116.065656 doi: 10.1074/mcp.M116.065656 [22] Judelson H S, Ah-Fong A M V, Aux G, et al. Gene expression profiling during asexual development of the late blight pathogen Phytophthora infestans reveals a highly dynamic transcriptome [J]. Molecular Plant-Microbe Interactions®, 2008, 21(4): 433−447. https://doi.org/10.1094/mpmi-21-4-0433 doi: 10.1094/mpmi-21-4-0433 [23] Grenville-Briggs L J, Anderson V L, Fugelstad J, et al. Cellulose synthesis in Phytophthora infestans is required for normal appressorium formation and successful infection of potato [J]. The Plant Cell, 2008, 20(3): 720−738. https://doi.org/10.1105/tpc.107.052043 doi: 10.1105/tpc.107.052043 [24] Takahashi M, Konishi T, Takeda T. Biochemical characterization of Magnaporthe oryzae β-glucosidases for efficient β-glucan hydrolysis [J]. Applied Microbiology and Biotechnology, 2011, 91(4): 1073−1082. https://doi.org/10.1007/s00253-011-3340-1 doi: 10.1007/s00253-011-3340-1 [25] Kojima K, Sunagawa N, Mikkelsen N E, et al. Comparison of glycoside hydrolase family 3 β-xylosidases from basidiomycetes and ascomycetes reveals evolutionarily distinct xylan degradation systems [J]. Journal of Biological Chemistry, 2022, 298(3): 101670. https://doi.org/10.1016/j.jbc.2022.101670 doi: 10.1016/j.jbc.2022.101670 [26] 邢翠霞, 夏雨潇, 张伟欣, 等. 里氏木霉纤维素酶基因表达与调控[J]. 微生物学通报, 2024, 51(12): 4884−4898. https://doi.org/10.13344/j.microbiol.china.240519 doi: 10.13344/j.microbiol.china.240519 [27] Wang Z W, Tyler B M, Liu X L. Protocol of Phytophthora capsici transformation using the CRISPR-Cas9 system[M]//Ma W B, Wolpert T. Plant pathogenic fungi and oomycetes. New York: Humana Press, 2018: 265-274. doi: 10.1007/978-1-4939-8724-5_17 [28] Campbell I D, Spitzfaden C. Building proteins with fibronectin type III modules [J]. Structure, 1994, 2(5): 333−337. https://doi.org/10.1016/S0969-2126(00)00034-4 doi: 10.1016/S0969-2126(00)00034-4 [29] Lin F P, Ma H Y, Lin H J, et al. Biochemical characterization of two truncated forms of amylopullulanase from Thermoanaerobacterium saccharolyticum NTOU1 to identify its enzymatically active region [J]. Applied Biochemistry and Biotechnology, 2011, 165(3/4): 1047−1056. https://doi.org/10.1007/s12010-011-9319-7 doi: 10.1007/s12010-011-9319-7 [30] Huang X F, Nazarian F, Vincken J P, et al. A tandem CBM25 domain of α-amylase from Microbacterium aurum as potential tool for targeting proteins to starch granules during starch biosynthesis [J]. BMC Biotechnology, 2017, 17(1): 86. https://doi.org/10.1186/s12896-017-0406-x doi: 10.1186/s12896-017-0406-x [31] Brito N, Espino J J, González C. The endo-β-1, 4-xylanase Xyn11A is required for virulence in Botrytis cinerea [J]. Molecular Plant-Microbe Interactions®, 2006, 19(1): 25−32. https://doi.org/10.1094/mpmi-19-0025 doi: 10.1094/mpmi-19-0025 [32] Gámez-Arjona F M, Vitale S, Voxeur A, et al. Impairment of the cellulose degradation machinery enhances Fusarium oxysporum virulence but limits its reproductive fitness [J]. Science Advances, 2022, 8(16): eabl9734. https://doi.org/10.1126/sciadv.abl9734 doi: 10.1126/sciadv.abl9734 [33] Zhang X J, Duan P L, Shi S Q, et al. Global characterization of GH3 family glycoside hydrolase genes in Fusarium verticillioides and functional analysis of FvGH3-6 [J]. Frontiers in Microbiology, 2025, 16: 1543210. https://doi.org/10.3389/fmicb.2025.1543210 doi: 10.3389/fmicb.2025.1543210 [34] Gui Y J, Chen J Y, Zhang D D, et al. Verticillium dahliae manipulates plant immunity by glycoside hydrolase 12 proteins in conjunction with carbohydrate-binding module 1 [J]. Environmental Microbiology, 2017, 19(5): 1914−1932. https://doi.org/10.1111/1462-2920.13695 doi: 10.1111/1462-2920.13695 [35] Qin J X, Li B H, Zhou S Y. A novel glycoside hydrolase 74 xyloglucanase CvGH74A is a virulence factor in Coniella vitis [J]. Journal of Integrative Agriculture, 2020, 19(11): 2725−2735. https://doi.org/10.1016/s2095-3119(20)63254-3 doi: 10.1016/s2095-3119(20)63254-3 [36] Tan X W, Hu Y Y, Jia Y L, et al. A conserved glycoside hydrolase family 7 cellobiohydrolase PsGH7a of Phytophthora sojae is required for full virulence on soybean [J]. Frontiers in Microbiology, 2020, 11: 1285. https://doi.org/10.3389/fmicb.2020.01285 doi: 10.3389/fmicb.2020.01285 [37] Rogers L M, Kim Y K, Guo W J, et al. Requirement for either a host- or pectin-induced pectate lyase for infection of Pisum sativum by Nectria hematococca [J]. Proceedings of the National Academy of Sciences of the United States of America, 2000, 97(17): 9813−9818. https://doi.org/10.1073/pnas.160271497 doi: 10.1073/pnas.160271497 [38] Quoc N B, Chau N N B. The role of cell wall degrading enzymes in pathogenesis of Magnaporthe oryzae [J]. Current Protein & Peptide Science, 2017, 18(10): 1019−1034. https://doi.org/10.2174/1389203717666160813164955 doi: 10.2174/1389203717666160813164955 -

 点击查看大图
计量
- 文章访问数: 0
- HTML全文浏览量: 1
- 被引次数: 0
