

-
热带、亚热带地区海岸带广泛分布红树林,其具有防风固田、保护生物多样性、维护沿海地区生态安全等众多生态系统服务功能[1-4]。红树林作为海岸带典型“蓝碳”生态系统,凭借极高的生物多样性水平与初级生产力广受学界关注[1,5]。作为地球上碳密度最高的生态系统之一,红树林将碳封存于活体生物和深部缺氧的沉积物中,是全球碳循环中不可或缺的组成部分[6-7]。研究表明,虽然红树林面积仅占地球表面积的0.1%,但其巨大的碳封存潜力却固定了大气中5%的碳[8-9]。红树林生态系统的固碳作用,除依赖深层酸性硫酸盐土壤厌氧环境下的土壤有机碳封存过程外,植被较强的初级生产力也发挥着关键作用,其中植被光合作用是决定其初级生产力及地上生物量碳汇积累的核心生理过程[7]。
海南作为中国红树林分布的重点区域,红树种类型丰富。根据海南省林业局行业公报数据,全省现有红树林面积7 862.58 hm2,广泛分布于12个沿海市县的海岸内港湾,成为中国滨海蓝碳实践与生态屏障建设的前沿阵地。全省红树植物合计20科38种,涵盖全国红树林植物全部种类,其中,自然分布真红树植物24个,引种2个,半红树植物12个[10]。滨海港湾优势红树植物种主要有白骨壤(Avicennia marina)、桐花树(Aegiceras corniculatum)、红海榄(Rhizophora stylosa)、秋茄(Kandelia candel)和木榄(Bruguiera gymnorhiza)等[10]。红树植物在海南全域范围内分布于多样化的生境中,不同生境的温度、降雨、盐度等环境因子存在异质性,驱动红树植物形成差异化的显著生态适应性,最终使得红树群落的生长策略与固碳机制呈现出显著分异。
海南红树林湿地的研究多集中在重金属污染、生物多样性、湿地保护和植被生理等方面[11],近年来的研究热点逐步集中在红树林碳汇上,其显著的固碳效率使红树林被认为最高产、最高效、最稳定的天然碳汇之一[12],沉积物碳汇是红树林最主要的碳汇,占生态系统碳储量的一半以上[13],因此,研究碳汇更关注沉积物碳汇而忽略了植被碳汇,尤其是不同区域的红树树种光合特性及固碳能力差异性及调控因子的研究甚少[14-16]。红海榄(Rhizophora stylosa)、木榄(Bruguiera gymnorhiza)、桐花树(Aegiceras corniculatum)和白骨壤(Avicennia marina)作为海南最具代表性的4种典型红树植物,在光合生理、环境驱动和固碳机制上各具特色。然而,关于这4种典型植物在相同或不同生境下的光合生理特性、光利用效率、气体交换参数及叶片固碳效率的差异,目前尚缺乏系统性的定量对比研究,这限制了对热带红树林群落碳汇贡献的精准评估,也制约了红树林精细化修复中的物种选配与群落构建。
鉴于此,本研究以海南红海榄、木榄、桐花树和白骨壤群落为研究对象,采用Li-6800活体监测光合测定技术,系统开展其光合生理特性及固碳机制研究。本研究旨在1)阐明 4 种典型红树植物在异质生境下的光合参数动态变化特征及其关键限制因子;2)对比异质生境下的同种和不同物种的叶片固碳量和碳汇潜力;3)揭示红树植物光合固碳对潮间带环境胁迫的生理响应与适应机制,研究结果为海南省“蓝碳”方法学奠定基础,也为“双碳”目标的实现提供数据支撑。
-
东寨港于1986年被确定为国家级自然保护区,面积3 337.6 hm2,地处海南北部海口市,年均气温23.3~23.8℃,年均降水量1 676.4 mm。目前有红树植物12科36种,主要有红海榄(Rhizophora stylosa)、木榄(Bruguiera gymnorrhiza)、尖瓣海莲(Bruguiera sexangula var.rhynchopetala)、角果木(Ceriops tagal)、秋茄(Kandelia candel)、海漆(Excoecaria agallocha)、桐花树(Aegiceras corniculatum)、白骨壤(Avicennia marina)、老鼠簕(Acanthus lilcifolius)等[12],红树林保护区固碳总量超过29.56万吨,碳税法获得总经济价值超过2.75亿元,2022年5月,东寨港保护区实现红树林碳汇交易量3 000余吨,交易额达到30余万元,成为海南首个蓝碳生态产品交易。
新盈港地处海南西部的临高县和儋州市交界处,面积约4 300 hm2,年均气温23~24 °C,年均降水量为1 417.8 mm。该地区红树林植物主要有角果木(Ceriops tagal)、红海榄(Rhizophora stylosa)、木榄(Bruguiera gymnorrhiza)、尖瓣海莲(Bruguiera sexangula var.rhynchopetala)、白骨壤(Avicennia marina)和桐花树(Aegiceras corniculatum)等[13]。
东寨港和新盈港这两处红树林群落地处不同生境,区域内海水与沉积物的各项理化性质均存在明显差异。其中,东寨港区域海水盐度为9.5‰,pH7.21,溶解氧含量为5.34 mg·L−1;新盈港区域海水盐度为25.4‰,pH值为7.57,溶解氧含量为7.62 mg·L−1,两处生境的海水指标差异十分显著。对两处的沉积物性质进一步测定后发现,东寨港区域沉积物pH6.40,有机碳含量可达54.5 g·kg−1,质地类型为壤土;新盈港区域沉积物pH8.00,有机碳含量仅为2.1 g·kg−1,质地类型为砂质黏壤土。
-
在东寨港、新盈港红树林群落典型生境中,筛选长势良好,无病虫害的木榄、红海榄、桐花树和白骨壤四种红树树种,将其作为本研究的试验材料,对受试树种各选取3株成熟树种发育完整的功能叶片进行定点活体原位监测,最终获取其光合生理参数,受试树种信息详见表1。
表 1 选取的红树植被信息
Table 1. Information on mangrove vegetation
类别
Type植被名称
Species科属
Family and genus生活型
Life form株高/m
Height胸径/cm
Diameter at
breast height叶面积/cm2c
Leaf area真红树植物
True mangroves木榄
Bruguiera gymnorrhiza红树科木榄属
Rhizophoraceae, Bruguiera乔木
Tree1.7~3.0 20 55~60 桐花树
Aegiceras corniculatum报春花科蜡烛果属
Primulaceae, Aegiceras乔木
Tree1.4~1.8 12 16~28 红海榄
Rhizophora stylosa红树科红树属
Rhizophoraceae, Rhizophora乔木
Tree2.8~3.1 18 39.9~50 白骨壤
Avicennia marina马鞭草科海榄雌属
Verbenaceae, Avicennia乔木
Tree2.4~2.6 18 6~11 -
2022年8月1—4日白天,晴朗无云,采用Li-
6800 光合测定系统对样树进行测定。时间为8:00—18:00,每隔2 h测定1次,每树种选3株成熟且健康树,为严格保障受试叶片在生理发育时期和发育程度一致,本研究对叶片采样位点进行了精确标准化控制,植株冠层的上部外围向阳面枝条中,由顶端芽体向下计数,选取第 3 至第 5 片完全展开的成熟健壮叶展开光合生理测定,每株树测定1次,后续数据以3株受试株叶片测定数据的均值分析。测定主要参数包含叶片净光合速率(Pn,μmol·m−2·s−1)、胞间CO2浓度(Ci,μmol·mol−1)、气孔导度(Gs,mol·m−2·s−1)等多项光合生理和环境参数,通过多项光合参数指标计算净日固碳量[17]。计算公式如下:$$ P=\sum\limits_{i=1}^{n}[(({p}_{i+1}+{p}_{i})/2)\times({t}_{i+1}-{t}_{i})\times3\;600/1\;000] $$ (1) 式中,P为树种的日同化总量(mmol·m−2·d−1);Pi指初测点的瞬时光合速率(μmol·m−2·s−1),Pi+1为下一测点的瞬时光合速率(μmol·m−2·s−1);ti为初测点的瞬时时间,ti+1为下一测定点的时间(h);n为测试次数。一般情况下,植物夜间的暗呼吸消耗量大都按照白天同化量的20%来估算[18]。单位叶面积净日固碳量的计算公式为:
$$ {W}_{{{co}_{2}}} =P(1-0.2)\times(44/1\;000) $$ (2) 式中,WCO2为树种的日固定CO2的量(g·m−2·d−1),44为CO2的摩尔质量。
-
选择晴天上午开展测定,每个树种进行3次重复。利用Li-
6800 设备内置人工光源设定光强梯度区间为0 ~ 2 400 μmol·m−2·s−1,以200或100或50 μmol·m−2·s−1的光强逐级递减,仪器每隔1 min便会记录每个设定光强下叶片的光合速率(Pn)。光响应曲线(Pn-PPFD曲线)以光量子通量密度(PPFD)为横轴、净光合速率(Pn)为纵轴绘制。 -
逐步回归和相关分析等数据处理使用Excel和SPSS等软件进行,绘图使用Origin软件完成。
-
以时间为横轴,净光合速率(Pn)为纵轴绘制日变化曲线,结果显示4种红树植物叶片净光合速率(Pn)日变化曲线各不相同(图1)。东北部东寨港样地中,木榄、红海榄和白骨壤叶片净光合速率(Pn)日变化曲线呈单峰型,其峰值出现的时间不同,木榄峰值(11.15±0.55 μmol·m−2·s−1)和红海榄峰值(13.35±0.13 μmol·m−2·s−1)均出现在上午10:00左右,白骨壤峰值(17.17±0.27 μmol·m−2·s−1)出现在14:00左右。桐花树与其他3种植物日变化曲线不同,白天出现两次峰值且12:00时出现明显午休现象,第一次峰值(Pn=8.04±0.64 μmol·m−2·s−1)出现在10:00左右,第二次峰值(Pn=6.19±0.84 μmol·m−2·s−1)出现在14:00左右,两次峰值大小无显著差异(P > 0.05)。4种红树的日均Pn值为白骨壤(12.10±2.02 μmol·m−2·s−1)>红海榄(9.87±1.94 μmol·m−2·s−1)>木榄(6.59±1.65μmol·m−2·s−1)>桐花树(4.69±0.91 μmol·m−2·s−1)。
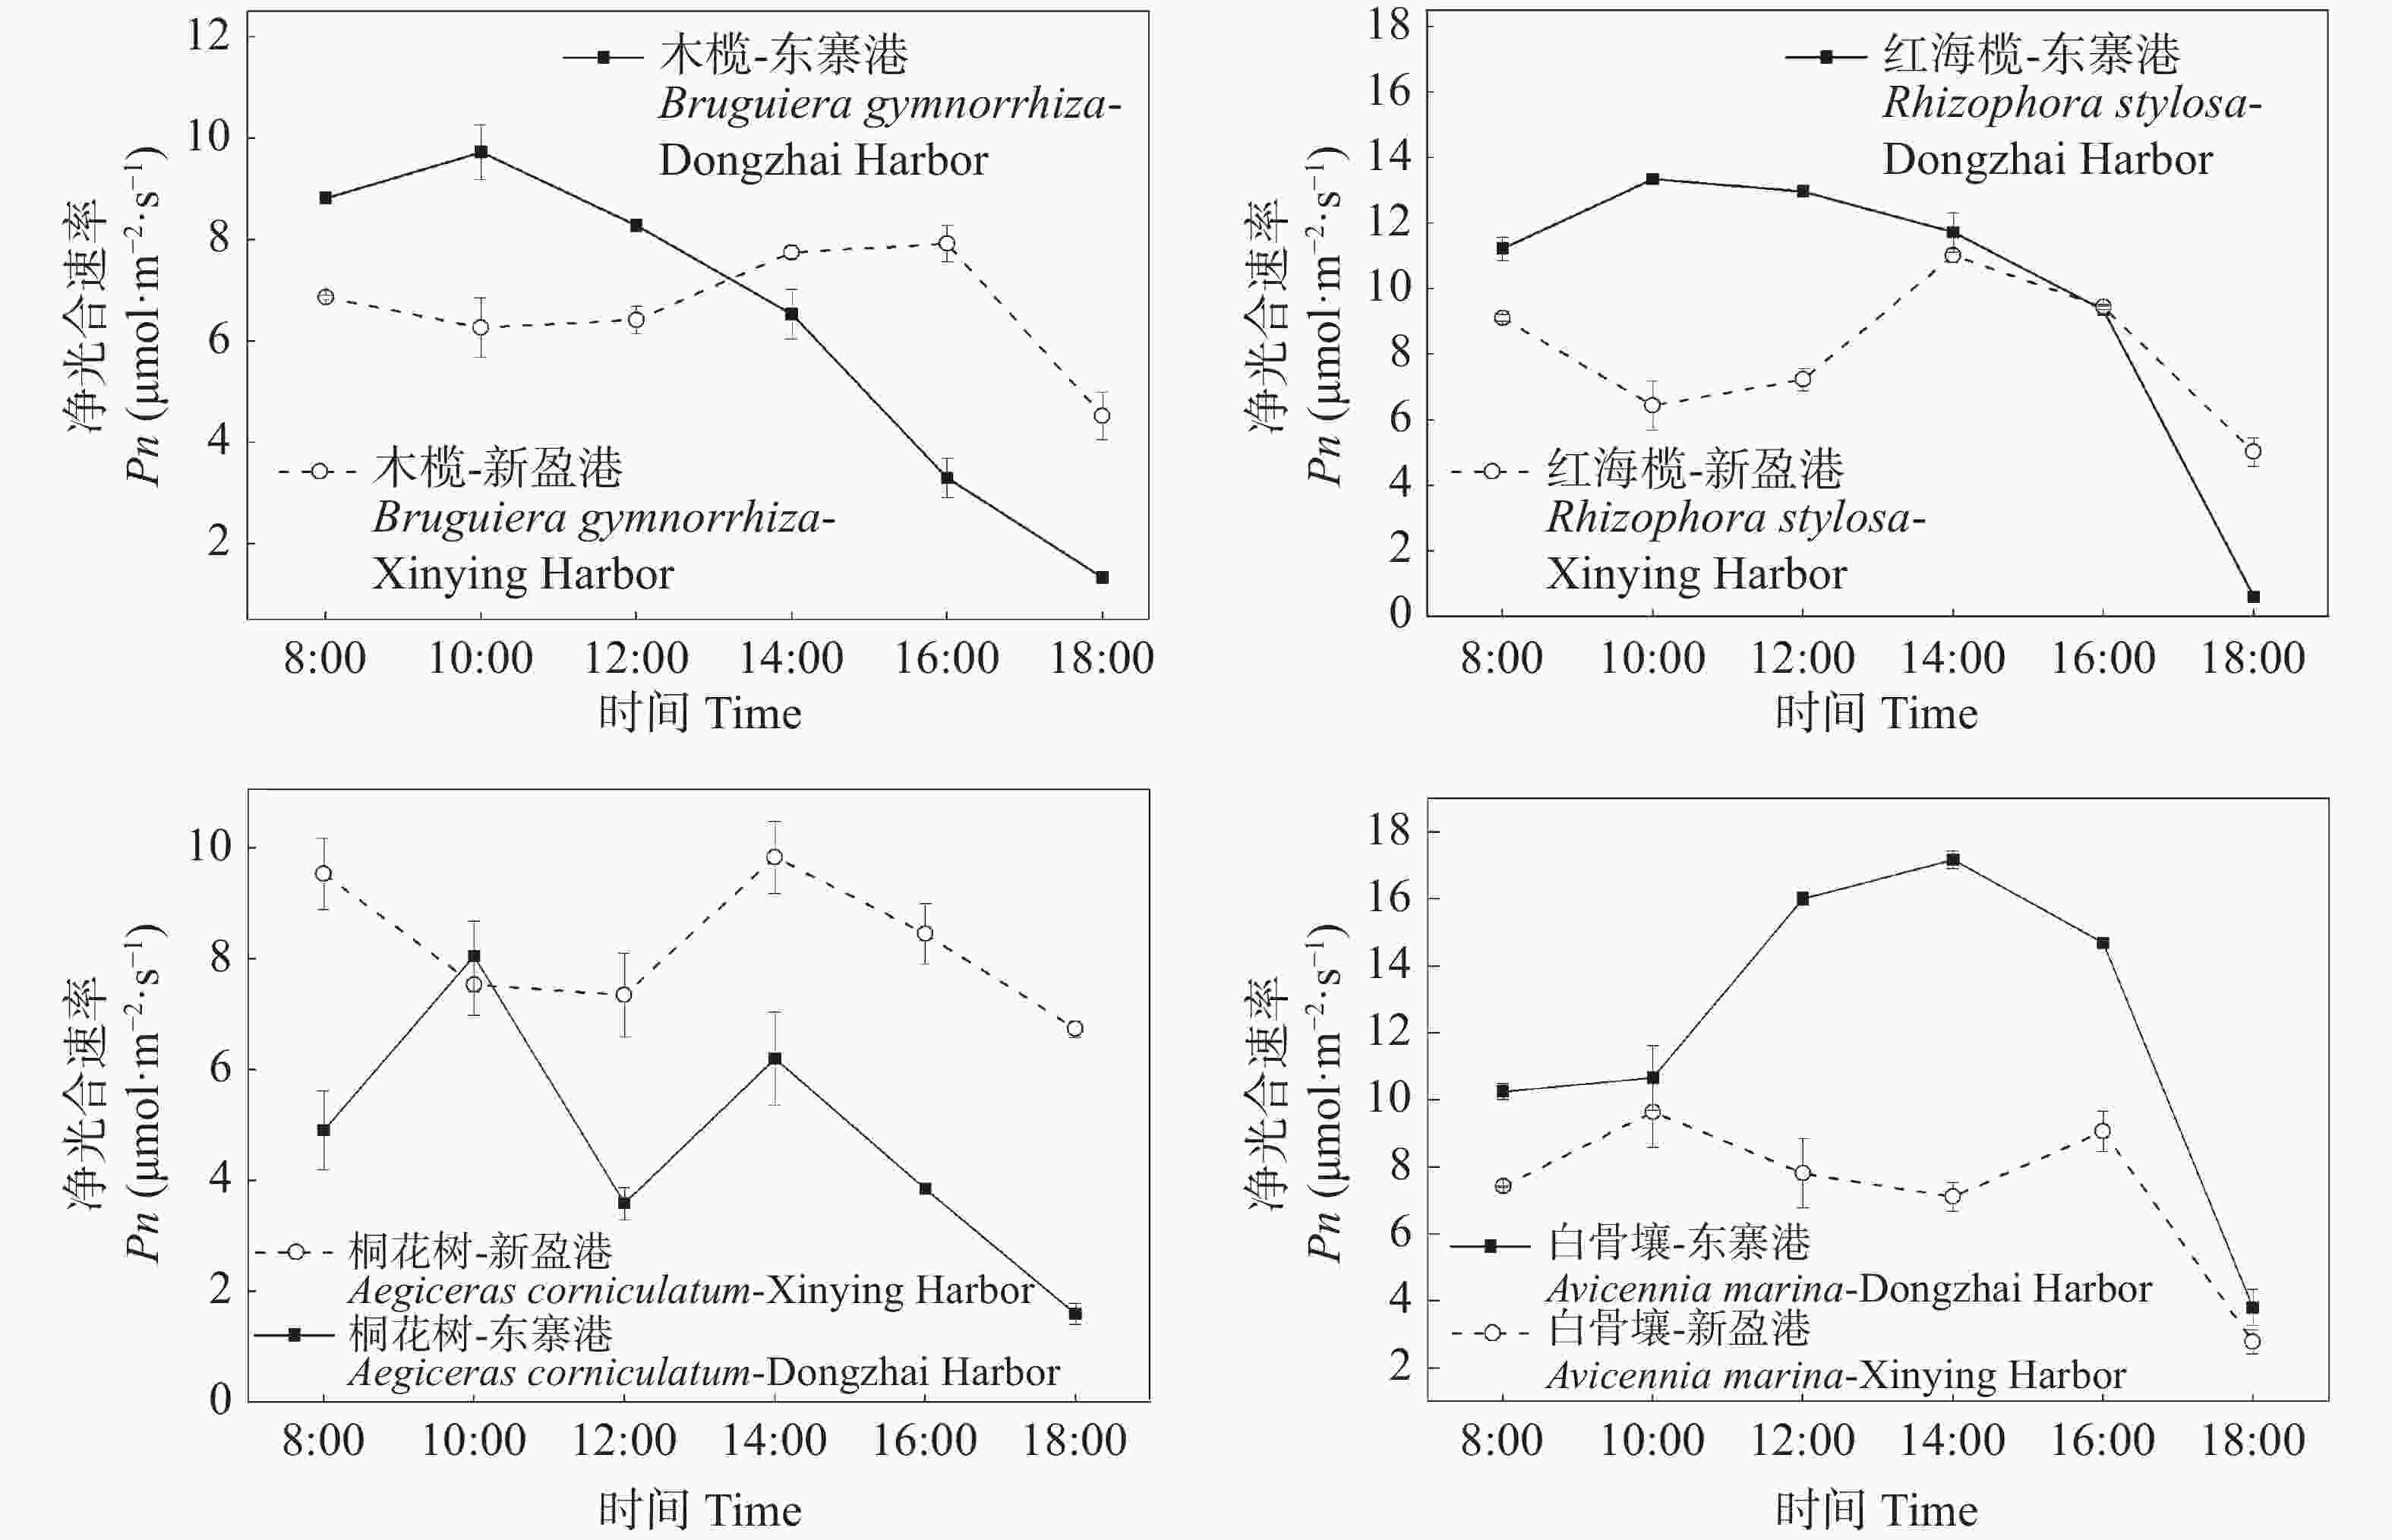
图 1 东寨港和新盈港4种红树植物叶片净光合速率日变化特征(均值±SEM)
Figure 1. Characteristics of diurnal variation photosynthetic rate in the leaves of four mangrove tree species in Dongzhai and Xinying Harbors (mean±SEM)
西部新盈港样地中,木榄、红海榄和桐花树叶片的Pn日变化曲线一致,均呈现先下降后上升再下降的趋势,木榄谷值(6.27±0.58 μmol·m−2·s−1)和红海榄谷值(6.44±0.75 μmol·m−2·s−1)均出现在上午10:00左右,而桐花树谷值(7.34±0.76 μmol·m−2·s−1)出现在12:00左右,其光合“午休”现象时间无统一规律。与其他3种植物日变化趋势不同,白骨壤呈现出波动较小且不对称的“M”型,白骨壤Pn日变化出现2次高峰,第一次峰值(Pn=9.65±1.06 μmol·m−2·s−1)出现在10:00左右,第二次峰值(Pn=9.08±0.60 μmol·m−2·s−1)出现在16:00左右,两次峰值大小无显著差异(P > 0.05)。4种红树的日均Pn值为桐花树(8.24±0.51 μmol·m−2·s−1)>红海榄(8.05± 0.9 μmol·m−2·s−1)>白骨壤(7.31±1.00 μmol·m−2·s−1)>木榄(6.62± 0.50 μmol·m−2·s−1)。
对不同区域的同种植物光合速率均值做比较,结果显示,木榄、红海榄和白骨壤日光合速率均值均无显著差异(P > 0.05),仅有桐花树光合速率均值出现显著差异(P < 0.05),这也体现了各树种自身的特性。此外同种植物在不同区域,其日变化曲线不同,以木榄为例,木榄在两个样地中的变化趋势一致,均为先增加后减小,新盈港木榄波动较平缓,而东寨港木榄波动较大,其出现峰值时间亦不同,东寨港木榄出现峰值时间是上午10:00,新盈港木榄出现峰值时间是16:00,两次峰值差异显著(P< 0.01);对两次峰值出现时间的光合特性因子胞间二氧化碳浓度(Ci)、气孔导度(Gs)、叶温(Tl)、饱和水气压差(VPD)进行差异分析,结果显示两样地Ci和Gs差异显著,Tl和VPD差异不显著,这说明Ci和Gs直接影响了两样地中木榄植被峰值的光合速率。
-
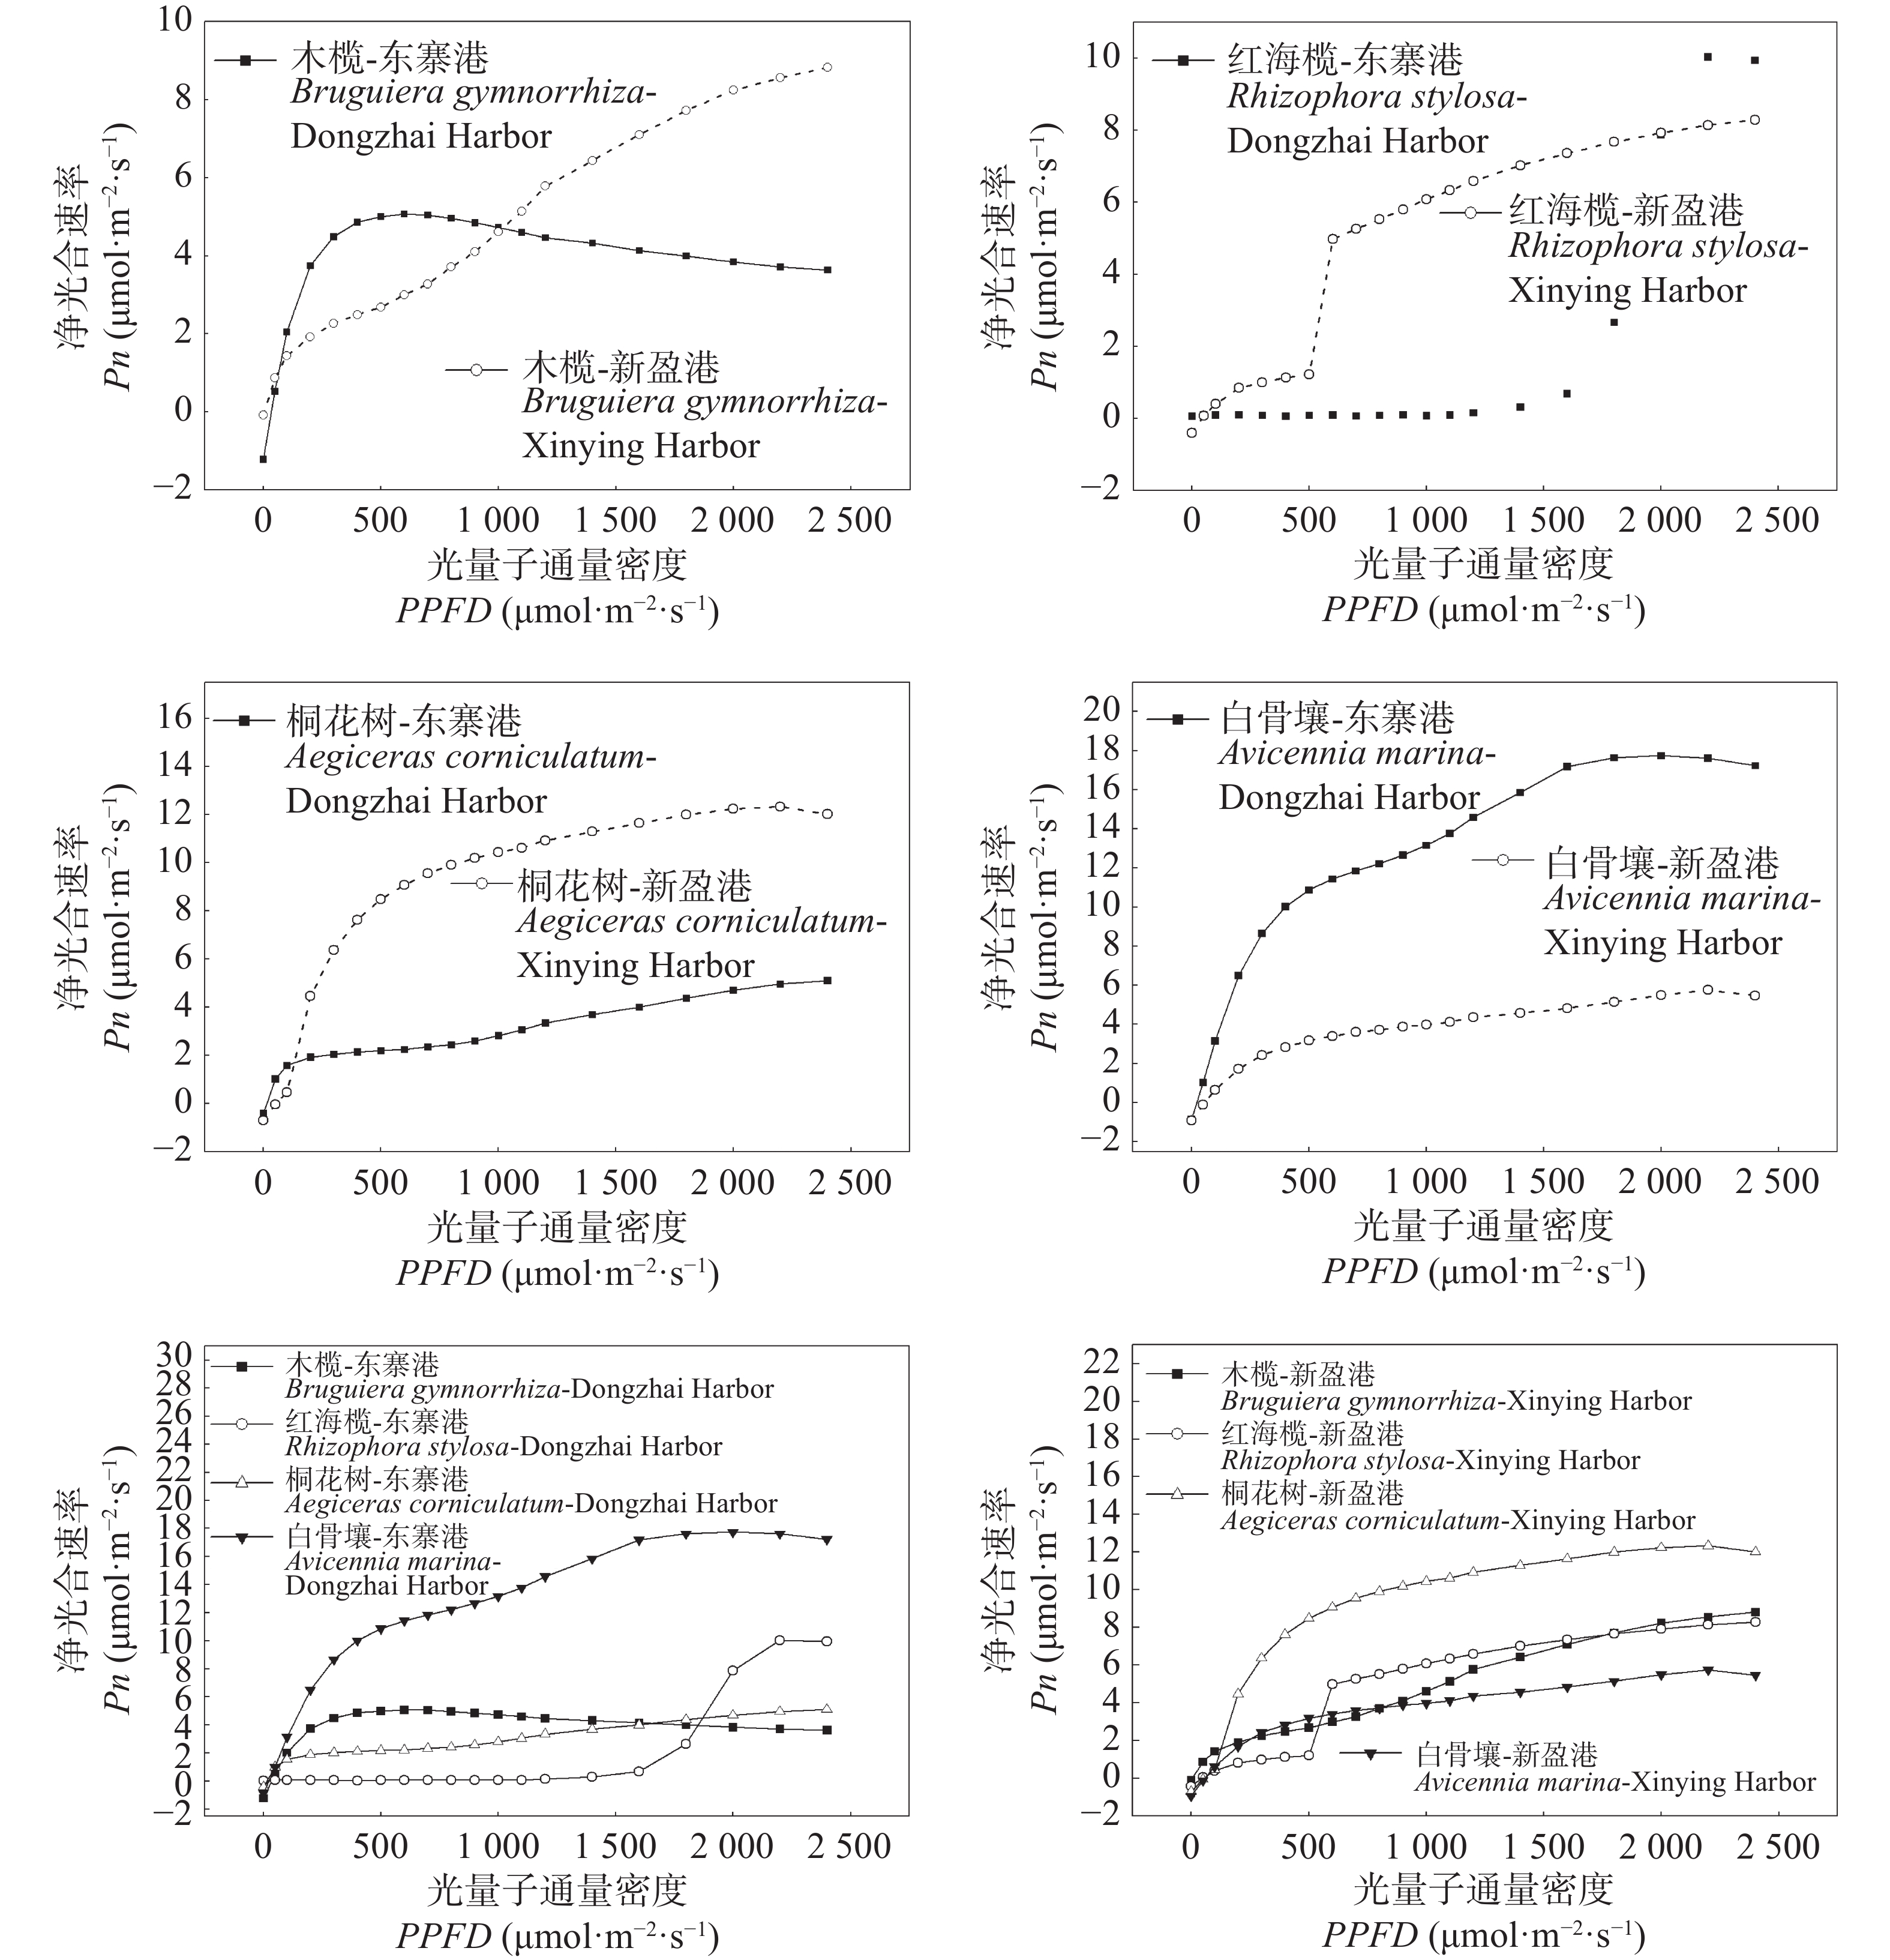
东寨港和新盈港4种红树植物叶片光合速率对光强的响应差异较大(图2),随着时间和光强的变化,4种红树的Pn均随光强增强而增加,随后趋势逐渐变缓。东寨港样地中,相较于其他3种植物,白骨壤Pn对光强的响应程度最强,上升速率最大出现在光量子通量密度50~100 μmol·m−2·s−1之间;木榄和桐花树的Pn在不同光强梯度下增幅较小,趋势线较平缓,Pn最高增加到5 μmol·m−2·s−1左右不再增加。红海榄Pn在不同光强梯度下增加幅度与该样地其他树种相比较特殊,在0~1 500 μmol·m−2·s−1光照区间,Pn基本保持不变,而光强达到1 600 μmol·m−2·s−1后,Pn开始快速增加,且上升速率最大值出现在光强1 800~2 000 μmol·m−2·s−1之间。
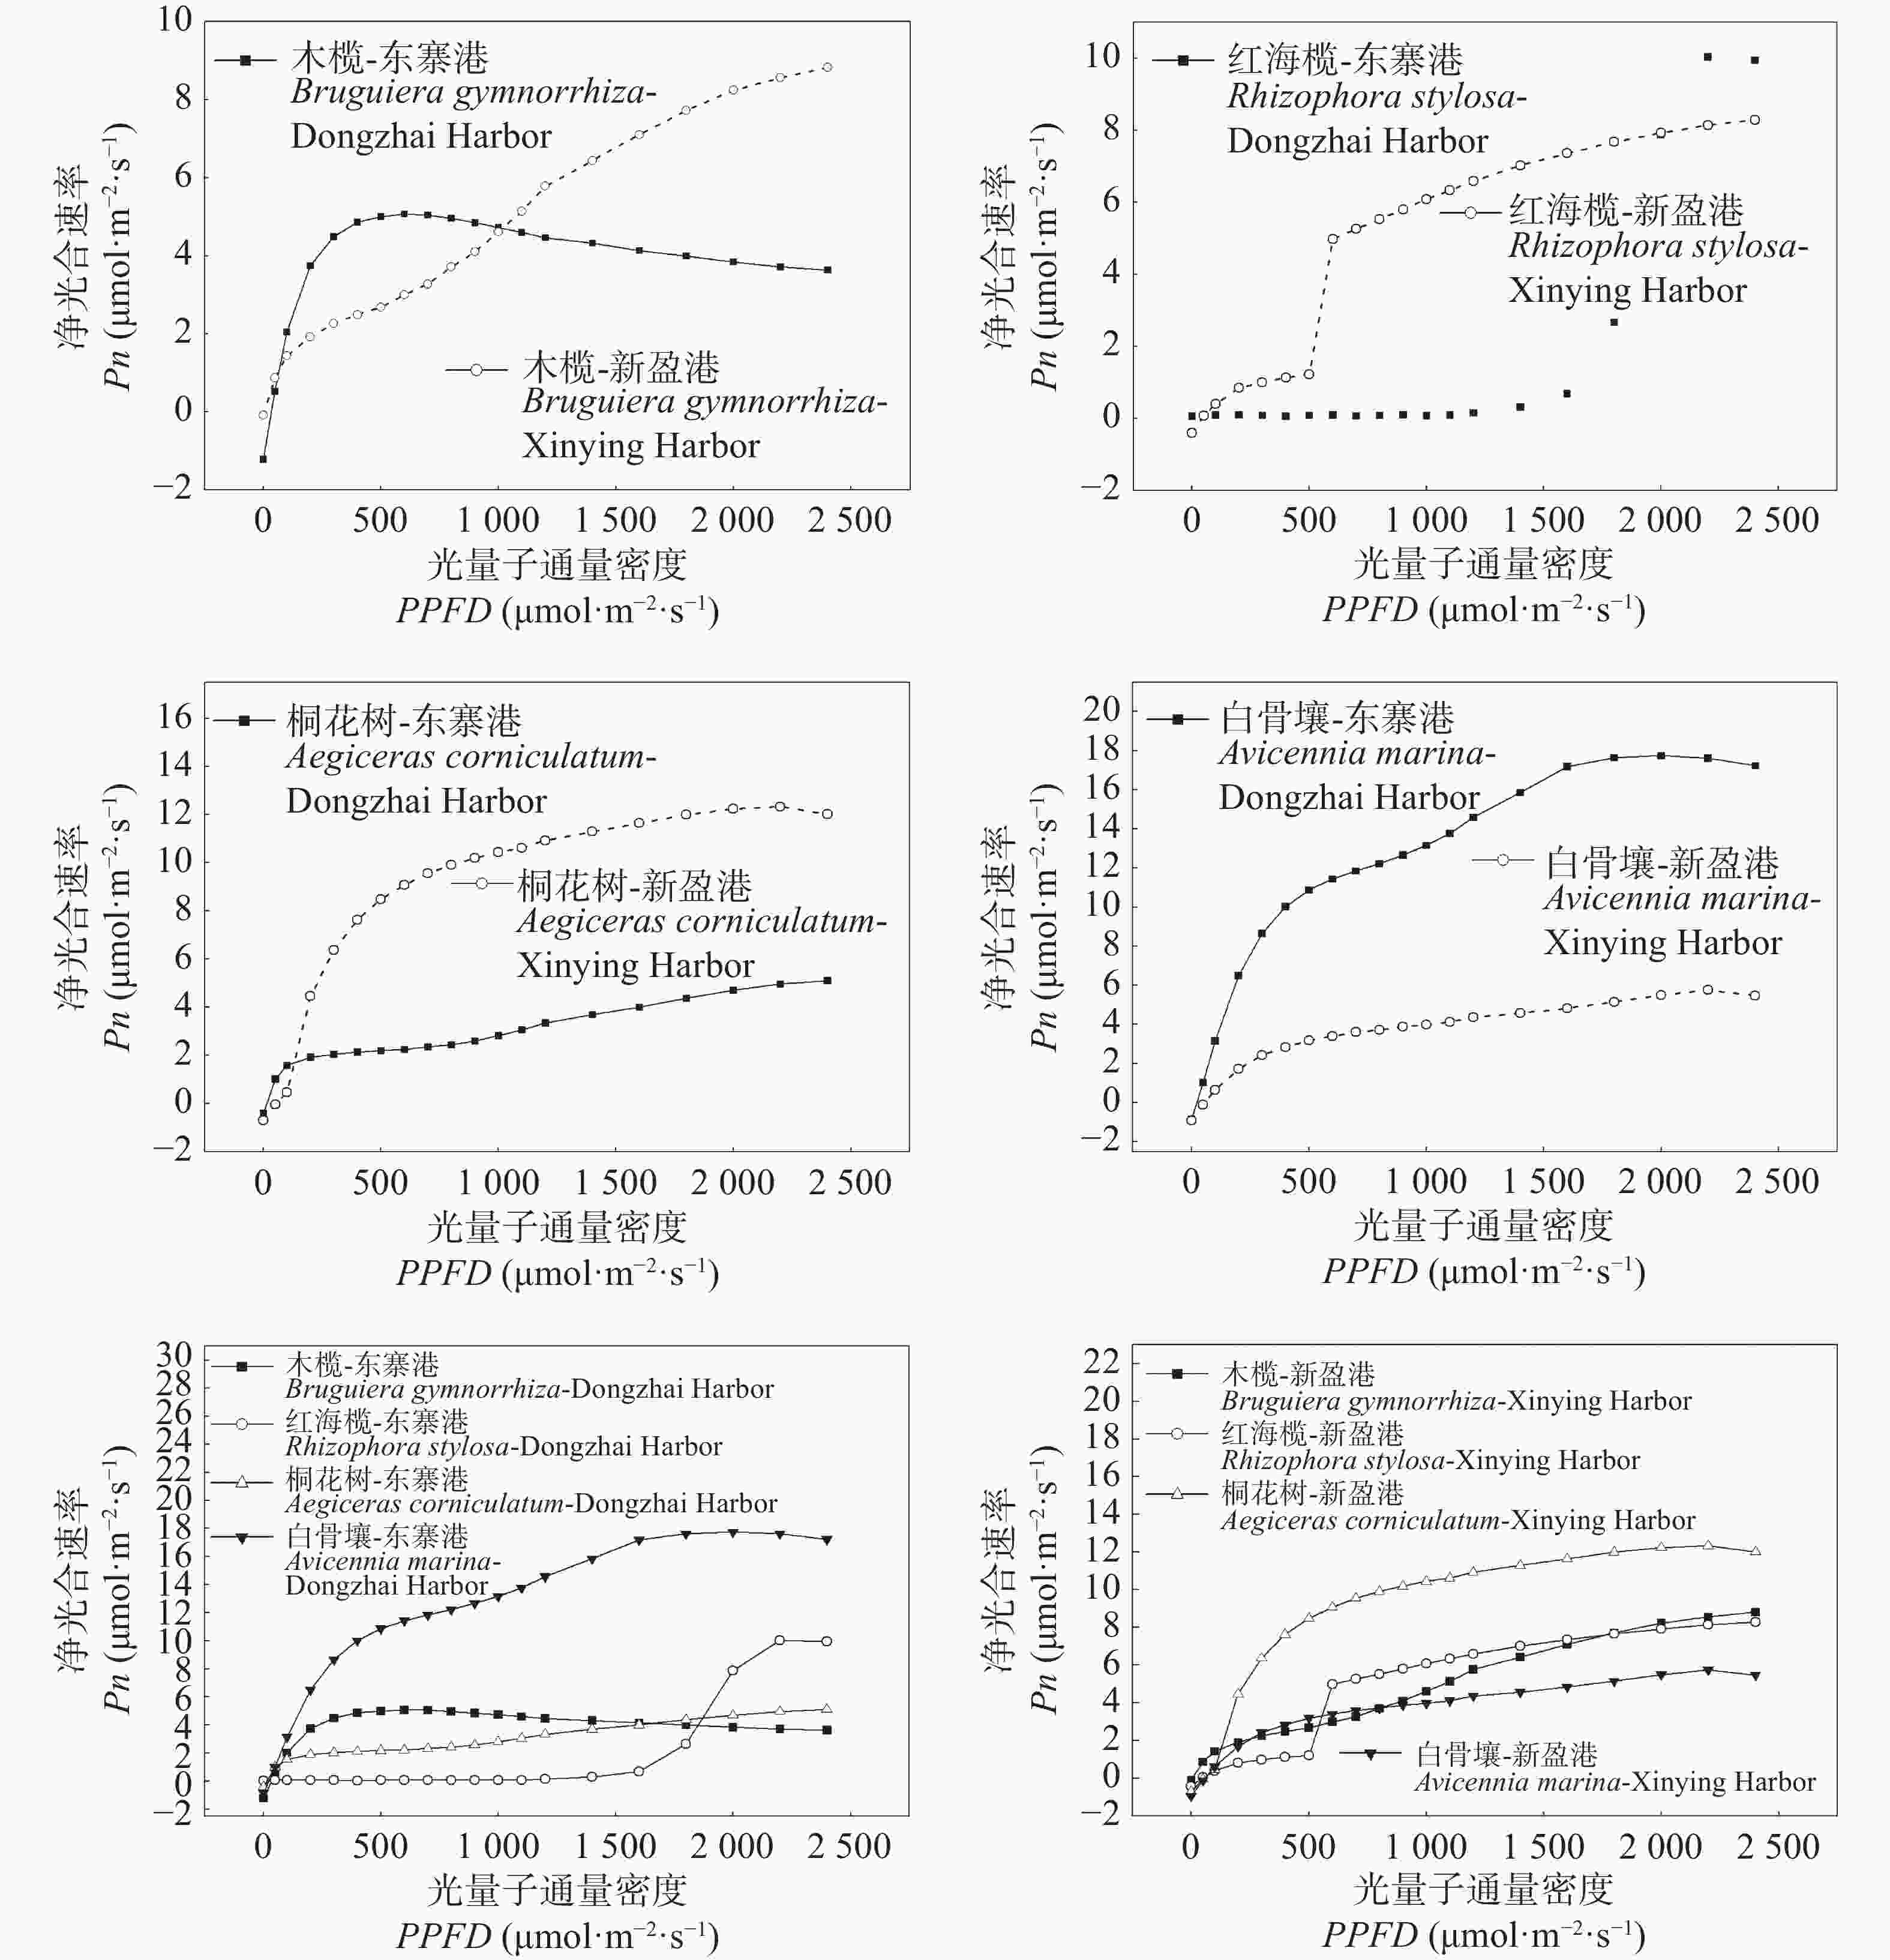
图 2 东寨港和新盈港4种红树植物叶片光响应曲线
Figure 2. Light response curves of the leaves of four mangrove plant species in Dongzhai and Xinying Harbors
新盈港样地中,桐花树Pn对光强的响应程度最强,上升速率最大出现在光量子通量密度100~200 μmol·m−2·s−1之间;红海榄Pn在50~500 μmol·m−2·s−1光照区间增幅与该样地其他树种相比最低,Pn均小于1.21 μmol·m−2·s−1,在600~
2400 μmol·m−2·s−1光照区间Pn陡增到8.29 μmol·m−2·s−1。木榄Pn则随光照增加缓慢增加,Pn从−0.705 μmol·m−2·s−1增加到8.820 μmol·m−2·s−1。白骨壤的Pn在不同光强梯度下增加幅度最小,趋势线较平缓,Pn最高增加到5.76 μmol·m−2·s−1。对比两个样地同种植物的光响应曲线,结果显示,同种植物在不同区域其光响应曲线不同,光补偿点(LCP)和光饱和点(LSP)亦不相同,这说明环境差异对植物吸收光的影响很大。植物叶片LSP和LCP及其两者的差值反映了植物对光照条件的要求及其适应性[14],一般LCP值在0~10 μmol·m−2·s−1之间为阴生植物,大于10 μmol·m−2·s−1则为阳生植物[15],4种红树植物均显示了阳生植物特征,且对光照条件要求最高的是红海榄,尤其在东寨港样地,红海榄的LSP达到2000 μmol·m−2·s−1,其对强光的适应性不言而喻,海南常年光照强度较大,因此,在红树林植被生态修复时可更多选取对光强较敏感的植物。
-
植物的光合作用受多个环境因子综合影响,本次使用逐步多元回归分析方法确定影响光合作用的影响因子,并以此建立“最优”回归方程[15,19]。回归方程(表2)显示影响4种植物的不可或缺的影响因子是气孔导度(Gs)和胞间CO2浓度(Ci),其余影响因子有光合有效辐射(PAR)、饱和水汽压差(VPD)、叶温(Tl)和气温(Ta)等。
表 2 逐步回归方程建立
Table 2. Establishment of stepwise regression equation
样地
Site树种
Tree species逐步回归方程
Stepwise regression equation复相关系数
Multiple correlation coefficient东寨港
Dongzhai Harbor木榄
Bruguiera gymnorhizaPn=−23.796−0.026Ci+52.211Gs+4.260VPD+
3.367Ta−2.726Tl+0.002PAR0.988** 红海榄
Rhizophora stylosaPn=26.237+67.269Gs−2.375VPD−7.846Ta+
7.290Tl−0.006PAR0.978** 桐花树
Aegiceras corniculatumPn=−20.096−0.33Ci+55.145Gs+5.639VPD+
4.621Ta−4.061Tl+0.001PAR0.987** 白骨壤
Avicennia marinaPn=−16.682−0.028Ci−0.037Tl+0.004PAR 0.812** 新盈港
Xinying Harbor木榄
Bruguiera gymnorhizaPn=−14.819−0.019Ci+66.544Gs−3.925VPD−
1.360Ta+2.139Tl+0.0001PAR0.946** 红海榄
Rhizophora stylosaPn=24.614−0.064Ci+53.464Gs+0.020VPD−
2.859Ta+2.736Tl−0.004PAR0.922** 桐花树
Aegiceras corniculatumPn=15.094−0.044Ci+29.849Gs 0.876** 白骨壤
Avicennia marinaPn=20.419−0.063Ci+34.120Gs 0.989** 注:Pn:光合速率;Ci:胞间CO2浓度;Gs:气孔导度;VPD:饱和水汽压差;Ta:气温;Tl:叶温;PAR:光合有效辐射。 为比较光合速率的影响因子的大小关系,使用相关分析完成,结果显示东寨港样地中共同显著影响4种红树植物净光合速率的生理生态因子是叶温(Tl)和光合有效辐射(PAR),对木榄影响大小依次为Gs>PAR>Ta>VPD>Tl>Ci;对红海榄影响大小依次为Gs>PAR>VPD>Ta>Tl>Ci;对桐花树影响大小依次为Gs>PAR>VPD>Tl>Ta,而Ci与Pn呈负显著相关(P < 0.05);对白骨壤影响大小依次为Ci>Tl>PAR>Ta>Gs影响,而VPD与Pn呈负相关(P > 0.05)。新盈港样地中共同影响4种红树林树种净光合速率的主要生理生态因子是Gs和Ci,对木榄影响大小依次为Gs>PAR>Ci>Tl>VPD>Ta;对红海榄影响大小依次为PAR>VPD>Tl>Ta>Gs,而Ci与Pn呈负显著相关(P < 0.05);桐花树受到Gs和Ci影响,与Pn呈显著正相关(P<0.05)。白骨壤主要受到Gs影响,与Pn呈显著正相关(P < 0.05),Ci与Pn呈显著负相关(P < 0.05)。
多元逐步回归分析表明树种不同,影响其光合作用的生态因子不同。东寨港样地中共同影响四种红树林树种净光合速率的是环境因子Tl和PAR。相关性分析显示,光合特性因子中Gs是木榄、红海榄和桐花树3种植物最主要的驱动因素,Ci是白骨壤最主要的驱动因素;环境因子中PAR是4种植物最主要的驱动因素。新盈港样地中,木榄植物光合特性因子中Gs是最主要的驱动因素,环境因子中PAR是最主要的驱动因素,红海榄植物光合特性因子中Ci是最主要的驱动因素,环境因子中PAR是最主要的驱动因素,而对于桐花树和白骨壤植物,光合特性因子Gs和Ci是最主要的两种驱动因素,环境因素影响较小。对比两个样地的主要影响因子的相关系数,研究发现光合特性因子对植被Pn的影响大于环境因子,光合特性因子中Ci和Gs对植被Pn起到关键性作用,这在两个样地4种植物中均体现出共同特性。调控Ci和Gs会影响植物有效吸收水分和营养以及光合作用的效率,因此,实际育苗工作中可通过调节气孔开闭时间来调控气孔导度,科学合理施肥和管理土壤水分调节胞间CO2浓度,以促进植物快速健康生长。
-
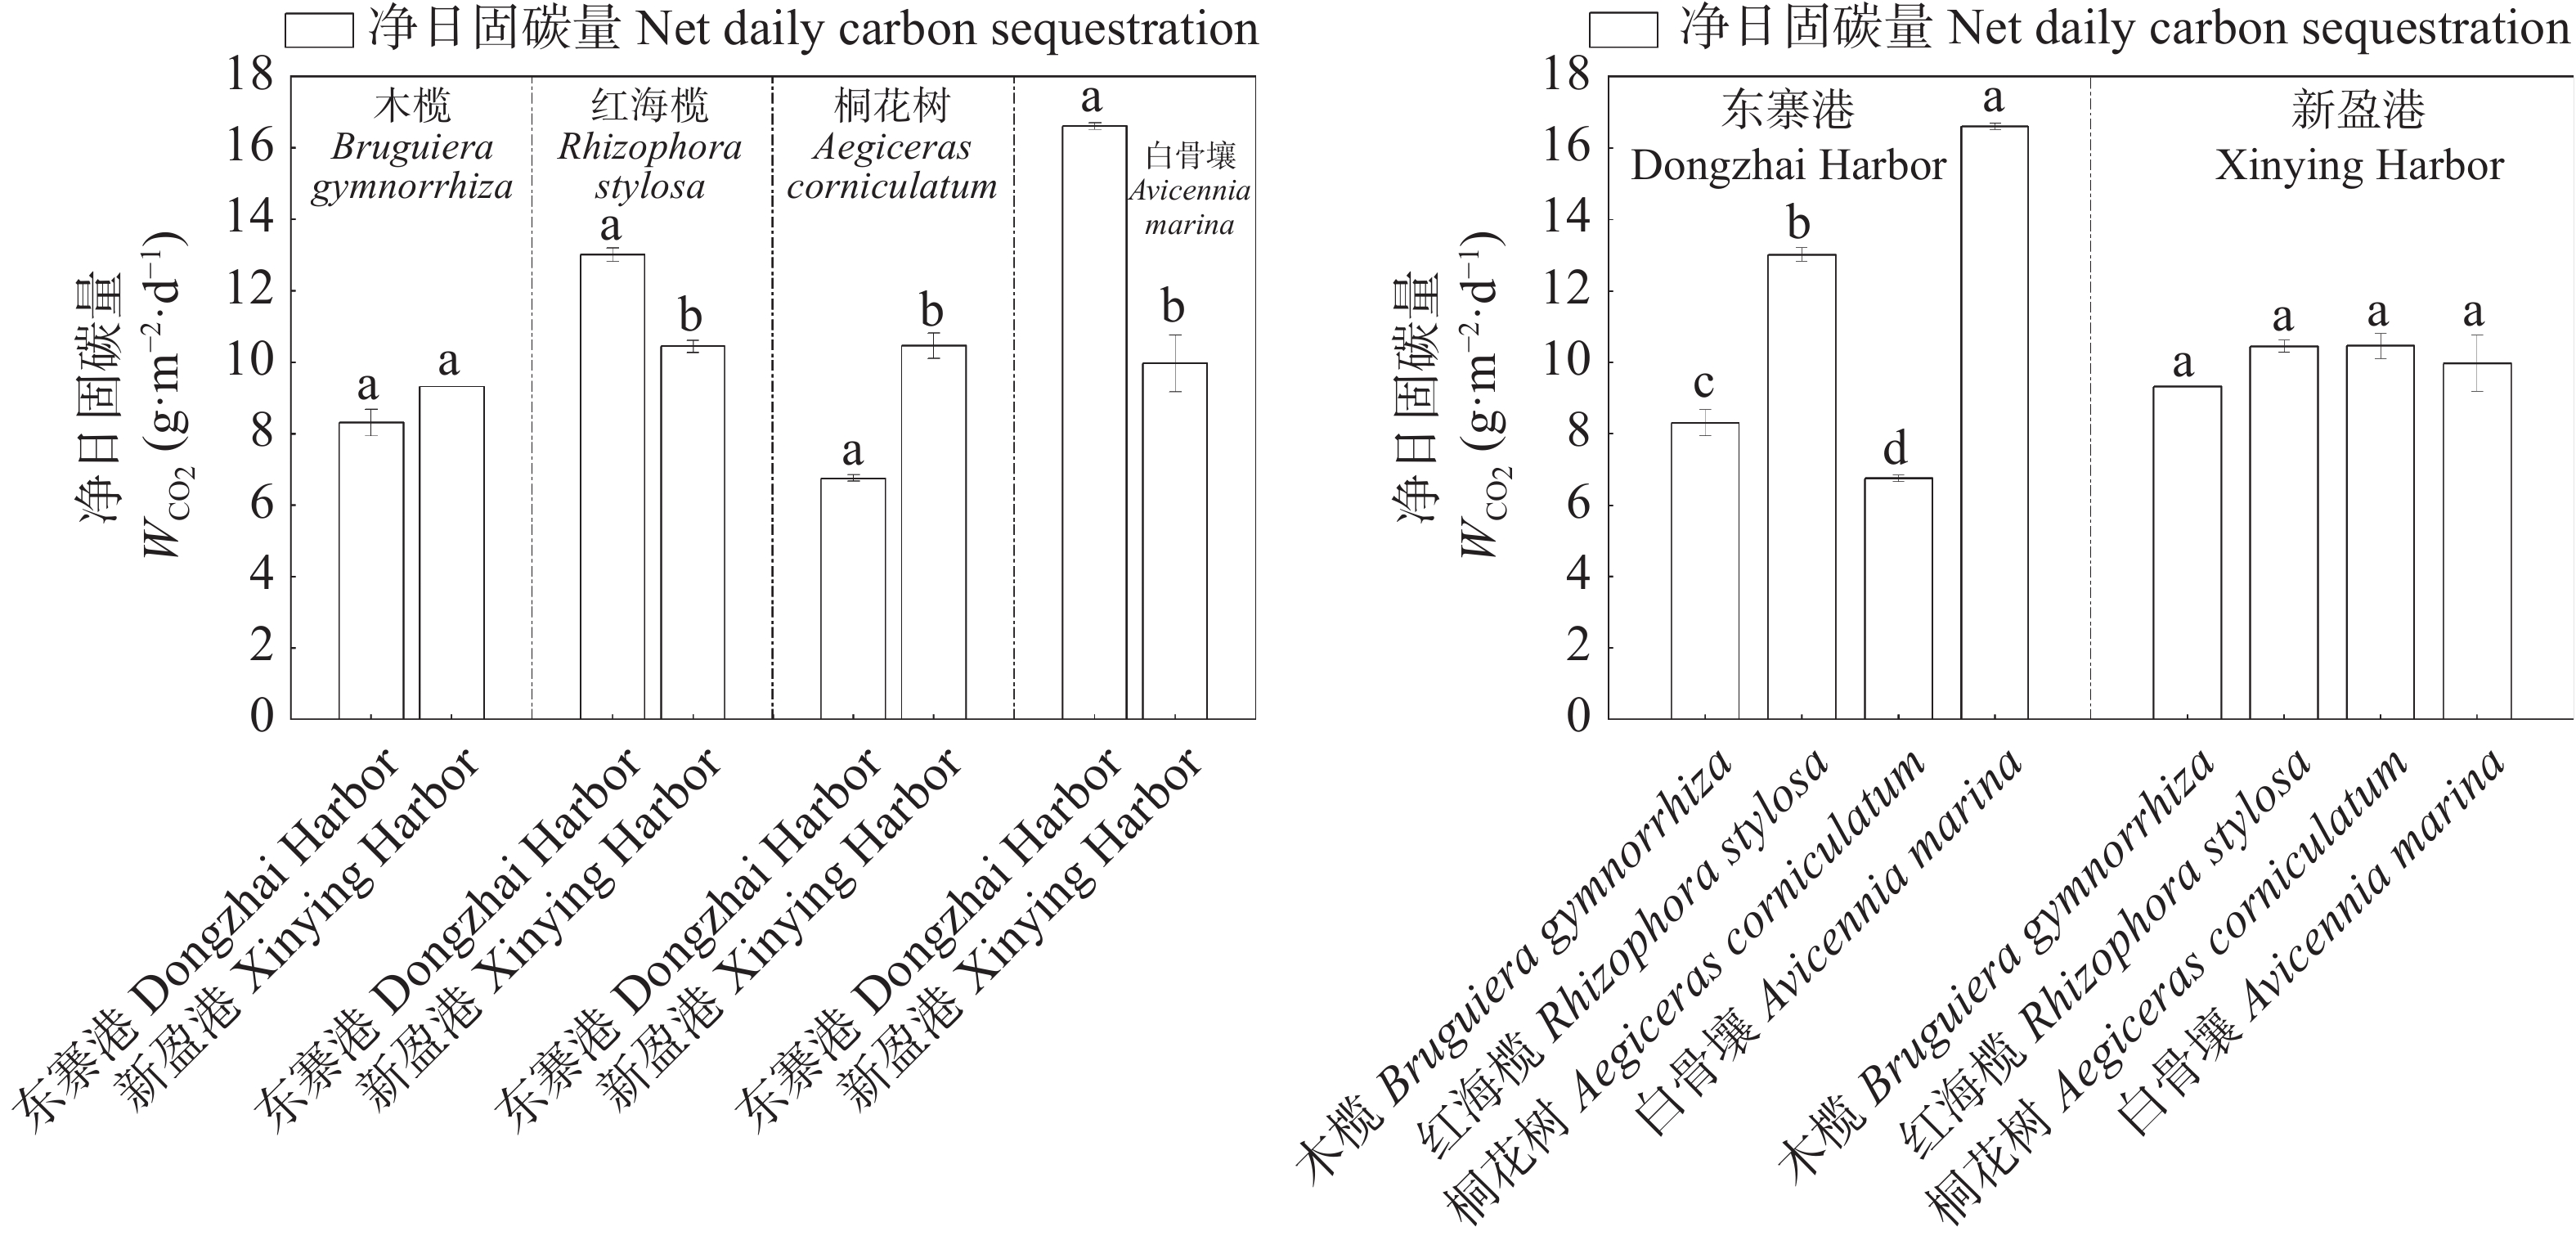
东寨港4种红树植物净日固碳量存在显著差异,且白骨壤>红海榄>木榄>桐花树(图3)。统计结果显示白骨壤净日固碳量最大(16.62±0.09 g·m−2·d−1),桐花树净日固碳量最小(6.76±0.09 g·m−2·d−1),白骨壤净日固碳量是桐花树的2.46倍。新盈港4种红树植物的净日固碳量无显著差异(图3),统计结果显示4种红树植物的净日固碳量在9.33~10.47 g·m−2·d−1之间上下波动。此外,对两个样地同种红树植物净日固碳量进行对比分析后发现,两个不同区域,仅有木榄的净日固碳量无显著差异,其余3种植物均存在显著差异(P < 0.05),且差异最大的是白骨壤,东寨港白骨壤净日固碳量(16.62±0.09 g·m−2·d−1)是新盈港白骨壤净日固碳量(9.98±0.79 g·m−2·d−1)的1.67倍。
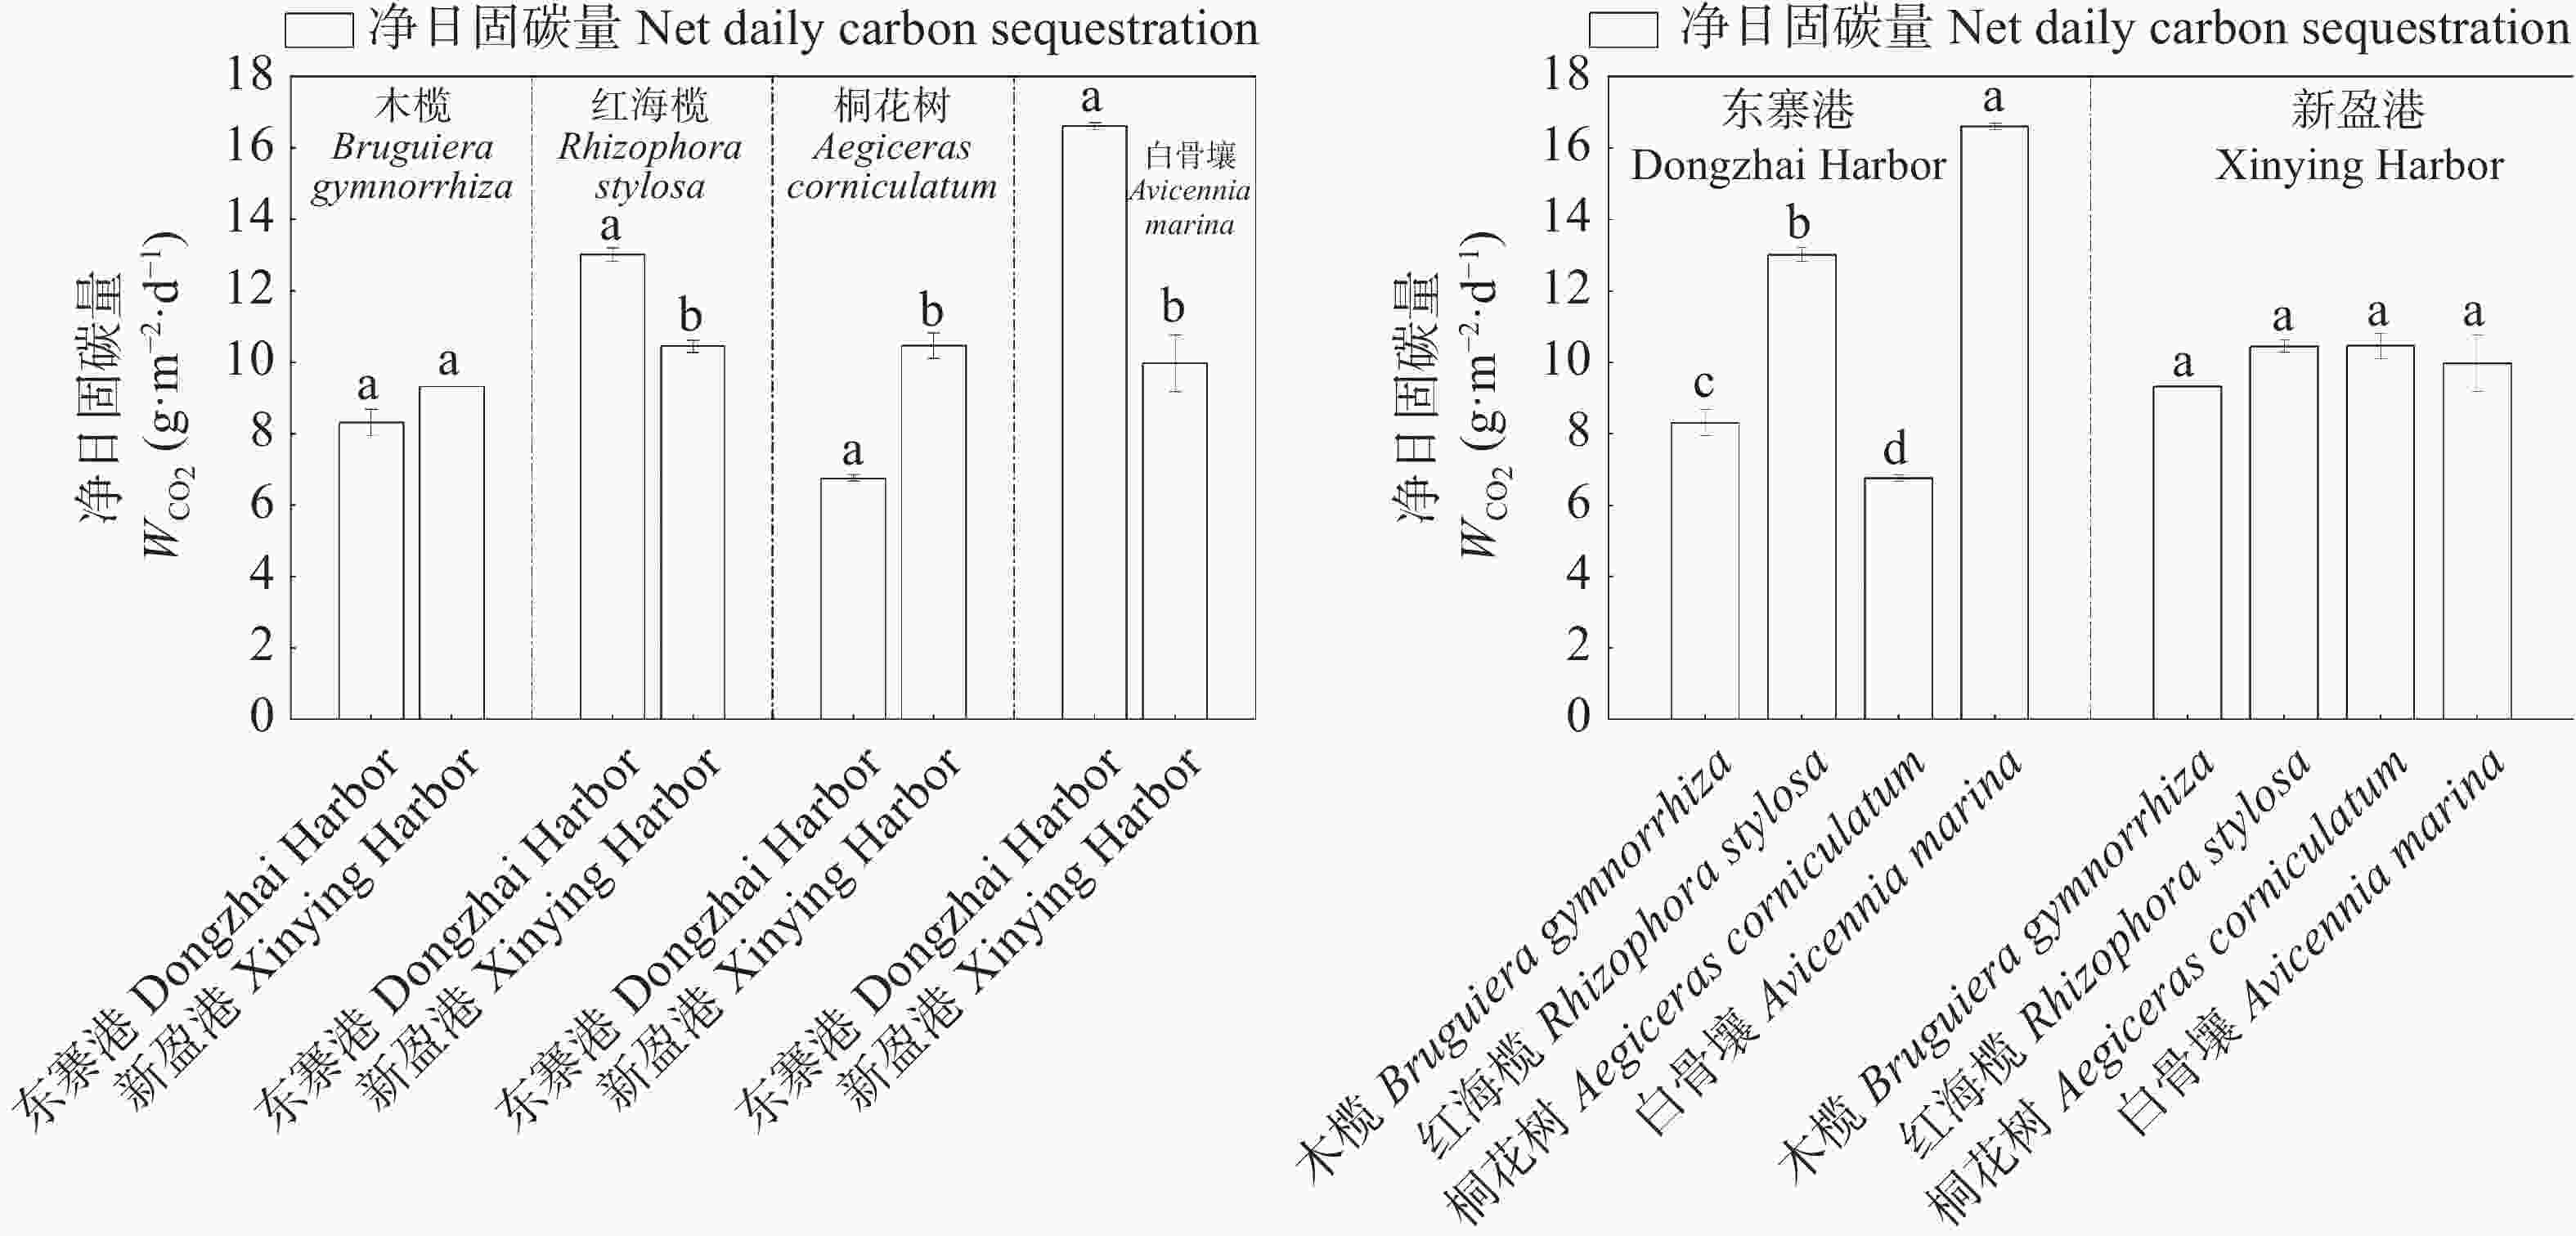
图 3 东寨港和新盈港4种红树植物叶净日固碳量差异性分析
Figure 3. Analysis of difference of net daily carbon sequestration in the leaves of four mangrove species in Dongzhai and Xinying Harbor areas
表 4 两个样地中4种红树林树种净日固碳量
Table 4. Net carbon fixation of four mangrove tree species in two sites
样地
Site树种
Tree species净同化量/(mmol·m−2·d−1)
Net assimilation净日固碳量/(g·m−2·d−1)
Net carbon fixation东寨港
Dongzhai Harbor木榄 Bruguiera gymnorhiza 236.00±10.47 8.31±0.37 红海榄 Rhizophora stylosa 370.07±5.48 13.02±0.19 桐花树 Aegiceras corniculatum 192.16±2.61 6.76±0.09 白骨壤 Avicennia marina 472.11±2.67 16.62±0.09 新盈港
Xinying Harbor木榄 Bruguiera gymnorhiza 265.18±0.40 9.33±0.01 红海榄 Rhizophora stylosa 296.75±4.79 10.45±0.17 桐花树 Aegiceras corniculatum 297.31±9.82 10.47±0.35 白骨壤 Avicennia marina 283.46±22.38 9.98±0.79 -
自然条件下,4种红树植物叶片Pn日变化曲线趋势差异较大,与张柳等[20]在广东福田研究的11种红树植物日变化差异性结果一致,这一现象表明相同的环境条件下,不同植被具有各自独特的生态适应性。本研究对海南东北部和西部样地中不同植物种类的Pn进行了系统的观测与比较,结果表明,植物对光照时间的响应存在明显差异,东寨港样地中,木榄、红海榄和桐花树Pn值均在10:00左右达到峰值,而白骨壤则推迟至14:00才显现出光合潜力,这一发现揭示了植物的光合作用在不同时间段受到环境因素的影响,可能与其生理特性、生长阶段以及适应性策略密切相关。相对而言,新盈港样地中的植物,其中包括木榄、红海榄、桐花树和白骨壤,其Pn值均在14:00或16:00左右达到最大,这一现象可能与该样地的微气候条件及阳光照射时间的长短有关,总体来看,这些结果揭示了植物表现出的时间性光合活动模式,反映了生态适应性的重要性。此外,本研究深入探讨了同种树种在不同地理区域其日变化曲线的差异,并发现影响净光合速率的主要因素之一是地理位置,同一物种在不同地理位置,其光合潜力差异较大[17-18]。
相关性分析表明两个样地中最重要因子是Gs、Ci和PAR,逐步多元回归方程分析表明不同植物驱动光合作用的响应因子不同,Gs在木榄、红海榄和桐花树等植物中扮演着主要角色,而对白骨壤而言,Ci则是影响其光合特性的首要因素;此外,PAR作为一个关键的环境因子,对四种植物的光合特性均表现出显著的影响,这一现象表明,尽管不同树种在光合作用特性上存在差异,但PAR的影响是一致的。Kripa等[21]研究发现PAR在决定光利用效率方面起着至关重要的作用,除PAR外,其他环境因素对红树林的生产力方面起着重要作用,这一结论与我们的研究结果不谋而合。
红树林生态系统在全球碳循环中占据重要地位,其碳储量主要由植被生物量和土壤碳储量构成,红树林植被通过光合作用将大气中的二氧化碳转化为有机物,同时通过根系及其分解过程,促进了土壤中碳的积累[22]。目前,多位学者对红树林光合固碳能力进行了研究,缪绅裕[23]、李林锋[24]等分别对广东、广西等地区的特色种进行了研究,结果显示各植被固碳能力差异较大。在近年来对红树林生态系统碳固存能力的研究中,植物种类与地理位置被认为是影响固碳量的两个重要因素。张柳等[20]在广东福田红树林的研究中,指出了海杧果(Cerbera manghas L.)、杨叶肖槿【Thespesia populnea(L.)Soland. ex Corr.】、秋茄和木榄4种红树植物的净日固碳量在10.15~16.03 g·m−2·d−1之间,这一结果为理解红树林在不同地理环境下的固碳能力提供了基础。另一方面,东寨港和新盈港两个样地的研究则进一步揭示了地理位置对红树林固碳能力的影响。东寨港样地中4种红树植物的净日固碳量为6.76~16.62 g·m−2·d−1,与张柳等[23]的结果较为接近,这表明该区域的生态条件可能与福田区相似。反观新盈港样地,其固碳量为9.33~10.47 g·m−2·d−1,略低于张柳等[20]的研究结果,这可能与植被种类的组成和生长环境的差异密切相关。
红海榄、桐花数和白骨壤3种红树植物在海口东寨港与儋州新盈港两研究区净日固碳量均存在显著差异,尤以白骨壤为代表,东寨港白骨壤净日固碳量是新盈港白骨壤的1.67倍。该差异本质上源于红树植物叶片光合生理特性对局地微气候与环境胁迫产生了生态适应性调节[25]。生境特征方面,东寨港红树林群落属于低盐-富碳-壤土型生境,新盈港红树林群落属于高盐-贫碳-砂质黏壤土型生境,两个研究区生境存在极显著差异,驱动不同区域红树植物形成了差异化的环境适应策略,以适应高盐、需要盐分维持细胞渗透压的白骨壤为例,东寨港环境极低的盐度(9.50‰)对其而言成为一种“低盐胁迫”,这导致其根系吸水或体内离子平衡受扰,表3中白骨壤净光合速率(Pn)与胞间浓度(Ci)呈极显著正相关(R=0.605**),表明它在东寨港由于低盐逆境导致了光反应受抑制,二氧化碳在胞间堆积却无法转化为生物量,这一理论在Clough & Sim(1989)的研究中得到证实[26]。与之相反,新盈港高盐环境下(25.4‰),白骨壤极度适应,这在表3中净光合速率(Pn)与气孔导度(Gs)呈极显著正相关(R=0.894**)得到证实,表明白骨壤在新盈港生理代谢旺盛,主要受气孔开放度的直接驱动。群落土壤方面,东寨港高度肥沃的生长土壤致使植被叶片能够合成大量的Rubisco酶和叶绿素,而新盈港土壤极其贫瘠,植被在缺氮少磷的背景下,叶片内部光合机器处于低效运转状态,这一差异亦导致了白骨壤在两个研究区固碳能力的不同[25]。微气候方面,8月为海南盛夏与主汛期,海口和儋州虽同处海南北部,但由于海南中高四周低的地形,导致两地在气象因子的瞬时表现和空间分布存在显著非对称差异,东寨港属于低VPD-湿润微气候,生境资源充沛,温度条件适宜,白骨壤叶片固碳过程呈现典型的气孔与光照驱动特征[27];新盈港则属于高VPD-干旱胁迫型微气候,受外海高盐生境与贫瘠底质共同限制,微环境胁迫引发了强烈的光合生化瓶颈,迫使红树植物通过精细调控胞间CO2浓度(Ci)以适应恶劣的水分亏缺生境。这些结果提示我们,红树林植物的固碳能力不仅受植物本身的生物特性影响,同时也受环境因素和地理条件的制约,本研究将有助于提高对红树林生态系统在全球碳循环中所扮演角色的理解,亦为红树林的保护与恢复提供科学依据。从整体来看,红树林生态系统为应对气候变化和生物多样性保护提供了重要支持,其固碳潜力亟须在不同地域和物种下进行系统的研究。
表 3 两个样地中4种红树植物净光合速率与其主要影响因子间的相关分析
Table 3. The correlation analysis on the net photosynthetic rate and its affecting factors of four mangrove tree species in two sites
样地
Site树种
Tree species光合特性因子
Photosynthetic characteristic factors环境因子
Environmental factorsCi Gs VPD Tl Ta PAR 东寨港
Dongzhai Harbor area木榄
Bruguiera gymnorhiza0.140** 0.916** 0.437** 0.380** 0.467** 0.589** 红海榄
Rhizophora stylosa0.228 0.935** 0.559** 0.404** 0.495** 0.726** 桐花树
Aegiceras corniculatum−0.622** 0.905* 0.354** 0.290* 0.285* 0.517** 白骨壤
Avicennia marina0.605** 0.008 −0.158 0.519** 0.234 0.390** 新盈港
Xinying Harbor area木榄
Bruguiera gymnorhiza0.498** 0.629** 0.427** 0.429** 0.404** 0.562** 红海榄
Rhizophora stylosa−0.566** 0.321* 0.470** 0.395** 0.357** 0.513** 桐花树
Aegiceras corniculatum0.404** 0.806** −0.086 −0.182 −0.043 0.198 白骨壤
Avicennia marina−0.55** 0.894** −0.46 0.03 0.164 −0.066 注:**表示在0.01级别(双尾),相关性极显著。* 表示在0.05级别(双尾),相关性显著。 Note: ** indicates highly significant correlation at the level of 0.01(two-tailed); * indicates significant correlation at the level of 0.05(two-tailed). -
1)不同生境的同种树种日光合速率均值比较,其中,木榄、红海榄和白骨壤3种植物均无显著差异(P>0.05),这表明它们光合生理特性具有较高的稳定性;桐花树光合速率均值出现显著差异(P<0.05),反映该物种对异质生境具有特异生态适应性。
2)不同样地的同种物种光合日变化曲线和拟合的光响应曲线差异较大,日变化曲线总体呈现两种趋势单峰型和双峰型,光响应曲线总体呈现先增加后平缓的趋势,差异性受所处区域环境的影响较大。
3)4种红树植物叶片,气孔导度(Gs)和胞间CO2浓度(Ci)是影响其光合速率的关键生理参数,且光合特性因子对光合速率的影响程度高于环境因子。
4)4种红树植物叶片的日净固碳量差异极显著,东寨港样地中白骨壤和红海榄日净固碳量较大(1.57、1.22 g∙m−2∙d−1),木榄和桐花树较小(0.84、0.61 g∙m−2∙d−1);新盈港样地中桐花树和红海榄日净固碳量较大(1.04、1.02 g∙m−2∙d−1),白骨壤和木榄较小(0.95、0.83 g∙m−2∙d−1)。
5)不同生境的同种植物净日固碳量存在分异,木榄的净日固碳量无显著差异,其余3种植物均存在显著差异(P<0.05),且差异最大的是白骨壤,东寨港白骨壤净日固碳量是新盈港白骨壤的1.67倍。
海南4种典型红树植物光合特性及固碳机制研究
DOI: 10.15886/j.cnki.rdswxb.20260077
 CSTR: 32425.14.j.cnki.rdswxb.20260077
Photosynthetic characteristics and carbon sequestration mechanisms of four typical mangrove species on Hainan Island, China
-
摘要: 运用Li-
6800 光合测定系统,对海南东寨港和新盈港4种优势物种(木榄Bruguiera gymnorhiza、红海榄Rhizophora stylosa、白骨壤Avicennia marina和桐花树Aegiceras corniculatum)的光合生理和环境因子参数进行活体监测,评估其固碳能力,旨在探究海南东部和西部典型红树植物叶片光合特性及固碳能力差异性。结果表明:1)不同生境的同一树种对比,木榄、红海榄和白骨壤3种植物叶片日光合速率均值无显著差异,表明3种红树植物的光合生理特性具有较高的稳定性;桐花树日光合速率均值呈现显著差异,反映该物种对异质生境具有特异生态适应性。2)4种植被叶片日变化曲线呈现单峰和双峰两种形态,光响应曲线均呈先增加后平缓的趋势,同一物种在不同样地的光合日变化曲线和光响应曲线差异较大,这种差异主要受所处区域环境异质性驱动。3) 4种植物叶片,气孔导度(Gs)和胞间CO2浓度(Ci)是影响其光合速率的关键生理参数,且光合特性因子对光合速率的影响程度高于环境因子;4) 4种红树植物叶片的日净固碳量差异极显著,东寨港样地中白骨壤和红海榄日净固碳量较大(1.57、1.22 g·m−2·d−1),木榄和桐花树较小(0.84、0.61 g·m−2·d−1);新盈港样地中桐花树和红海榄日净固碳量较大(1.04、1.02 g·m−2·d−1),白骨壤和木榄较小(0.95、0.83 g·m−2·d−1)。5)不同生境的同一植物净日固碳量存在分异,木榄净日固碳量无显著差异,白骨壤、红海榄和桐花数净日固碳量差异显著,其中差异最大的是白骨壤,东寨港白骨壤净日固碳量是新盈港白骨壤的1.67倍。Abstract: An attempt was made to examine variations in photosynthetic traits and the carbon sequestration potential of representative mangrove species located in the east and west parts of Hainan Island. The Li-6800 photosynthesis measurement system was utilized to monitor the photosynthetic physiology and associated environmental parameters of four dominant mangrove species (Bruguiera gymnorhiza, Rhizophora stylosa, Avicennia marina and Aegiceras corniculatum) in situ at Dongzhai Harbor and Xinying Harbor for subsequent assement of their carbon sequestration. The results showed that in the context of identical species inhabiting disparate environments, a lack of siginificant variation in the mean daily photosynthetic rates of B. gymnorhiza, R. stylosa, and A. marina leaves was observed, which suggests a high degree of stability in the photosynthetic physiological characteristics of these species. In contrast, A. corniculatum exhibited significant differences in mean daily photosynthetic rate, reflecting its species-specific ecological adaptability to heterogeneous habitats. The diurnal variation patterns of leaf photosynthesis in the four species appeared as either single-peak or double-peak curves, while light response curves consistently exhibited an initial increase followed by a plateau phase. It is noteworthy that both diurnal variation and light response curves for the same species differed significantly between the two sites, primarily due to environmental heterogeneity. An analysis of the physiological parameters showed that stomatal conductance (Gs) and intercellular CO2 concentration (Ci) were critical determinants influencing photosynthetic rates across the four species. Futhermore, intrinsic photosynthetic characteristics exhibited a more substantial effect on photosynthetic performance than external environmental factors. The net daily carbon sequestration of the leaves varied significantly among the four mangrove species. In the Dongzhai Harbor area, A. marina and R. stylosa exhibited relatively high net daily carbon sequestration (1.57 and 1.22 g∙m−2∙d−1, respectively), while B. gymnorhiza and A. corniculatum showed lower net daily carbon sequestration (0.84 and 0.61 g∙m−2∙d−1, respectively). In contrast, in the Xinying Harbor area, A. corniculatum and R. stylosa had relatively high net daily carbon sequestration (1.04 and 1.02 g∙m−2∙d−1, respectively), whereas A. marina and B. gymnorhiza had lower net daily carbon sequestration (0.95 and 0.83 g∙m−2∙d−1, respectively). The net daily carbon sequestration of the same species differred across habitats. B. gymnorhiza showed no significant variation, but A. marina, R. stylosa, and A. corniculatum exhibited significant differences. Notably, A. marina showed the highest variation, with its daily net carbon sequestion being 1.67 times higher in Dongzhai Harbor than in Xinying Harbor. -
图 2 东寨港和新盈港4种红树植物叶片光响应曲线
Fig. 2 Light response curves of the leaves of four mangrove plant species in Dongzhai and Xinying Harbors
图 3 东寨港和新盈港4种红树植物叶净日固碳量差异性分析
Fig. 3 Analysis of difference of net daily carbon sequestration in the leaves of four mangrove species in Dongzhai and Xinying Harbor areas
表 1 选取的红树植被信息
Table 1 Information on mangrove vegetation
类别
Type植被名称
Species科属
Family and genus生活型
Life form株高/m
Height胸径/cm
Diameter at
breast height叶面积/cm2c
Leaf area真红树植物
True mangroves木榄
Bruguiera gymnorrhiza红树科木榄属
Rhizophoraceae, Bruguiera乔木
Tree1.7~3.0 20 55~60 桐花树
Aegiceras corniculatum报春花科蜡烛果属
Primulaceae, Aegiceras乔木
Tree1.4~1.8 12 16~28 红海榄
Rhizophora stylosa红树科红树属
Rhizophoraceae, Rhizophora乔木
Tree2.8~3.1 18 39.9~50 白骨壤
Avicennia marina马鞭草科海榄雌属
Verbenaceae, Avicennia乔木
Tree2.4~2.6 18 6~11  下载: 导出CSV
表 2 逐步回归方程建立
Table 2 Establishment of stepwise regression equation
样地
Site树种
Tree species逐步回归方程
Stepwise regression equation复相关系数
Multiple correlation coefficient东寨港
Dongzhai Harbor木榄
Bruguiera gymnorhizaPn=−23.796−0.026Ci+52.211Gs+4.260VPD+
3.367Ta−2.726Tl+0.002PAR0.988** 红海榄
Rhizophora stylosaPn=26.237+67.269Gs−2.375VPD−7.846Ta+
7.290Tl−0.006PAR0.978** 桐花树
Aegiceras corniculatumPn=−20.096−0.33Ci+55.145Gs+5.639VPD+
4.621Ta−4.061Tl+0.001PAR0.987** 白骨壤
Avicennia marinaPn=−16.682−0.028Ci−0.037Tl+0.004PAR 0.812** 新盈港
Xinying Harbor木榄
Bruguiera gymnorhizaPn=−14.819−0.019Ci+66.544Gs−3.925VPD−
1.360Ta+2.139Tl+0.0001PAR0.946** 红海榄
Rhizophora stylosaPn=24.614−0.064Ci+53.464Gs+0.020VPD−
2.859Ta+2.736Tl−0.004PAR0.922** 桐花树
Aegiceras corniculatumPn=15.094−0.044Ci+29.849Gs 0.876** 白骨壤
Avicennia marinaPn=20.419−0.063Ci+34.120Gs 0.989** 注:Pn:光合速率;Ci:胞间CO2浓度;Gs:气孔导度;VPD:饱和水汽压差;Ta:气温;Tl:叶温;PAR:光合有效辐射。
下载: 导出CSV
表 4 两个样地中4种红树林树种净日固碳量
Table 4 Net carbon fixation of four mangrove tree species in two sites
样地
Site树种
Tree species净同化量/(mmol·m−2·d−1)
Net assimilation净日固碳量/(g·m−2·d−1)
Net carbon fixation东寨港
Dongzhai Harbor木榄 Bruguiera gymnorhiza 236.00±10.47 8.31±0.37 红海榄 Rhizophora stylosa 370.07±5.48 13.02±0.19 桐花树 Aegiceras corniculatum 192.16±2.61 6.76±0.09 白骨壤 Avicennia marina 472.11±2.67 16.62±0.09 新盈港
Xinying Harbor木榄 Bruguiera gymnorhiza 265.18±0.40 9.33±0.01 红海榄 Rhizophora stylosa 296.75±4.79 10.45±0.17 桐花树 Aegiceras corniculatum 297.31±9.82 10.47±0.35 白骨壤 Avicennia marina 283.46±22.38 9.98±0.79
下载: 导出CSV
表 3 两个样地中4种红树植物净光合速率与其主要影响因子间的相关分析
Table 3 The correlation analysis on the net photosynthetic rate and its affecting factors of four mangrove tree species in two sites
样地
Site树种
Tree species光合特性因子
Photosynthetic characteristic factors环境因子
Environmental factorsCi Gs VPD Tl Ta PAR 东寨港
Dongzhai Harbor area木榄
Bruguiera gymnorhiza0.140** 0.916** 0.437** 0.380** 0.467** 0.589** 红海榄
Rhizophora stylosa0.228 0.935** 0.559** 0.404** 0.495** 0.726** 桐花树
Aegiceras corniculatum−0.622** 0.905* 0.354** 0.290* 0.285* 0.517** 白骨壤
Avicennia marina0.605** 0.008 −0.158 0.519** 0.234 0.390** 新盈港
Xinying Harbor area木榄
Bruguiera gymnorhiza0.498** 0.629** 0.427** 0.429** 0.404** 0.562** 红海榄
Rhizophora stylosa−0.566** 0.321* 0.470** 0.395** 0.357** 0.513** 桐花树
Aegiceras corniculatum0.404** 0.806** −0.086 −0.182 −0.043 0.198 白骨壤
Avicennia marina−0.55** 0.894** −0.46 0.03 0.164 −0.066 注:**表示在0.01级别(双尾),相关性极显著。* 表示在0.05级别(双尾),相关性显著。 Note: ** indicates highly significant correlation at the level of 0.01(two-tailed); * indicates significant correlation at the level of 0.05(two-tailed).
下载: 导出CSV
-
[1] Mahaut L, Fort F, Violle C, et al. Multiple facets of diversity effects on plant productivity: species richness, functional diversity, species identity and intraspecific competition [J]. Functional Ecology, 2020, 34(1): 287−298. https://doi.org/10.1111/1365-2435.13473 doi: 10.1111/1365-2435.13473 [2] Choi C Y, Xiao H, Jia M M, et al. An emerging coastal wetland management dilemma between mangrove expansion and shorebird conservation [J]. Conservation Biology, 2022, 36(5): e13905. https://doi.org/10.1111/cobi.13905 doi: 10.1111/cobi.13905 [3] Wang F M, Liu J H, Qin G M, et al. Coastal blue carbon in China as a nature-based solution toward carbon neutrality [J]. The Innovation, 2023, 4(5): 100481. https://doi.org/10.1016/j.xinn.2023.100481 doi: 10.1016/j.xinn.2023.100481 [4] Zhang J F, Gan S C, Yang P J, et al. A global assessment of mangrove soil organic carbon sources and implications for blue carbon credit [J]. Nature Communications, 2024, 15(1): 8994. https://doi.org/10.1038/s41467-024-53413-z doi: 10.1038/s41467-024-53413-z [5] Couvreur T L P, Dauby G, Blach‐Overgaard A, et al. Tectonics, climate and the diversification of the tropical African terrestrial flora and fauna [J]. Biological Reviews, 2021, 96(1): 16−51. https://doi.org/10.1111/brv.12644 doi: 10.1111/brv.12644 [6] Mcleod E, Chmura G L, Bouillon S, et al. A blueprint for blue carbon: toward an improved understanding of the role of vegetated coastal habitats in sequestering CO2 [J]. Frontiers in Ecology and the Environment, 2011, 9(10): 552−560. https://doi.org/10.1890/110004 doi: 10.1890/110004 [7] Sarun H, Hun H. Carbon sequestration in mangrove ecosystems—a comprehensive review [J]. Journal of Agriculture and Environment, 2026, 3(2): 285−289. (查阅网上资料, 未找到本条文献信息, 请确认) [8] Donato D C, Kauffman J B, Murdiyarso D, et al. Mangroves among the most carbon-rich forests in the tropics [J]. Nature Geoscience, 2011, 4(5): 293−297. https://doi.org/10.1038/ngeo1123 doi: 10.1038/ngeo1123 [9] Adame M F, Cormier N, Taillardat P, et al. Deconstructing the mangrove carbon cycle: gains, transformation, and losses [J]. Ecosphere, 2024, 15(3): e4806. https://doi.org/10.1002/ecs2.4806 doi: 10.1002/ecs2.4806 [10] 方发之, 黎肇家, 桂慧颖. 海南红树林现状调查与研究[J]. 热带林业, 2022, 50(1): 42−49. https://doi.org/10.3969/j.issn.1672-0938.2022.001.009 doi: 10.3969/j.issn.1672-0938.2022.001.009 [11] Xu S J, Lin C X, Qiu P H, et al. Tungsten-and cobalt-dominated heavy metal contamination of mangrove sediments in Shenzhen, China [J]. Marine Pollution Bulletin, 2015, 100(1): 562−566. https://doi.org/10.1016/j.marpolbul.2015.08.031 doi: 10.1016/j.marpolbul.2015.08.031 [12] Sasmito S D, Sillanpää M, Hayes M A, et al. Mangrove blue carbon stocks and dynamics are controlled by hydrogeomorphic settings and land‐use change [J]. Global Change Biology, 2020, 26(5): 3028−3039. https://doi.org/10.1111/gcb.15056 doi: 10.1111/gcb.15056 [13] Ouyang X G, Lee S, Wang W Q. The ‘perfect’ conversion: dramatic increase in CO2 efflux from shellfish ponds and mangrove conversion in China [J]. Sustainability, 2021, 13(23): 13163. https://doi.org/10.3390/su132313163 doi: 10.3390/su132313163 [14] 陈一宁, 陈鹭真. 滨海蓝碳生态系统的碳库间相互作用研究进展及展望[J]. 海洋学研究, 2023, 41(1): 3−13.(查阅网上资料,doi打不开无法确认doi信息是否正确) https://doi.org/10.3969-j.issn.1001-909X.2023.01.001 [15] Blanco-Sacristán J, Johansen K, Elías-Lara M, et al. Quantifying mangrove carbon assimilation rates using UAV imagery [J]. Scientific Reports, 2024, 14(1): 4648. https://doi.org/10.1038/s41598-024-55090-w doi: 10.1038/s41598-024-55090-w [16] Zhu Z, Zhu X D. Increasing midday depression of mangrove photosynthesis with heat and drought stresses [J]. Agricultural and Forest Meteorology, 2025, 362: 110372. https://doi.org/10.1016/j.agrformet.2024.110372 doi: 10.1016/j.agrformet.2024.110372 [17] 刘嘉君, 王志刚, 阎爱华, 等. 12种彩叶树种光合特性及固碳释氧功能[J]. 东北林业大学学报, 2011, 39(9): 23−25. https://doi.org/10.13759/j.cnki.dlxb.2011.09.022 doi: 10.13759/j.cnki.dlxb.2011.09.022 [18] 王丽勉, 秦俊, 高凯, 等. 室内植物的固碳放氧研究[C]//中国园艺学会观赏园艺专业委员会, 张启翔. 2007年中国园艺学会观赏园艺专业委员会年会论文集. 北京: 中国林业出版社, 2007. (查阅网上资料, 未找到对应的页码信息, 请确认) [19] 吴瑞云. 欧美杨杂交种‘中嘉8’净光合速率与若干生态因子的相关分析[J]. 亚热带植物科学, 2007, 36(4): 16−19. https://doi.org/10.3969/j.issn.1009-7791.2007.04.005 doi: 10.3969/j.issn.1009-7791.2007.04.005 [20] 张柳, 詹乔斯, 郭微, 等. 11种红树植物光合作用特性及光合固碳释氧能力研究[J]. 亚热带植物科学, 2023, 52(6): 465−474. https://doi.org/10.3969/j.issn.1009-7791.2023.06.001 doi: 10.3969/j.issn.1009-7791.2023.06.001 [21] Kripa M K, Nivas A H, Lele N, et al. Seasonal dynamics and light use efficiency of major mangrove species over Indian Region [J]. Proceedings of the National Academy of Sciences, India Section B: Biological Sciences, 2020, 90(2): 267−275. https://doi.org/10.1007/s40011-019-01077-x doi: 10.1007/s40011-019-01077-x [22] Meng Y C, Bai J K, Gou R K, et al. Relationships between above-and below-ground carbon stocks in mangrove forests facilitate better estimation of total mangrove blue carbon [J]. Carbon Balance and Management, 2021, 16(1): 8. https://doi.org/10.1186/s13021-021-00172-9 doi: 10.1186/s13021-021-00172-9 [23] 缪绅裕, 李德宁, 邓鸿英, 等. 广州南沙3种红树植物生理生态特性的比较[J]. 广州大学学报(自然科学版), 2011, 10(1): 31−36. https://doi.org/10.3969/j.issn.1671-4229.2011.01.006 doi: 10.3969/j.issn.1671-4229.2011.01.006 [24] 李林锋. 4种湿地植物光合作用特性的比较研究[J]. 西北植物学报, 2008, 28(10): 2094−2102. https://doi.org/10.3321/j.issn:1000-4025.2008.10.026 doi: 10.3321/j.issn:1000-4025.2008.10.026 [25] Cao J J, Chen J, Yang Q P, et al. Leaf hydraulics coordinated with leaf economics and leaf size in mangrove species along a salinity gradient [J]. Plant Diversity, 2023, 45(3): 309−314. https://doi.org/10.1016/j.pld.2022.01.002 doi: 10.1016/j.pld.2022.01.002 [26] Clough B F, Sim R G. Changes in gas exchange characteristics and water use efficiency of mangroves in response to salinity and vapour pressure deficit [J]. Oecologia, 1989, 79(1): 38−44. https://doi.org/10.1007/BF00378237 doi: 10.1007/BF00378237 [27] 吴胜安, 邢彩盈, 朱晶晶. 海南岛气候特征分析[J]. 热带生物学报, 2022, 13(4): 315−323. https://doi.org/10.15886/j.cnki.rdswxb.2022.04.001 doi: 10.15886/j.cnki.rdswxb.2022.04.001 -

 点击查看大图
计量
- 文章访问数: 5
- HTML全文浏览量: 3
- 被引次数: 0
