

-
香蕉枯萎病(Banana Fusarium Wilt)是由尖孢镰刀菌古巴专化型(F. oxysporum f. sp. cubense, Foc)引起的一种毁灭性土传病害。该病原菌可在土壤中长期存活,并通过根系侵染植株,导致维管束褐变坏死,严重时造成植株枯死,对全球香蕉产业造成巨大威胁[1−2]。目前,化学防治因病原菌抗药性增强而效果减弱,单一抗病品种的应用也因病原菌的适应性进化而逐渐失效。因此,亟需开发绿色、可持续的病害防控策略。
近年来,复合微生物菌群因其在调控土壤微生态、拮抗病原菌及诱导植物抗性等方面的多重功能备受关注[3−4],研究表明,复合微生物菌群可以通过竞争定殖、产生抗菌物质、诱导植物防御反应以及促进植物生长等多种途径抑制香蕉枯萎病的发生。例如,解淀粉芽孢杆菌(Bacillus amyloliquefaciens)和绿色木霉菌(Trichoderma viride)的复合应用可诱导植物防御酶活性提升[5]。进一步研究发现,复合微生物菌群能够诱导香蕉植株产生系统抗性,增强其对病原菌的抵御能力[6]。同时复合微生物菌液的施用可显著改变根际土壤的微生物群落组成,增加有益微生物的种类和数量,从而提高微生物群落的多样性和稳定性[7]。例如,研究发现,施用复合菌液后,根际土壤中变形菌门(Proteobacteria)和厚壁菌门(Firmicutes)等有益菌门的相对丰度增加,而病原菌所属的菌门相对丰度降低。此外,添加的复合菌液后,放线菌门(Actinobacteria)和鞘氨醇单胞菌属(Sphingomonas)的富集可显著降低香蕉枯萎病发病率[8]。然而,现有商业化菌剂在实际应用中仍存在诸多局限:一方面,外源引入菌株在复杂田间环境中的定殖能力和稳定性不足;另一方面,不同地区土壤环境差异显著,导致通用型菌剂的防控效果表现出较大的波动性。因此,开发适应特定生态区的新型高效菌具有重要实践意义。
轮作作为一种生态调控措施[9−10],可通过改善土壤理化性质和微生物群落结构来减轻病害发生[11]。香蕉与菠萝轮作模式显示,菠萝根系分泌物通过化感作用或招募拮抗菌群可抑制尖孢镰刀菌活性[12]。因此,从轮作土壤中筛选土著功能菌株并构建复合菌群,可能更适应当地环境,从而展现出更强的防控潜力。相较于商业菌株,土著菌株对环境具有更好的适应性和定殖能力,这为开发高效、稳定的生防制剂提供了新的研究思路。
海南大学热区土壤环境生态实验室前期研究表明,菠萝关键根系分泌物能促进芽孢杆菌、假单胞菌和踝节菌等有益菌的生长,进而抑制香蕉枯萎病病原菌尖孢镰刀菌的生长。同时,在盆栽试验条件下,添加踝节菌能够有效促进香蕉幼苗地上部和地下部的生长,显著降低香蕉幼苗枯萎病的发生率,并显著减少可培养病原菌的数量和相对丰度[13]。目前,芽孢杆菌和假单胞菌以及与踝节菌的组合的促生及防效尚未通过盆栽试验或者田间试验的验证。本研究基于从香蕉-菠萝轮作土壤中分离得到的对香蕉枯萎病病原菌尖孢镰刀菌具有拮抗作用的三种菌株——贝莱斯芽孢杆菌(B. velezensis)B2、荧光假单胞菌(Pseudomonas fluorescens)B8和踝节菌(Talaromyces sp.)B10,分别制备了B2菌液(Bac)、B8菌液(Pse)和B10菌液(Tal)三种单菌液,以及B2-B8的复合菌液(BP)、B2-B10的复合菌液(BT)、B8-B10的复合菌液(PT)、B2-B8-B10的复合菌液(BPT)四种复合菌液,通过盆栽试验与高通量测序技术,系统评估其对香蕉生长、土壤养分及根际微生物群落的影响,以期为香蕉枯萎病的绿色防控提供科学依据。
-
巴西香芽蕉(Musa cavendish AAA)幼苗,购置于中国热带农业科学院儋州院区苗圃基地。
-
土壤采自海南省澄迈县福山镇连作多年香蕉的砖红壤地块。土壤养分含量:有机质17.81 g·kg−l,pH5.04,碱解氮96.60 mg·kg−l,速效钾80.17 mg·kg−l,有效磷为5.21 mg·kg−l。
-
供试菌株为海南大学热区土壤环境生态实验室从香蕉-菠萝轮作土壤中分离筛选获得,包括对香蕉枯萎病病原菌尖孢镰刀菌具有拮抗作用的贝莱斯芽孢杆菌B2、荧光假单胞菌B8和踝节菌B10,并设置与尖孢镰刀菌拮抗效果较差的暹罗芽孢杆菌(B. siamensis)B7作为阴性对照组。
供试病原菌为海南大学热区土壤环境生态实验室与南京农业大学固体有机废弃物资源化利用高技术研究重点实验室合作筛选、分离,得到的尖孢镰刀菌古巴专化型4号生理小种(F. oxysporum f. sp. cubense race4, Foc4)[14−15],已证实该病原菌具有较强的致病力。
-
分别将贝莱斯芽孢杆菌B2、荧光假单胞菌B8和暹罗芽孢杆菌B7接种于经高压灭菌的液体LB培养基中,置于170 r·min−l,温度30℃的摇床上振荡培养48 h,使发酵液中菌体浓度≥1×10⁸ CFU·mL−l,分别将发酵液
4000 rpm离心10 min,弃上清液后用发酵液等体积的无菌水重悬,并将浓度调节至1×10⁷ CFU·mL−l,即得到贝莱斯芽孢杆菌B2菌液(Bac菌液)、荧光假单胞菌B8菌液(Pse菌液)和暹罗芽孢杆菌B7菌液(B7菌液);将踝节菌B10菌丝块接种于经高压灭菌的PDB培养基中,置于170 r·min−l,温度28℃的摇床上振荡培养5 d,使发酵液中孢子浓度≥1×10⁷ spores·mL−l,将发酵液10000 rpm离心10 min,弃上清液后用发酵液等体积的无菌水重悬,即得到踝节菌B10孢子悬液(Tal孢子悬液)。将Bac菌液和Pse菌液等体积(1∶1)混合得BP菌液,Bac菌液和Tal孢子悬液等体积(1∶1)混合得BT菌液,Pse菌液和Tal菌液等体积(1∶1)混合得PT菌液,Bac菌液、Pse菌液和Tal菌液等体积(1∶1∶1)混合得BPT菌液。 -
将尖孢镰刀菌菌丝块接种于PDA固体平板上,置于28 ℃恒温培养箱培养至产孢,用无菌水将孢子用灭菌涂布棒来回刮洗,然后用双层纱布过滤掉菌丝即可获得尖孢镰刀菌孢子悬液,使用血球计数板测定并调节孢子浓度为1×10⁶ spores·mL−l,存于4 ℃冰箱备用。
-
B2、B8与B10之间的亲和性测定:使用直径0.5 cm的打孔器打取培养5 d的踝节菌B10菌饼,接种在PDA固体培养基中心,接着在距菌饼中心对称两侧2 cm处分别滴加培养24 h的贝莱斯芽孢杆菌B2发酵液10 μL,重复3块平板,28℃培养7 d后,观察贝莱斯芽孢杆菌B2与踝节菌B10是否产生拮抗圈,若无拮抗圈则证明两菌无拮抗,反之则有拮抗,只接种踝节菌B10的为对照,荧光假单胞菌B8与踝节菌B10亲和性测定方法同上[16];B2与B8之间的亲和性测定:将培养24 h的贝莱斯芽孢杆菌B2发酵液与荧光假单胞菌B8发酵液用灭菌的接种环按十字交叉划线在LB固体培养基中,每个培养基交叉划线三组,重复3块平板,30 ℃培养3 d后,观察两菌十字交界处是否有菌生长,若有菌生长则证明两菌无拮抗,反之则有拮抗。
-
盆栽试验于2024年10—12月在海南大学海甸校区农科基地大棚内进行,共设9个处理:处理1(CK):接种尖孢镰刀菌和灌施清水;处理2(B7):接种尖孢镰刀菌和灌施阴性对照B7菌液;处理3(Bac):接种病原菌和灌施Bac菌液;处理4(Pse):接种病原菌和灌施Pse菌液;处理5(Tal):接种尖孢镰刀菌和灌施Tal菌液;处理6(BP):接种尖孢镰刀菌和灌施BP菌液;处理7(BT):接种尖孢镰刀菌和灌施BT菌液;处理8(PT):接种尖孢镰刀菌和灌施PT菌液;处理9(BPT):接种尖孢镰刀菌和灌施BPT菌液。每个处理3个重复,每个重复10盆,每10盆分为1个区组,每个盆装1 kg土,选取长势均匀无病虫害的香蕉幼苗移栽,每个花盆移栽1株。
接种病原菌和灌施菌液方式:待香蕉苗移栽缓苗一周后,向各处理盆中接种病原菌孢子悬液,使土壤中含病原菌浓度达105 spores·g−1;接种病原菌3 d后,向各处理根部灌施对应的菌液和孢子悬液,每株香蕉用1 mL菌液兑清水100 mL施用,CK处理灌施等量的清水,之后每隔15 d灌施一次,总共灌施4次。
-
香蕉移栽60 d后,测量各处理植株株高、叶片数、最大叶长、最大叶宽和地上部鲜重,统计并处理发病率。株高、最大叶长、最大叶宽和地上部鲜重使用钢卷尺测量;地上部鲜重使用百分之一天平测量;叶片数采用人工计数;当植株出现叶片黄化、假茎开裂并呈褐色开裂、植株新叶较小且叶片萎蔫等典型症状时[12,17],均统计为发病植株并计算发病率,各区组的发病率(%)=(发病株数/总株数)×100%,3个区组的平均发病率即为该处理香蕉枯萎病的发病率。防控率(%)=(对照发病率−处理发病率)/对照发病率×100%[18−19]。
-
测定完香蕉生物量和发病率统计后进行土壤样品采集,每个处理随机选取6株香蕉植株连根带土整株取出,抖落附着在根系上的土体土壤,混合成为1个独立样品,同时对应的根系也混合成为1个独立样品,每个处理收集5个土壤独立样品和对应的5个根系独立样品,随后将每个独立根系样品用剪刀剪短至5 cm左右小段,混合均匀,放置于装有250 mL灭菌水的500 mL三角瓶中并置于170 r·min−l摇床上振荡30 min,超声清洗20 min后用灭菌镊子取出香蕉根系,将土悬液
10000 rpm离心8 min后即得到根际土壤,保存于−80℃用于后续土壤DNA的提取[20],土体土壤自然风干后用于后续土壤养分含量的测定。 -
土壤pH采用玻璃电极法(土水比1∶2.5)测定,土壤有机质通过重铬酸钾氧化法测定,土壤中有效磷采用钼锑抗比色法测定,碱解氮采用碱解扩散法测定,速效钾采用醋酸铵浸提风干土壤,火焰分光光度计测定[21]。
-
称取0.5 g根际土壤新鲜样品,按ALFA Soil DNA Exteaction Kit操作指南提取DNA,并将提取的DNA样品运送上海美吉生物有限公司高通量测序,获得的原始数据后,首先使用Cutadapt软件,将raw data序列剪切掉引物序列。然后使用DADA2将上一步合格的双端raw data按照默认参数进行质量过滤,降噪,拼接及去嵌合体等质控分析。
-
使用SPSS v24.0软件开展方差分析(ANOVA),对多组数据间差异予以检验,将差异显著性水平确定为P<0.05,并借助Tukey多重比较方法,对不同处理进行组间的显著性差异检验。在R v4.3.0环境下,运用“vegan”程序包,一方面计算微生物群落的Alpha多样性指数,另一方面依据Bray-Curtis距离进行主坐标分析(PCoA),同时,同样依托“vegan”包,开展置换多元方差分析(PERMANOVA)。
-
结果如图1所示,贝莱斯芽孢杆菌B2,荧光假单胞菌B8均与踝节菌B10未产生拮抗圈,且接种过贝莱斯芽孢杆菌B2,荧光假单胞菌B8中的踝节菌B10与对照组只接种踝节菌B10生长情况无明显差异。贝莱斯芽孢杆菌B2与荧光假单胞菌B8两菌十字交界处均有菌落生长。可以得出,贝莱斯芽孢杆菌B2,荧光假单胞菌B8与踝节菌B10三个菌株之间均无拮抗,说明三个菌株之间均有较好的亲和性。
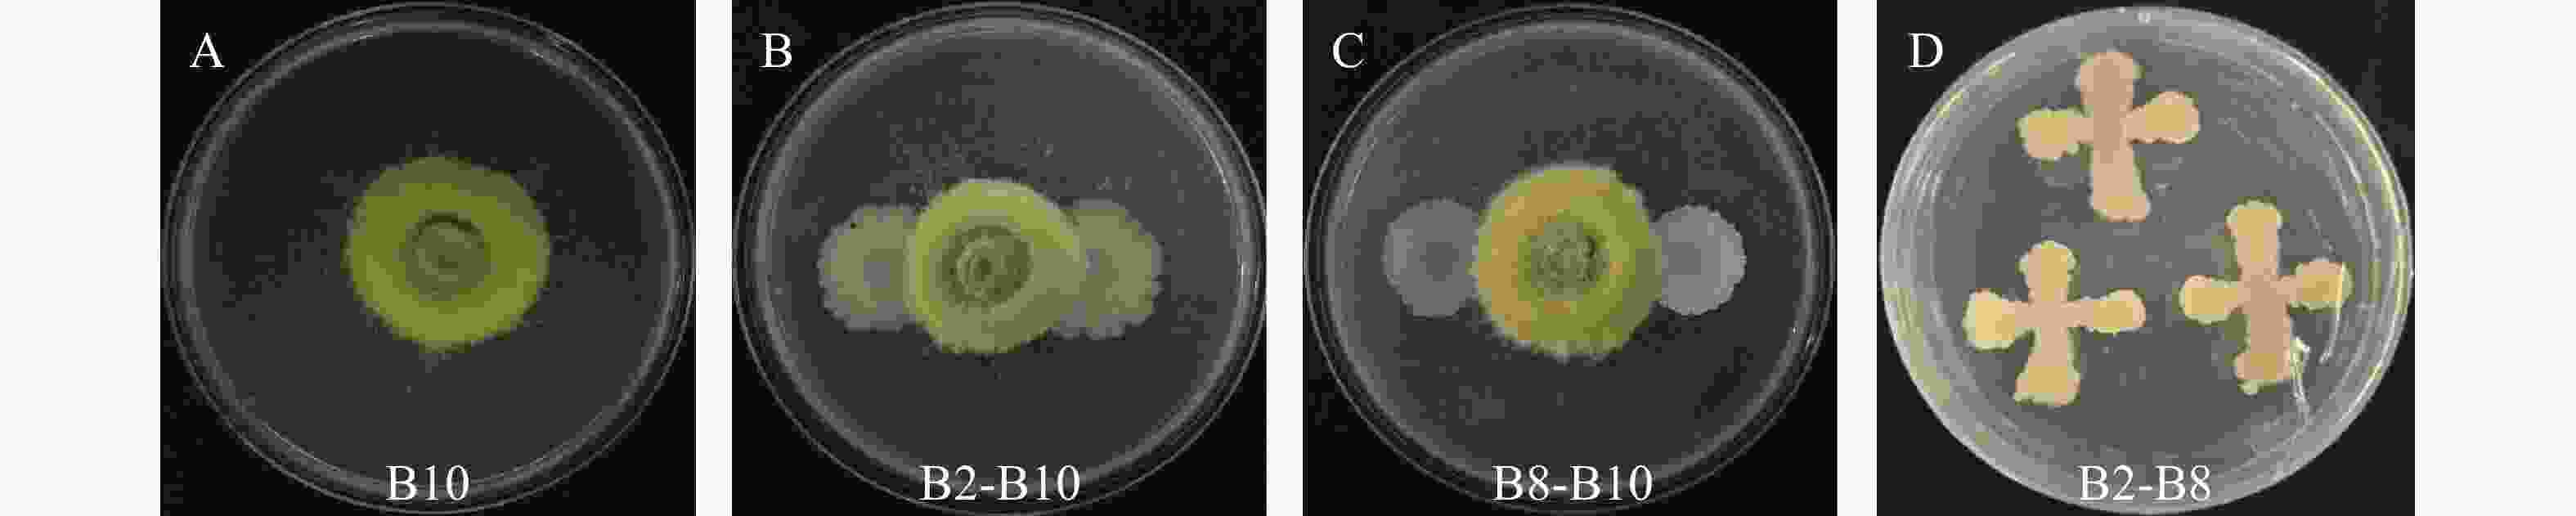
图 1 三株菌之间的亲和性测定
Figure 1. Determination of affinity among three strains
-
如表1所示,与CK相比,Bac,Pse,Tal和BT处理显著增加了土壤有机质的含量(P<0.05),其中,Bac处理增加了18.83%的土壤有机质含量,显著高于其他处理,而BPT处理显著降低了土壤的有机质含量(P<0.05)。与CK相比,所有添加菌液的处理都显著增加了土壤的pH值(P<0.05),其中BT处理对土壤pH的提升效果最显著。与CK相比,BT(83.53 mg·kg−l)处理显著增加土壤碱解氮含量(P<0.05),而PT处理组的碱解氮含量最低,仅为72.8 mg·kg−l。CK相比,BT、PT、BP、Bac、Tal和Pse处理的有效磷含量显著提高,BT处理达到最高值6.56 mg·kg−l,B7处理的有效磷含量最低(P<0.05),为3.62 mg·kg−l。与CK相比,Bac和B7处理显著降低了土壤的速效钾含量(P<0.05)。
表 1 不同处理香蕉的土壤养分含量
Table 1. Nutrient content in banana plant soil under different treatments
处理
Treatment有机质/(g·kg−l)
Organic matterpH 碱解氮/(mg·kg−l)
Ammonium nitrogen有效磷/(mg·kg−1)
Available phosphorus速效钾/(mg·kg−1)
Available potassiumBac 15.78±0.07a 5.41±0.01b 77.47±4.50ab 5.86±0.63ab 48.20±0.92b Pse 14.02±0.08c 5.35±0.02cd 81.20±1.40ab 5.91±1.30ab 41.81±0.92ab Tal 15.03±0.15b 5.36±0.02c 79.33±2.14ab 6.19±0.29ab 38.62±0.92ab B7 13.74±0.43cd 5.27±0.02f 79.80±1.40ab 3.62±1.01c 32.22±0.92c BP 13.27±0.07d 5.31±0.01e 81.20±1.40ab 6.38±0.14a 40.21±0.92ab PT 13.48±0.4d 5.31±0.01e 72.80±11.11b 5.77±0.82ab 38.62±2.44ab BT 15.14±0.55b 5.44±0.02a 83.53±4.28a 6.56±0.35a 41.28±1.60ab BPT 12.70±0.09e 5.32±0.01de 80.73±2.91ab 4.84±0.37bc 41.28±1.60ab CK 13.28±0.08d 5.23±0.02g 76.07±2.91ab 4.18±0.72c 64.72±7.55a 注:不同小写字母表示差异显著(P<0.05,Tukey多重比较检验)。下同。 Note: Different lowercase letters indicate significant difference (P < 0.05, Tukey's test). Similarly hereinafter. -
如表2所示,与对照CK相比,BT处理表现出促生优势:其叶片数(4.25)较CK(3.26)显著提升30.4%,株高达22.23 cm(较CK增幅12.7%),并显著优化叶片形态——最大叶宽(6.16 cm)与叶长(14.68 cm)分别较CK增加16.9%和11.3%。尤为突出的是,BT处理植株地上部鲜重(10.71 g)较CK(4.95 g)增加116.4%(P<0.05),显著高于其他处理。复合菌群中BP处理对叶片数(3.97)亦有显著提升(P<0.05),PT处理则促进叶长发育(14.14 cm),但二者的促生效果低于BT处理。值得注意的是,BPT处理在株高(20.76 cm)与地上部鲜重(7.24 g)指标上均未显现协同增益,表明菌株互作存在配比阈值效应。
表 2 不同处理对香蕉生长特性的影响
Table 2. Effect of different treatments on the growth of banana plants in the field
处理
Treatment叶片数
Leaf number株高/cm
Plant height最大叶宽/cm
Maximum leaf width最大叶长/cm
Maximum leaf length地上部鲜重/g
Shoot Fresh weightBac 3.62±0.86b 20.35±2.71bc 5.49±0.65c 13.71±1.11c 8.84±0.45ab Pse 3.77±0.94ab 20.43±2.41bc 5.60±0.65bc 13.73±1.21bc 7.96±1.04c Tal 3.75±1.11b 21.66±3.07b 5.65±0.62bc 13.97±0.78b 8.87±1.33bc B7 3.52±0.81c 20.27±1.59c 5.35±0.29d 13.47±0.95c 7.00±0.47c BP 3.97±0.76a 20.46±2.54bc 5.67±0.50b 14.02±1.27b 8.83±1.43bc PT 3.79±0.82ab 20.46±2.56bc 5.70±0.39ab 14.14±1.05b 8.91±1.54b BT 4.25±0.68a 22.23±2.75a 6.16±0.70a 14.68±1.5a 10.71±1.33a BPT 3.92±0.93b 20.76±1.56bc 5.56±0.54c 13.64±1.03c 7.24±0.56c CK 3.26±1.13c 19.73±2.14c 5.27±0.75d 13.19±1.54c 4.95±1.15d -
如表3所示,各处理菌液的添加降低了香蕉枯萎病的发病率,提高了防控率。与CK发病率63.33%相比,BT处理、PT处理、BP处理、Tal处理、Bac处理、Pse处理均显著降低了发病率,其中,BT处理发病率最低,发病率仅为13.33%,显著低于(除PT处理)其他处理(P<0.05)。BT处理与PT处理的防控率高达78.95%和73.68%且显著优于BPT处理(P<0.05),BPT处理防控率最低,仅为31.58%,表明此处理菌群密度过大及配比阈值效应显著降低防控率,BT处理通过贝莱斯芽孢杆菌与踝节菌的协同作用实现高效病害防治。
表 3 不同处理对香蕉发病率及防控率的影响
Table 3. Effects of different treatments on banana disease incidence and Biocontrol effect
处理
Treatment发病率/%
Disease incidence防控率/%
Biocontrol effectBT 13.33±11.55c 78.95±5.88b PT 16.67±5.77bc 73.68±2.94b BP 23.33±15.28b 63.16±7.69ab Tal 26.67±11.55b 57.89±5.88ab Bac 33.33±15.28b 47.37±7.69ab Pse 33.33±5.77b 47.37±2.94ab BPT 43.33±15.28ab 31.58±7.69a B7 46.67±30.55ab – CK 63.33±20.82a – -
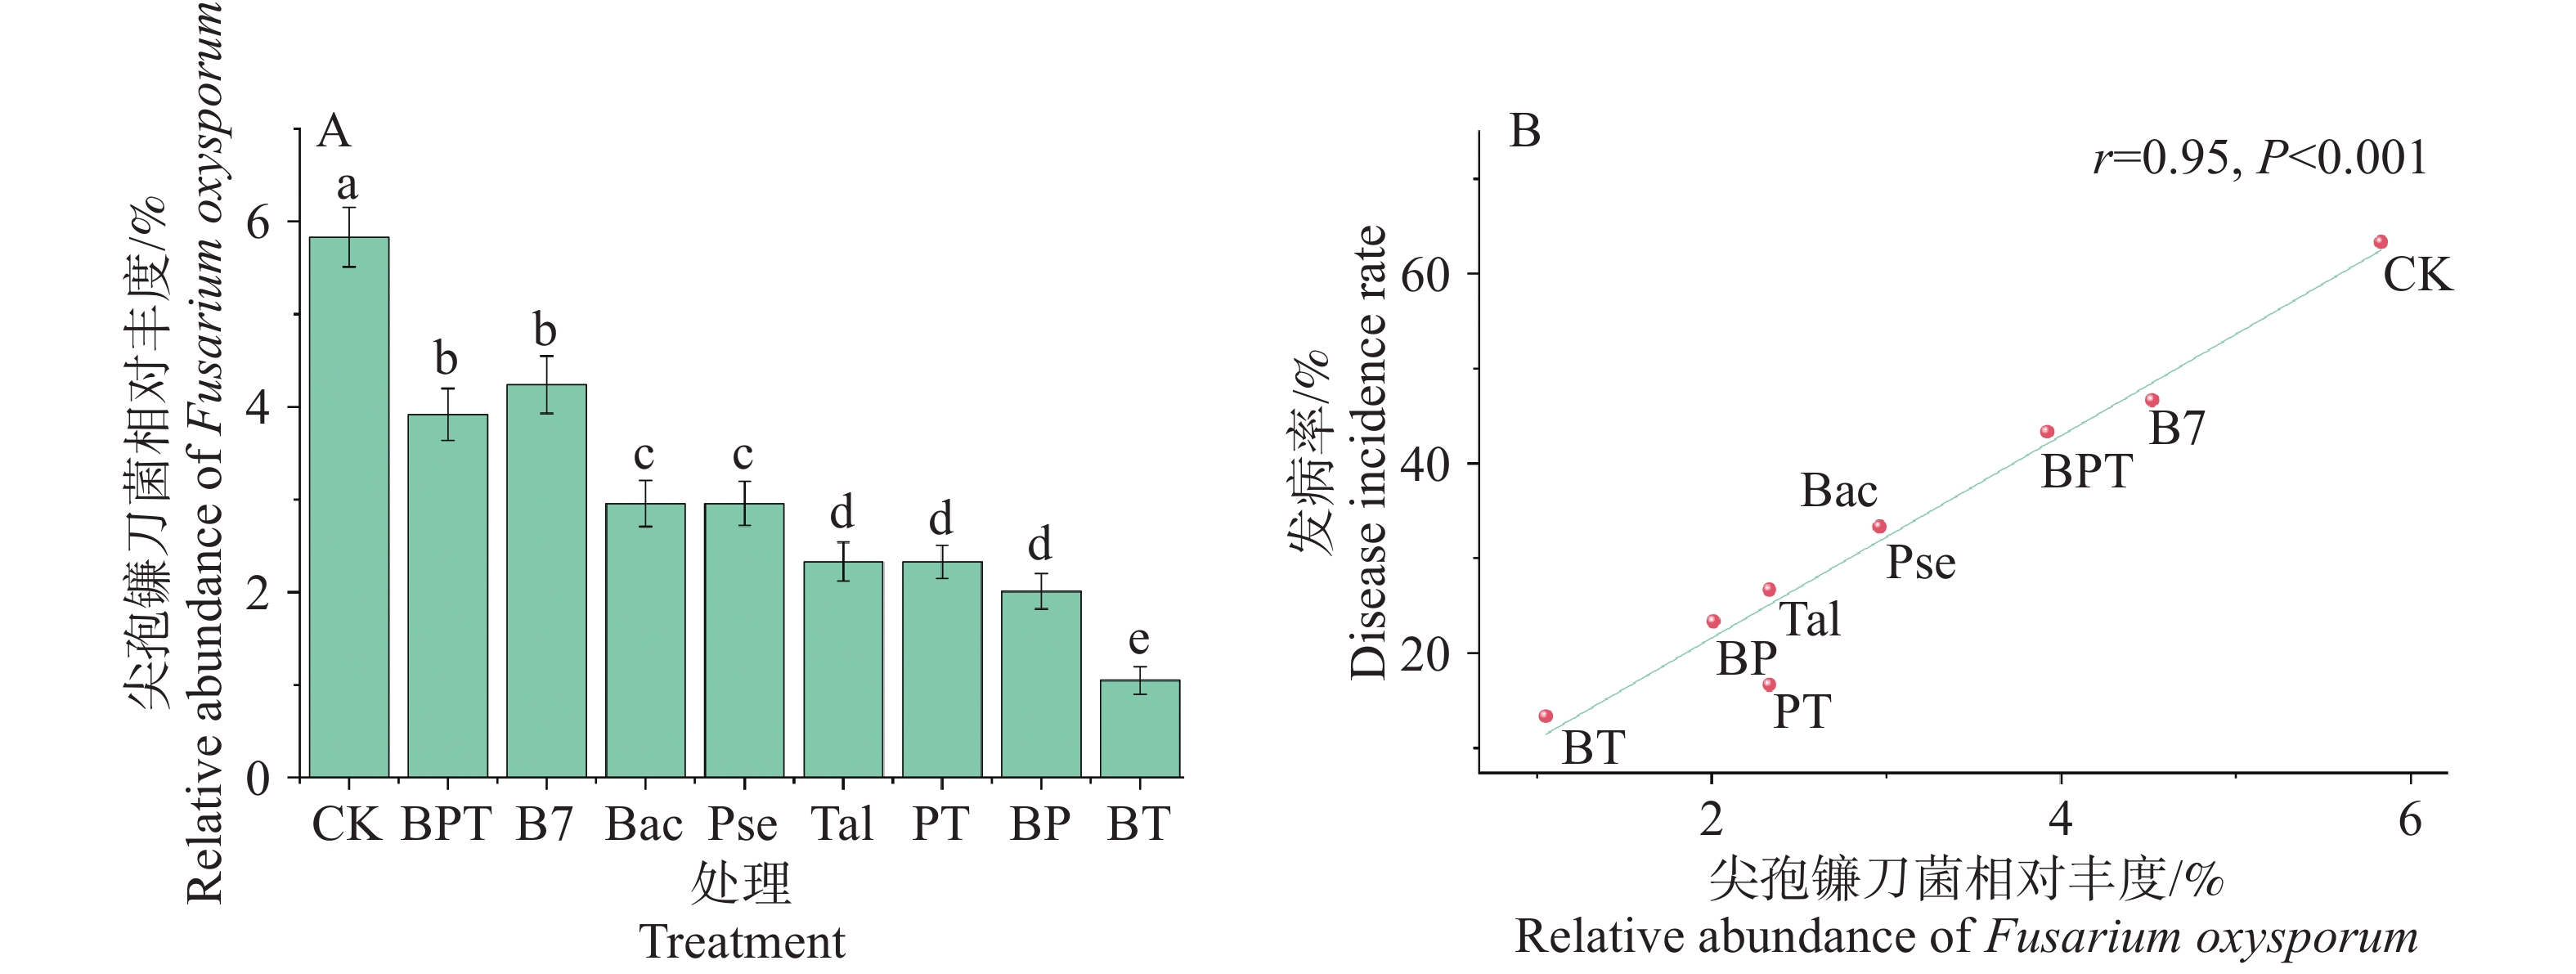
如图2A、B所示,通过高通量测序分析得出,不同处理对香蕉根际土壤中尖孢镰刀菌相对丰度的影响存在显著差异(F=32.17,P<0.001)。如图所示,CK的尖孢镰刀菌相对丰度高达5.83%,显著高于其他处理,这与盆栽试验CK中63.33%的高发病率相对应。BT处理展现出优异的对尖孢镰刀菌的抑制能力,其相对丰度降至1.05%,较CK降低82.0%,直接对应盆栽试验中13.33%的最低发病率。值得注意的是,BPT处理(3.92%)虽为B2-B8-B10复合菌群,但尖孢镰刀菌相对丰度显著高于BT处理,与盆栽试验43.33%的较高发病率一致,暗示菌株互作不同菌株间可能存在营养竞争,加速了有机质的矿化分解过程。单菌液处理中,Bac和Pse处理尖孢镰刀菌相对丰度中等(2.96%),而Tal和BP组相对较低(2.33%~2.01%)。病原菌相对丰度与发病率呈显著正相关(r=0.95,P<0.001),表明尖孢镰刀菌种群密度是病害发生的关键驱动因子。
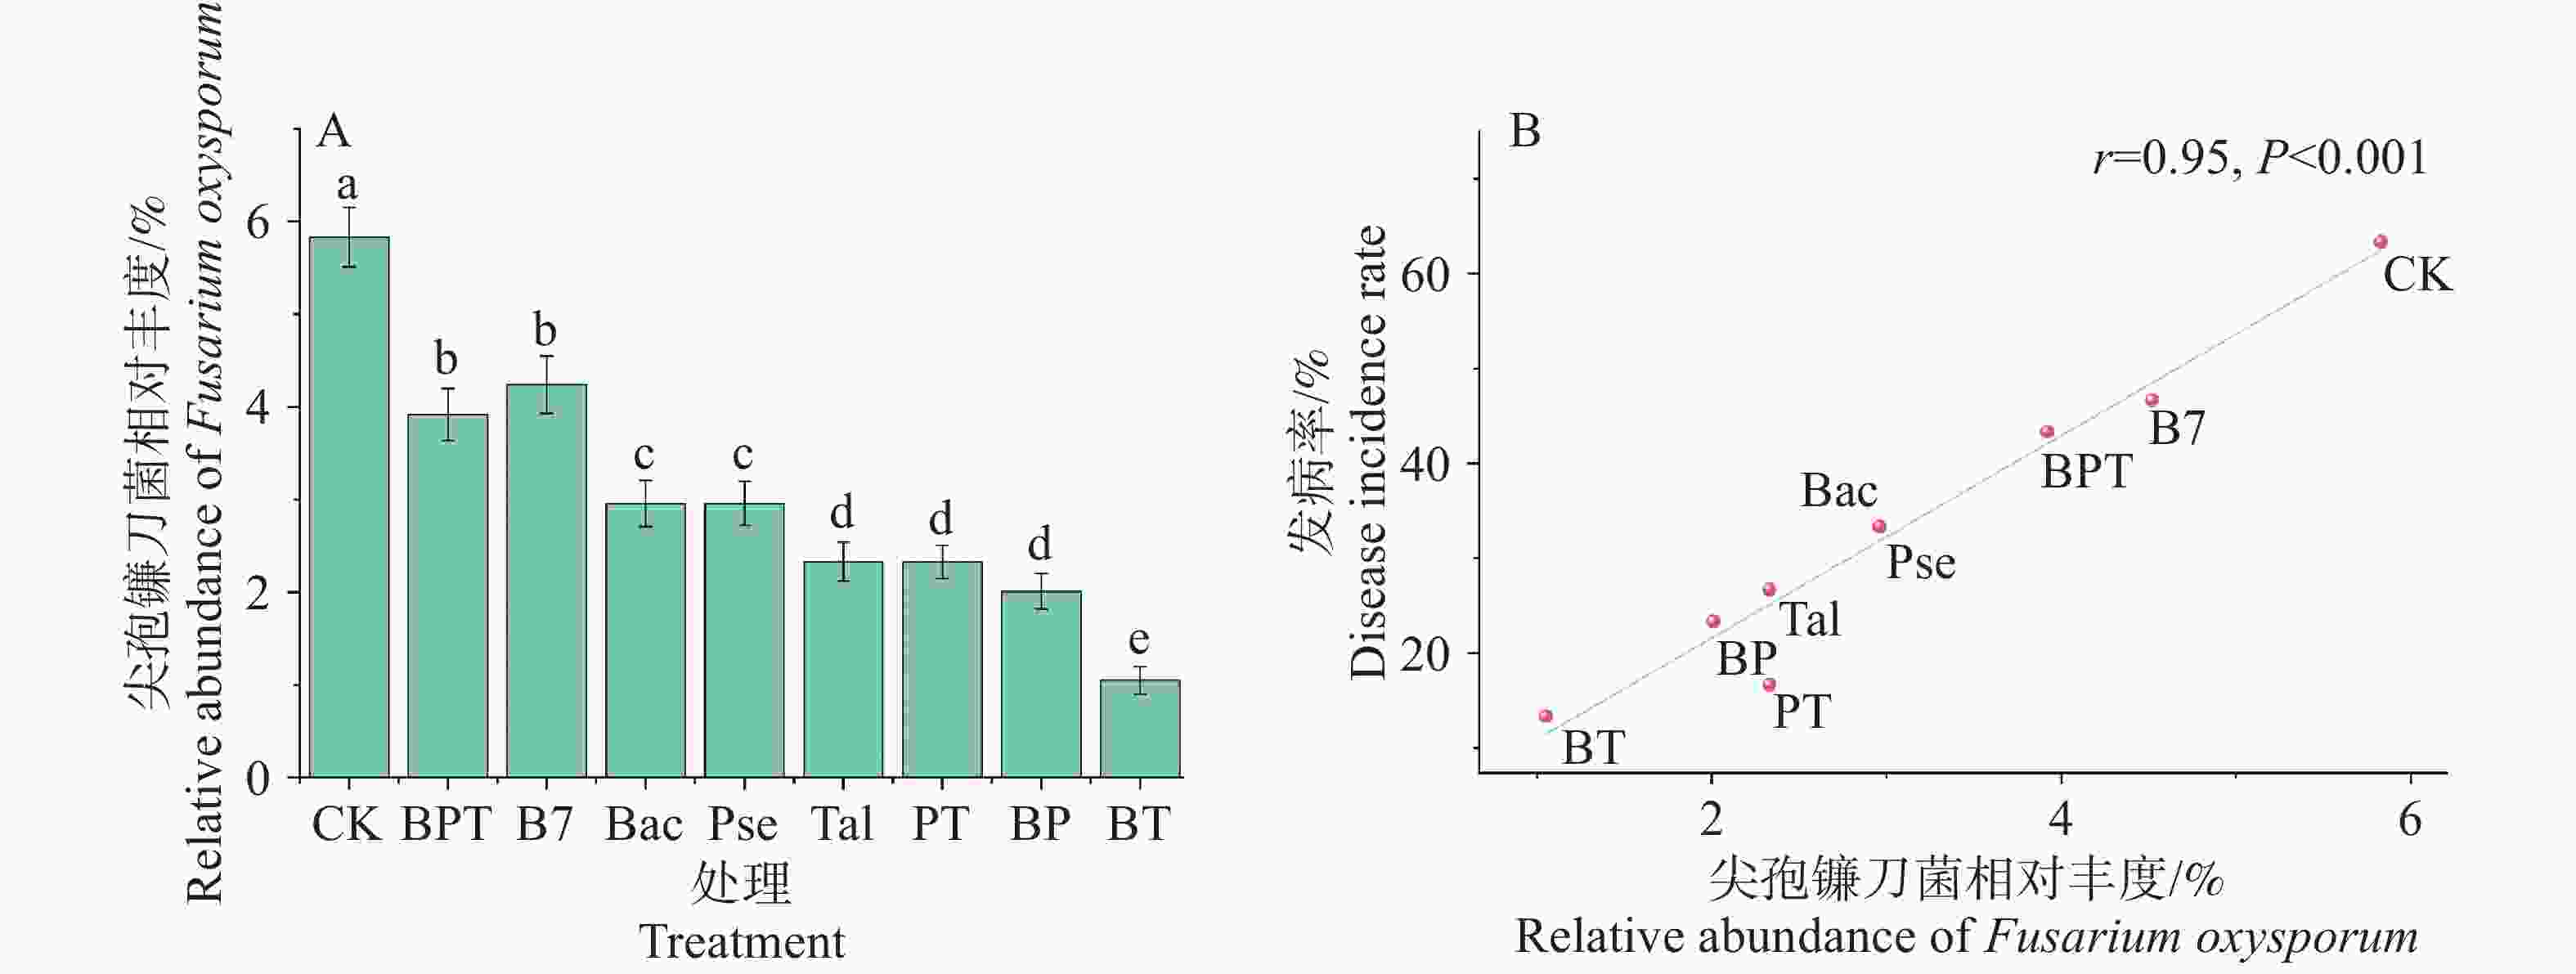
图 2 不同处理的尖孢镰刀菌相对丰度(A)和尖孢镰刀菌与发病率的相关性(B)
Figure 2. Relative abundance of Fusarium oxysporum under different treatments(A)and correlation between Fusarium oxysporum abundance and disease incidence(B)
-
如表4所示,与CK相比,PT,Bac和Pse显著降低了ACE指数和Chao1指数(P<0.05),其中BP处理的ACE指数和Chao1指数是所有处理中最高的。与CK相比,Bac、Pse、Tal、B7、BP、PT和BT处理显著降低了香农指数(Shannon,P<0.05),而Bac处理的辛普森指数(Simpson)是所有处理中最高的。
表 4 细菌群落Alpha多样性指数统计
Table 4. Alpha diversity index statistics of the bacterial communities
处理
TreatmentACE指数
ACE indexChao1指数
Chao1 index香农指数
Shannon index辛普森指数
Simpson indexCK 3656.90 ±158.52a3661.05 ±162.19ab9.43±0.05a 0.0045 ±0.0003cBPT 3636.26 ±30.31ab3635.20 ±67.84ab9.39±0.07ab 0.0048 ±0.0003cBT 3695.28 ±110.04a3701.63 ±141.76a9.32±0.05bc 0.0048 ±0.0002cPT 3470.69 ±78.05bc3476.38 ±82.81bc9.25±0.11cd 0.0053 ±0.0006bcBP 3709.70 ±126.86a3708.90 ±138.75a9.22±0.02d 0.0055 ±0.0003bcB7 3601.83 ±170.53ab3608.19 ±177.04ab9.19±0.04de 0.0058 ±0.0007bcTal 3621.10 ±89.84ab3619.34 ±104.39ab9.12±0.10ef 0.0060 ±0.0008bcPse 3347.59 ±123.51cd3348.64 ±119.31cd9.09±0.05f 0.0064 ±0.0005bBac 3268.14 ±160.58d3265.47 ±140.48d8.73±0.07g 0.0117 ±0.0026a -
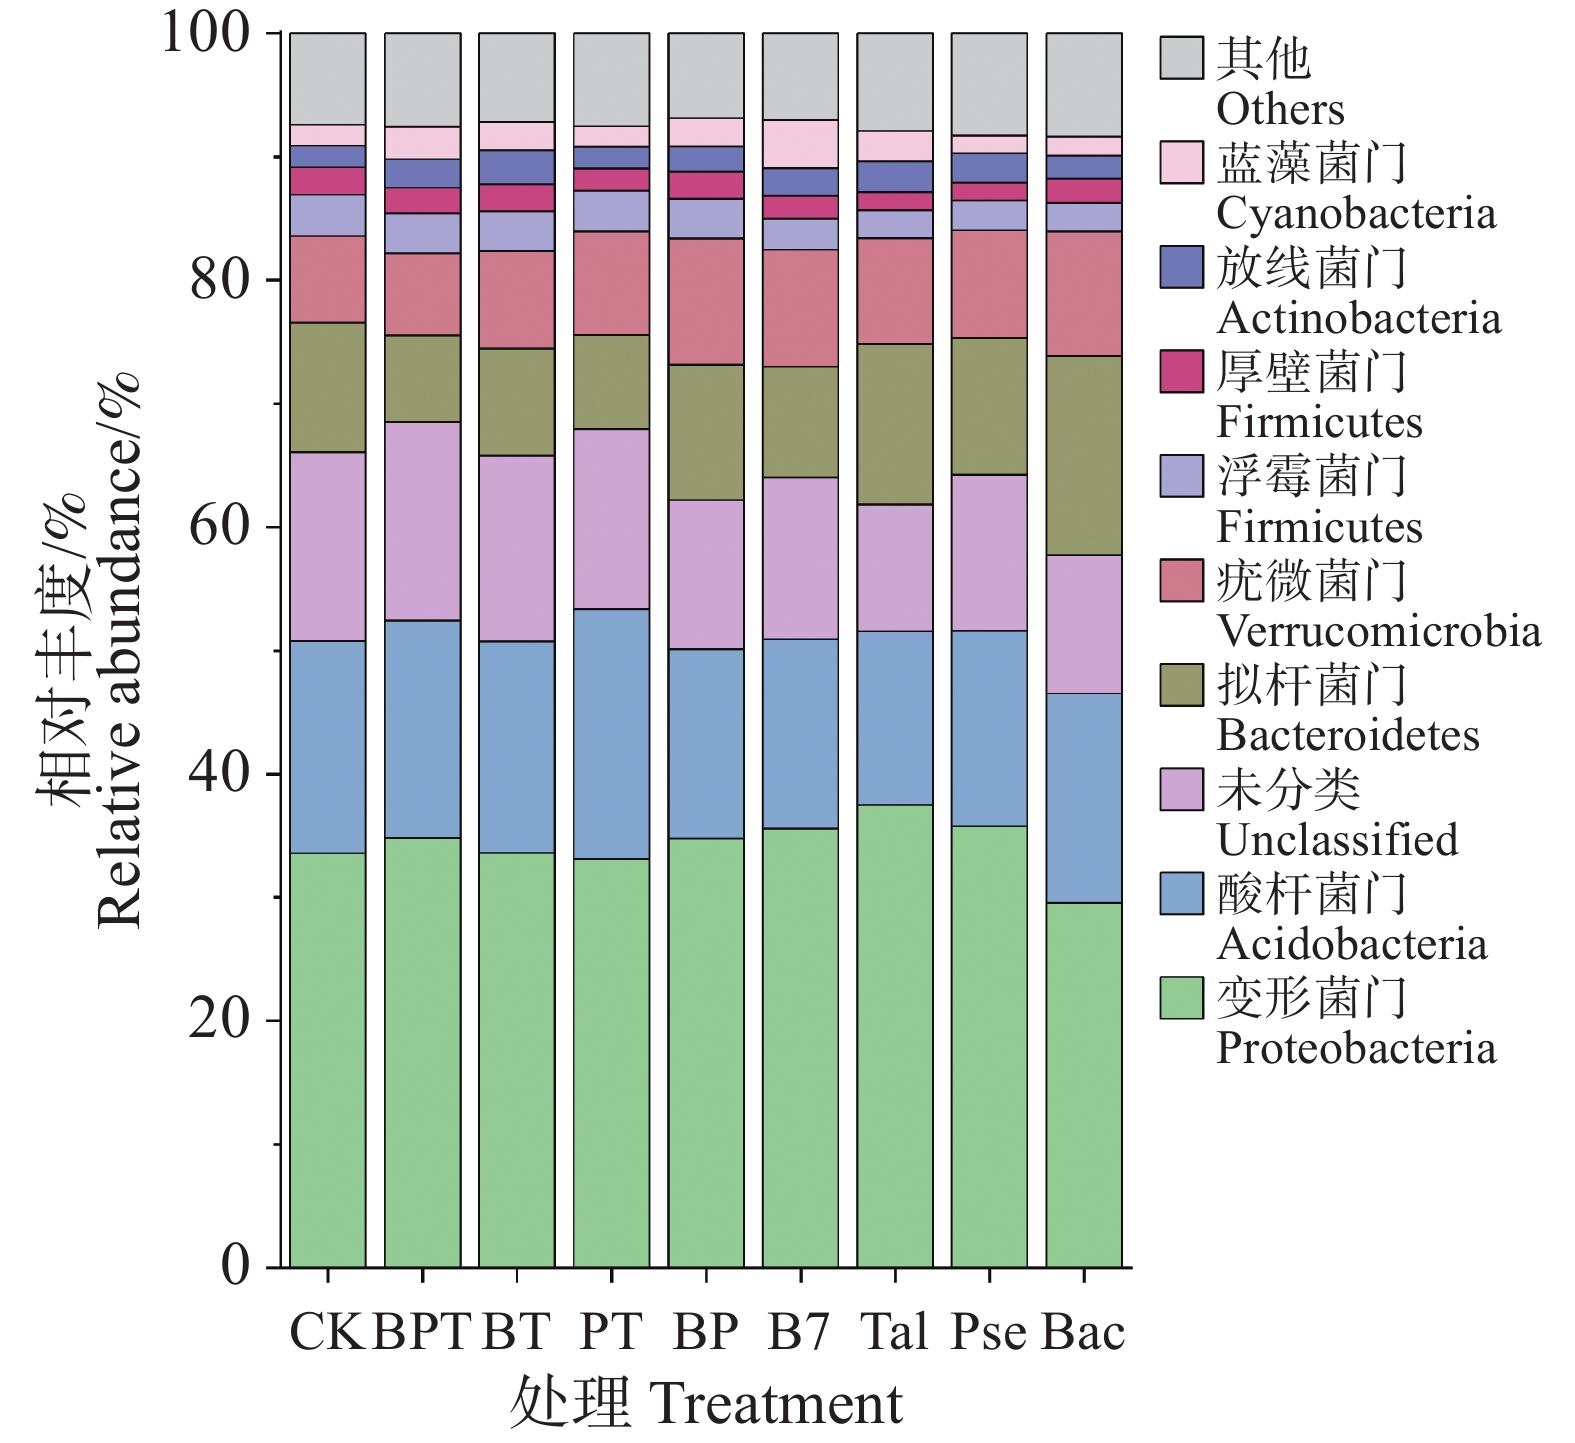
如图3所示,在门水平上分析细菌群落组成,其中优势微生物为:变形菌门(Proteobacteria)、酸杆菌门(Acidobacteriota)、拟杆菌门(Bacteroidota)和疣微菌门(Verrucomicrobia),丰度分别为29.51%~37.41%,14.09%~20.26%,6.93%~16.14%和7.02%~10.08%,与CK相比,Tal和Bac显著增加了拟杆菌门的相对丰度(P<0.05),Pse、Tal和BT显著增加了放线菌门(Actinobacteriota)的相对丰度,其中BT处理放线菌门的相对丰度增加了54.61%。
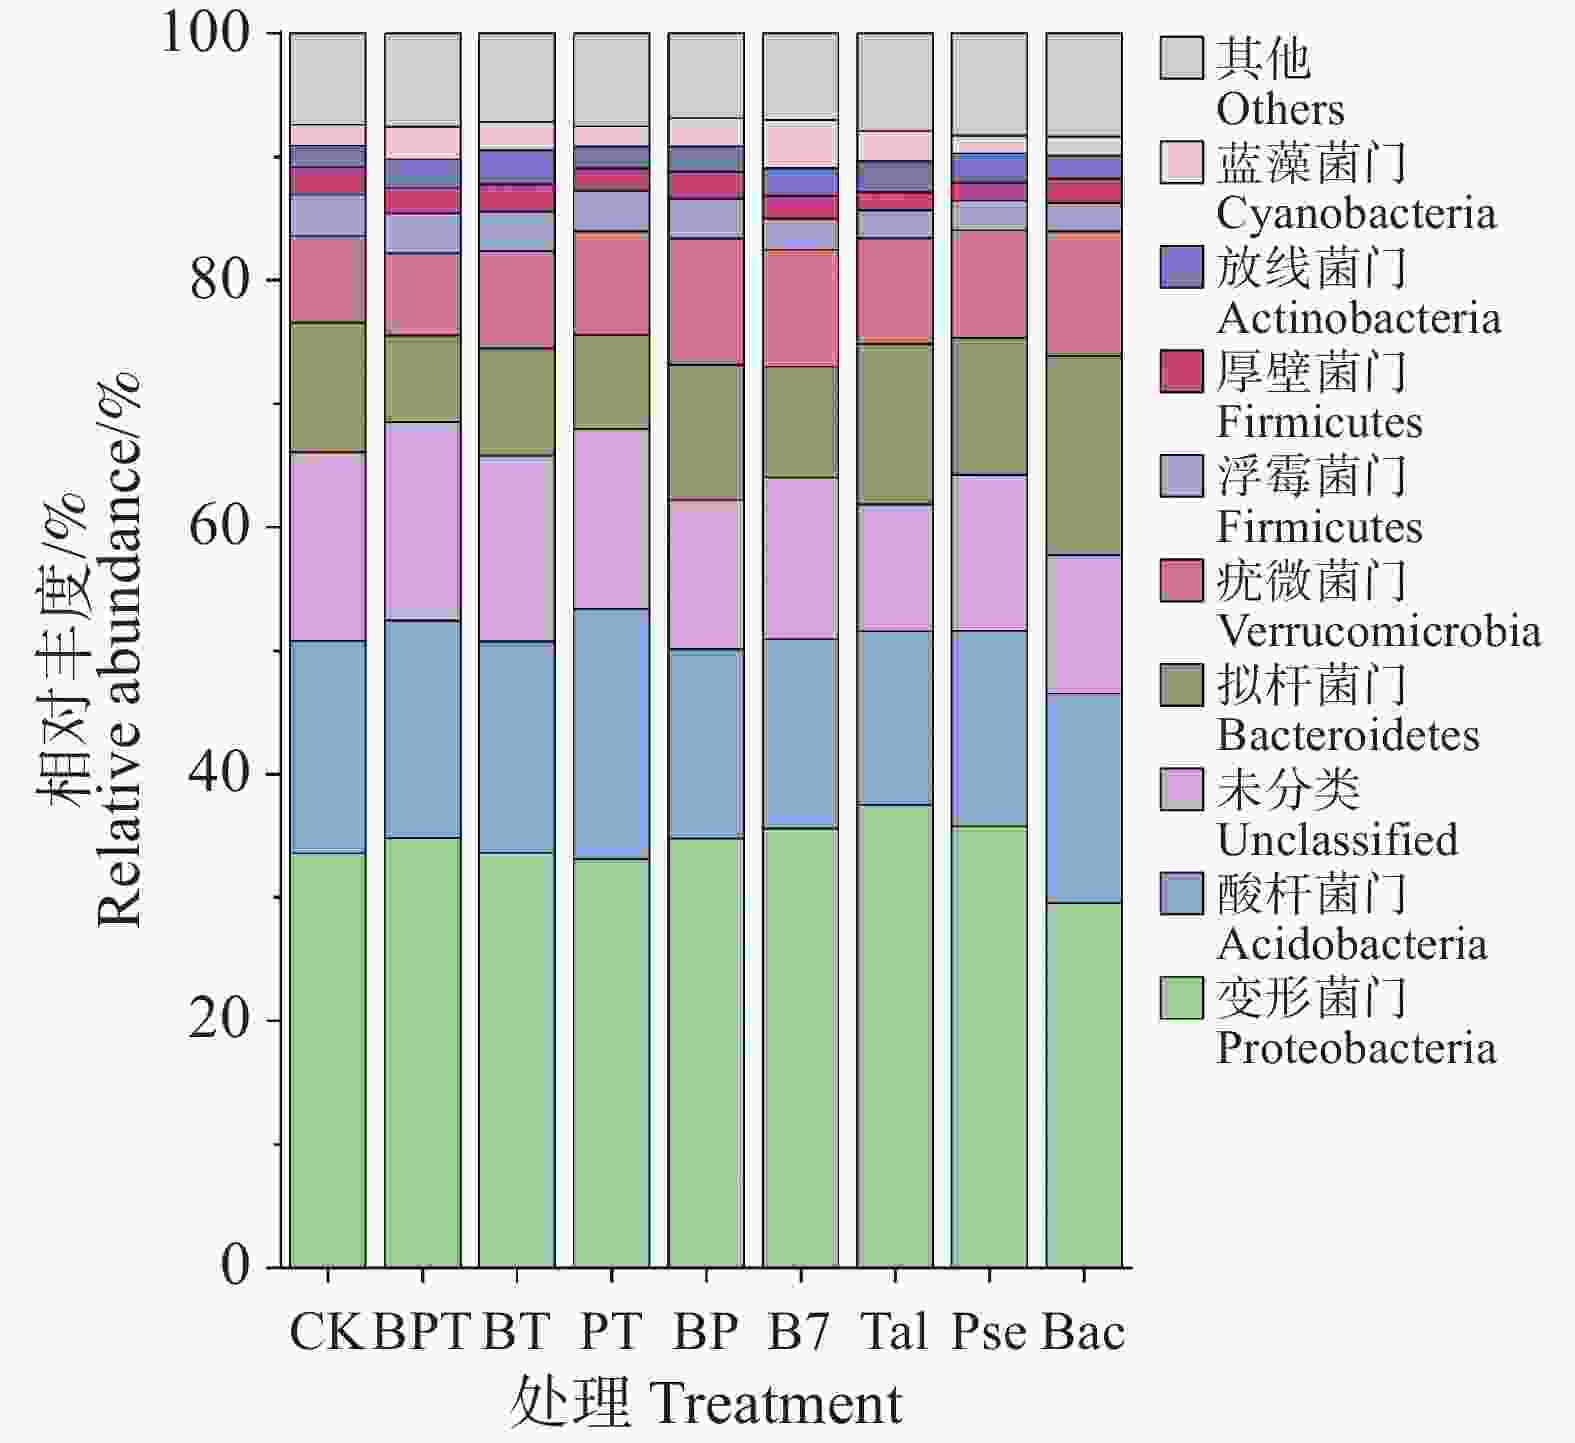
图 3 不同处理下土壤中细菌在门水平的相对丰度
Figure 3. Relative abundance of bacterial phyla in soil under different treatments
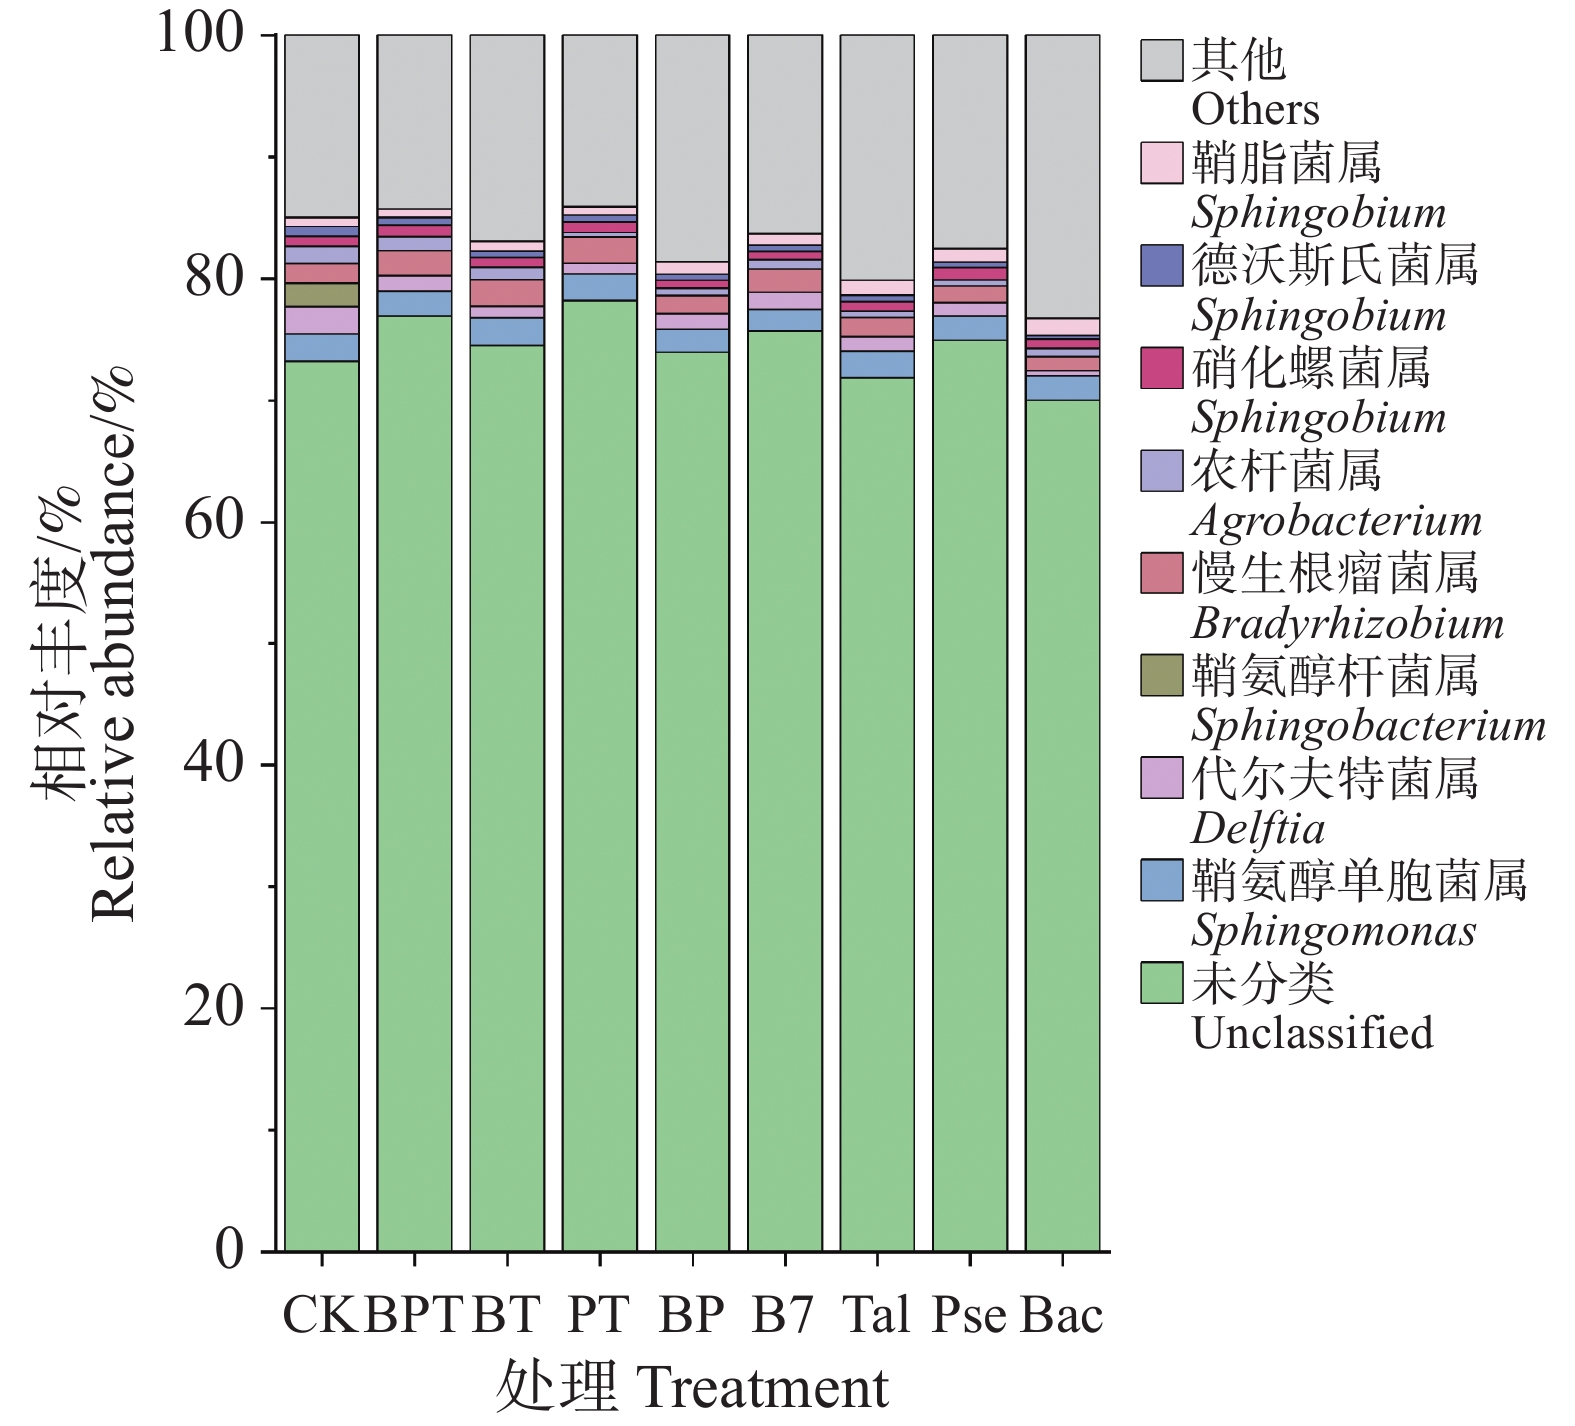
如图4所示,进一步对各处理样品在属水平的相对丰度研究,结果表明,鞘氨醇单胞菌属(Sphingomonas)和慢生根瘤菌属(Bradyrhizobium)是所有处理中的共有优势属,丰度分别为1.78%~2.27%和1.17%~2.18%,与CK相比,BT和PT处理显著增加了慢生根瘤菌属的相对丰度(P<0.05),BT和PT处理慢生根瘤菌属的相对丰度分别是CK的1.35倍和1.33倍,与CK相比,所有添加菌液的处理都显著降低了代尔夫特菌属(Delftia)和鞘氨醇杆菌属(Sphingobacterium)的相对丰度(P<0.05)。
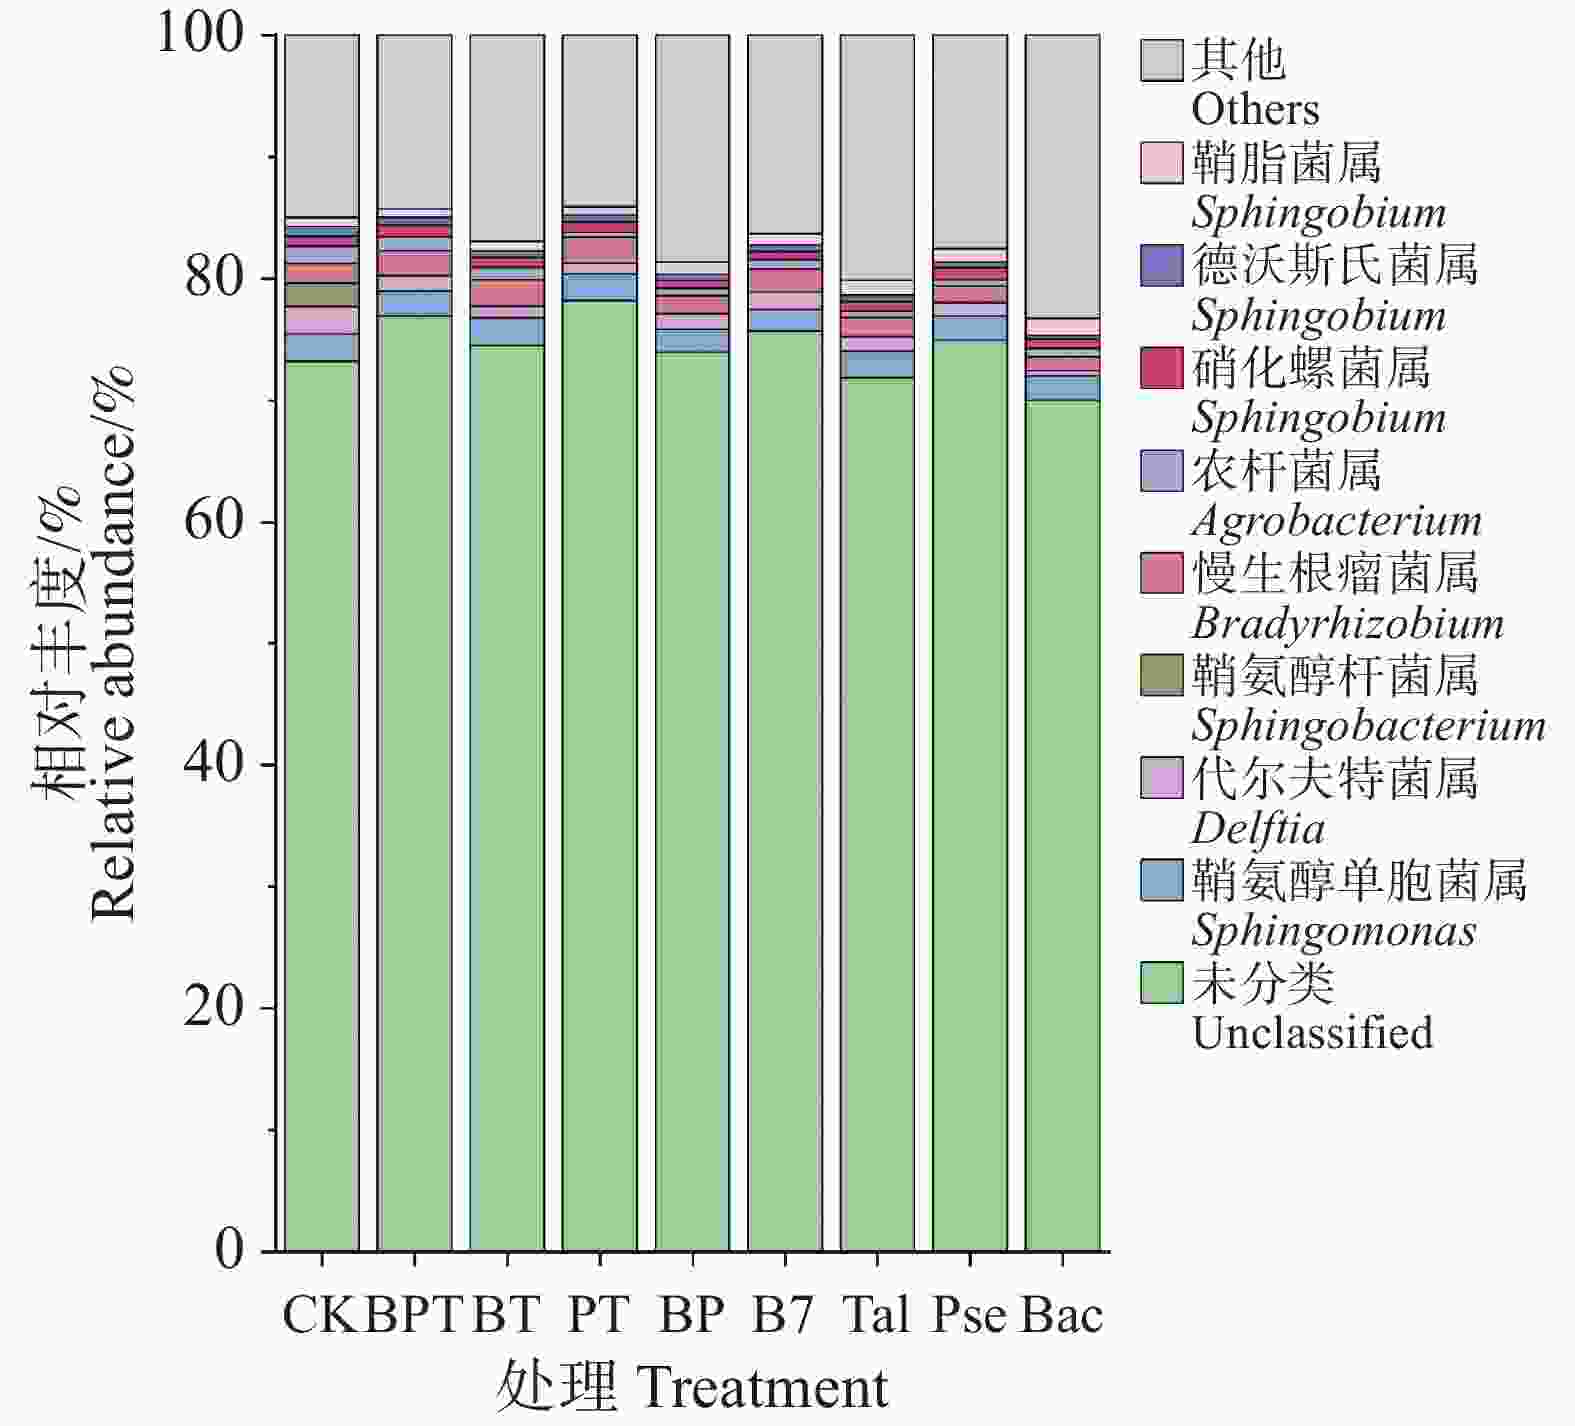
图 4 不同处理下土壤中细菌在属水平的相对丰度
Figure 4. Relative abundance of bacterial genera in soil under different treatments
-
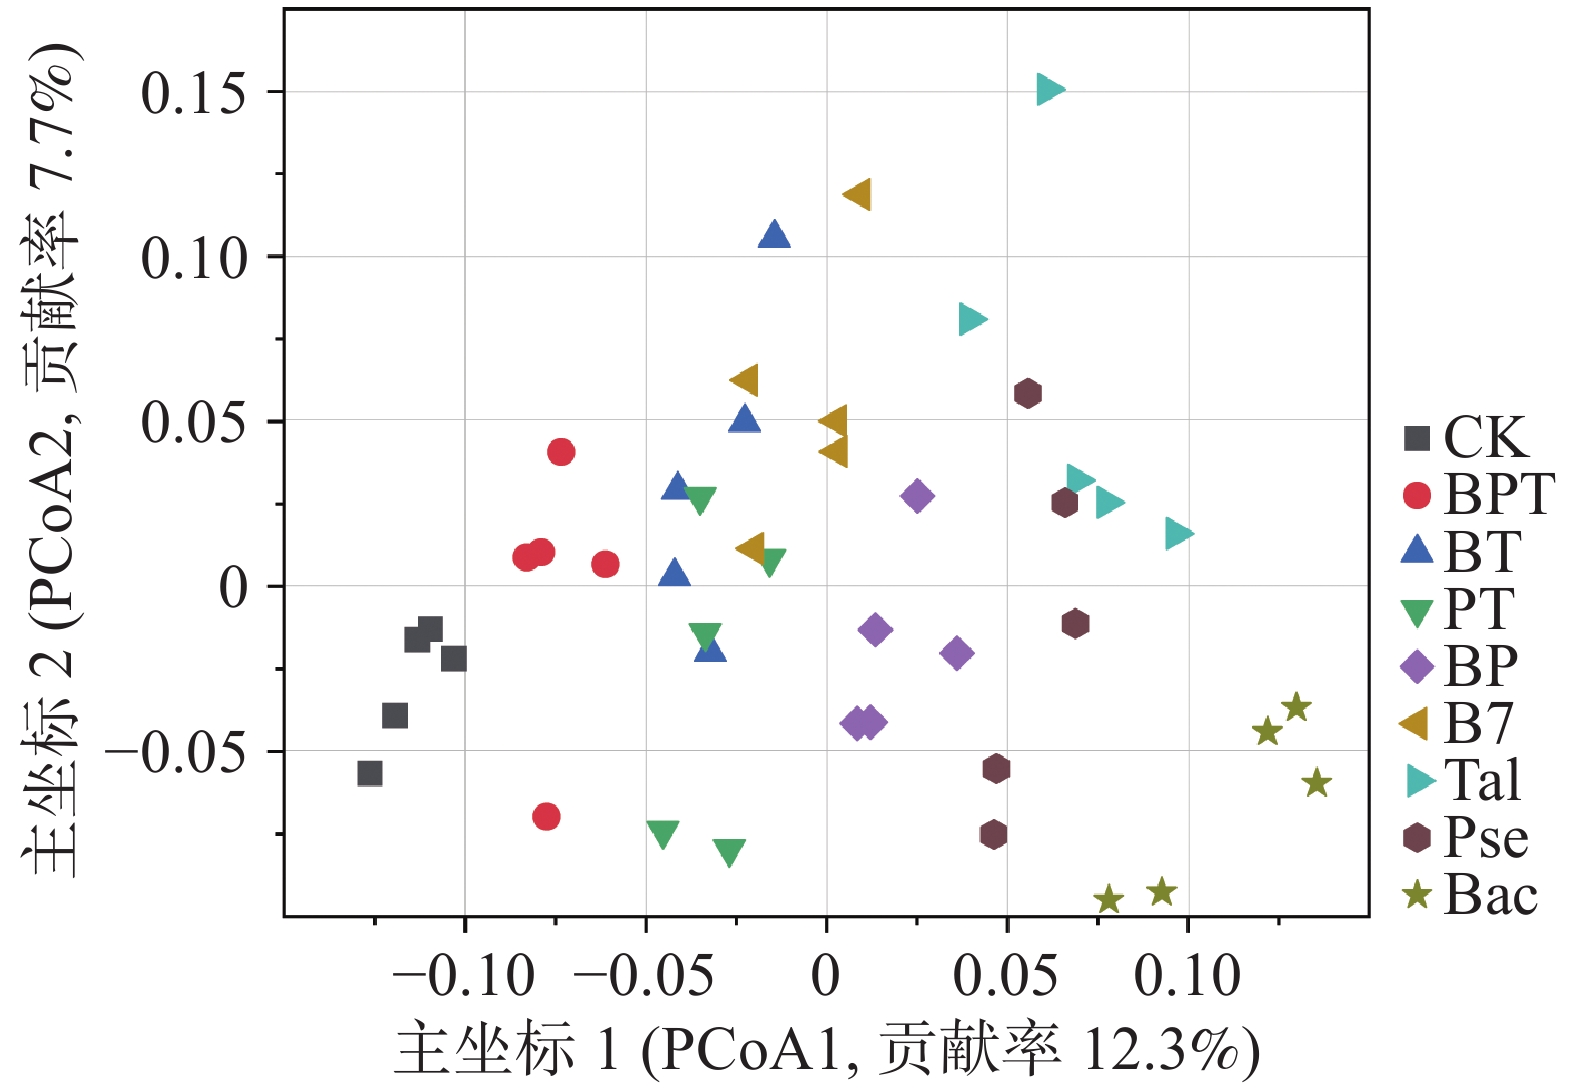
如图5所示,对各处理的细菌群落组成进行PCoA分析,结果表明不同菌液的添加显著影响细菌群落组成(R2 = 0.59, P<0.01),主坐标的第一轴和第二轴分别解释了细菌群落结构12.3%和7.7%的总方差。
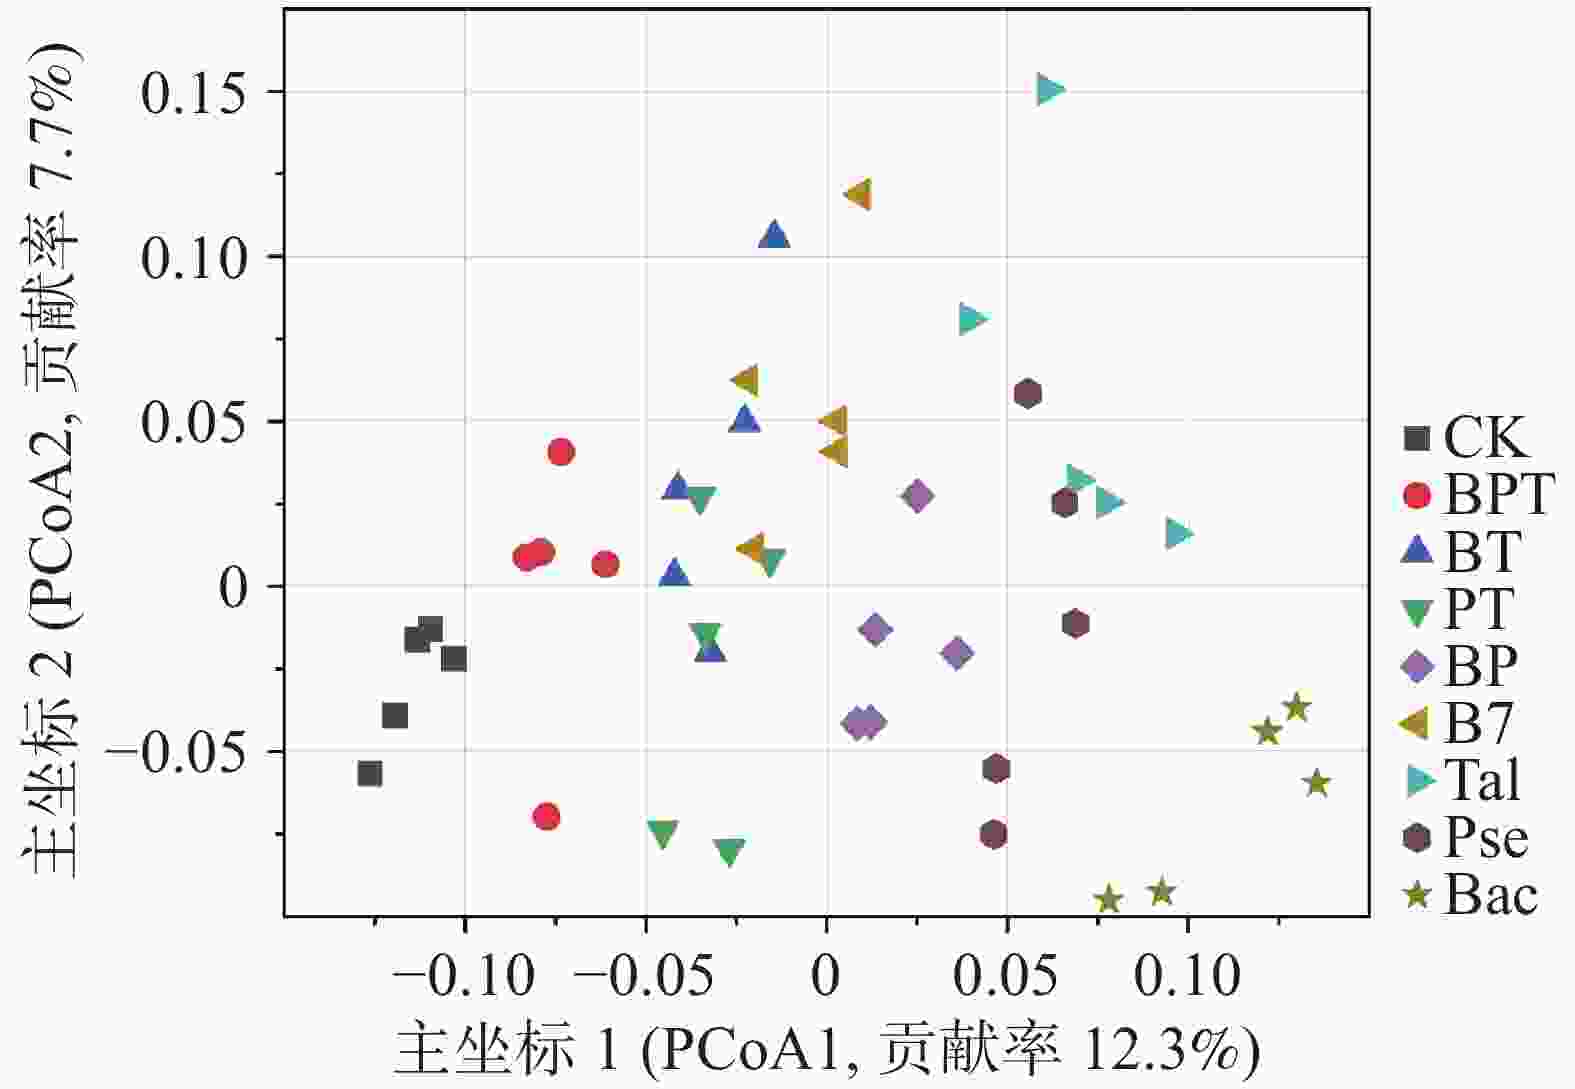
图 5 不同处理下土壤中细菌Beta多样性
Figure 5. Beta diversity of bacterial in soil under different treatments
-
如表5所示,Tal、BP和BT处理的真菌ACE指数和Chao1指数显著高于CK处理(P<0.05),施用菌液处理真菌的香农指数(Shannon,P<0.05)均高于CK处理,CK处理的真菌的辛普森指数(Simpson)是所有处理中最高的。
表 5 真菌群落Alpha多样性指数统计
Table 5. Alpha diversity index statistics of the fungal communities
处理
TreatmentACE指数
ACE indexChao1指数
Chao1 index香农指数
Shannon index辛普森指数
Simpson indexCK 379.88±70.84de 382.29±73.81de 4.37±0.68d 0.166±0.085a BPT 494.14±30.83cd 498.23±35.02cd 4.72±1.12cd 0.157±0.138a BT 547.02±56.06bc 545.44±57.42bc 5.05±0.10c 0.081±0.005b PT 347.23±28.18e 348.80±28.44e 5.94±0.06a 0.050±0.005b BP 674.26±54.95a 680.40±56.26a 5.91±0.11ab 0.053±0.006b B7 673.68±155.51a 679.44±158.29a 5.27±0.09bc 0.102±0.013ab Tal 639.04±122.17ab 642.95±119.81ab 6.18±0.26a 0.049±0.014b Pse 402.06±96.59de 404.54±96.05de 5.75±0.22ab 0.056±0.007b Bac 394.38±96.10de 400.42±100.36de 5.84±0.18ab 0.058±0.011b -
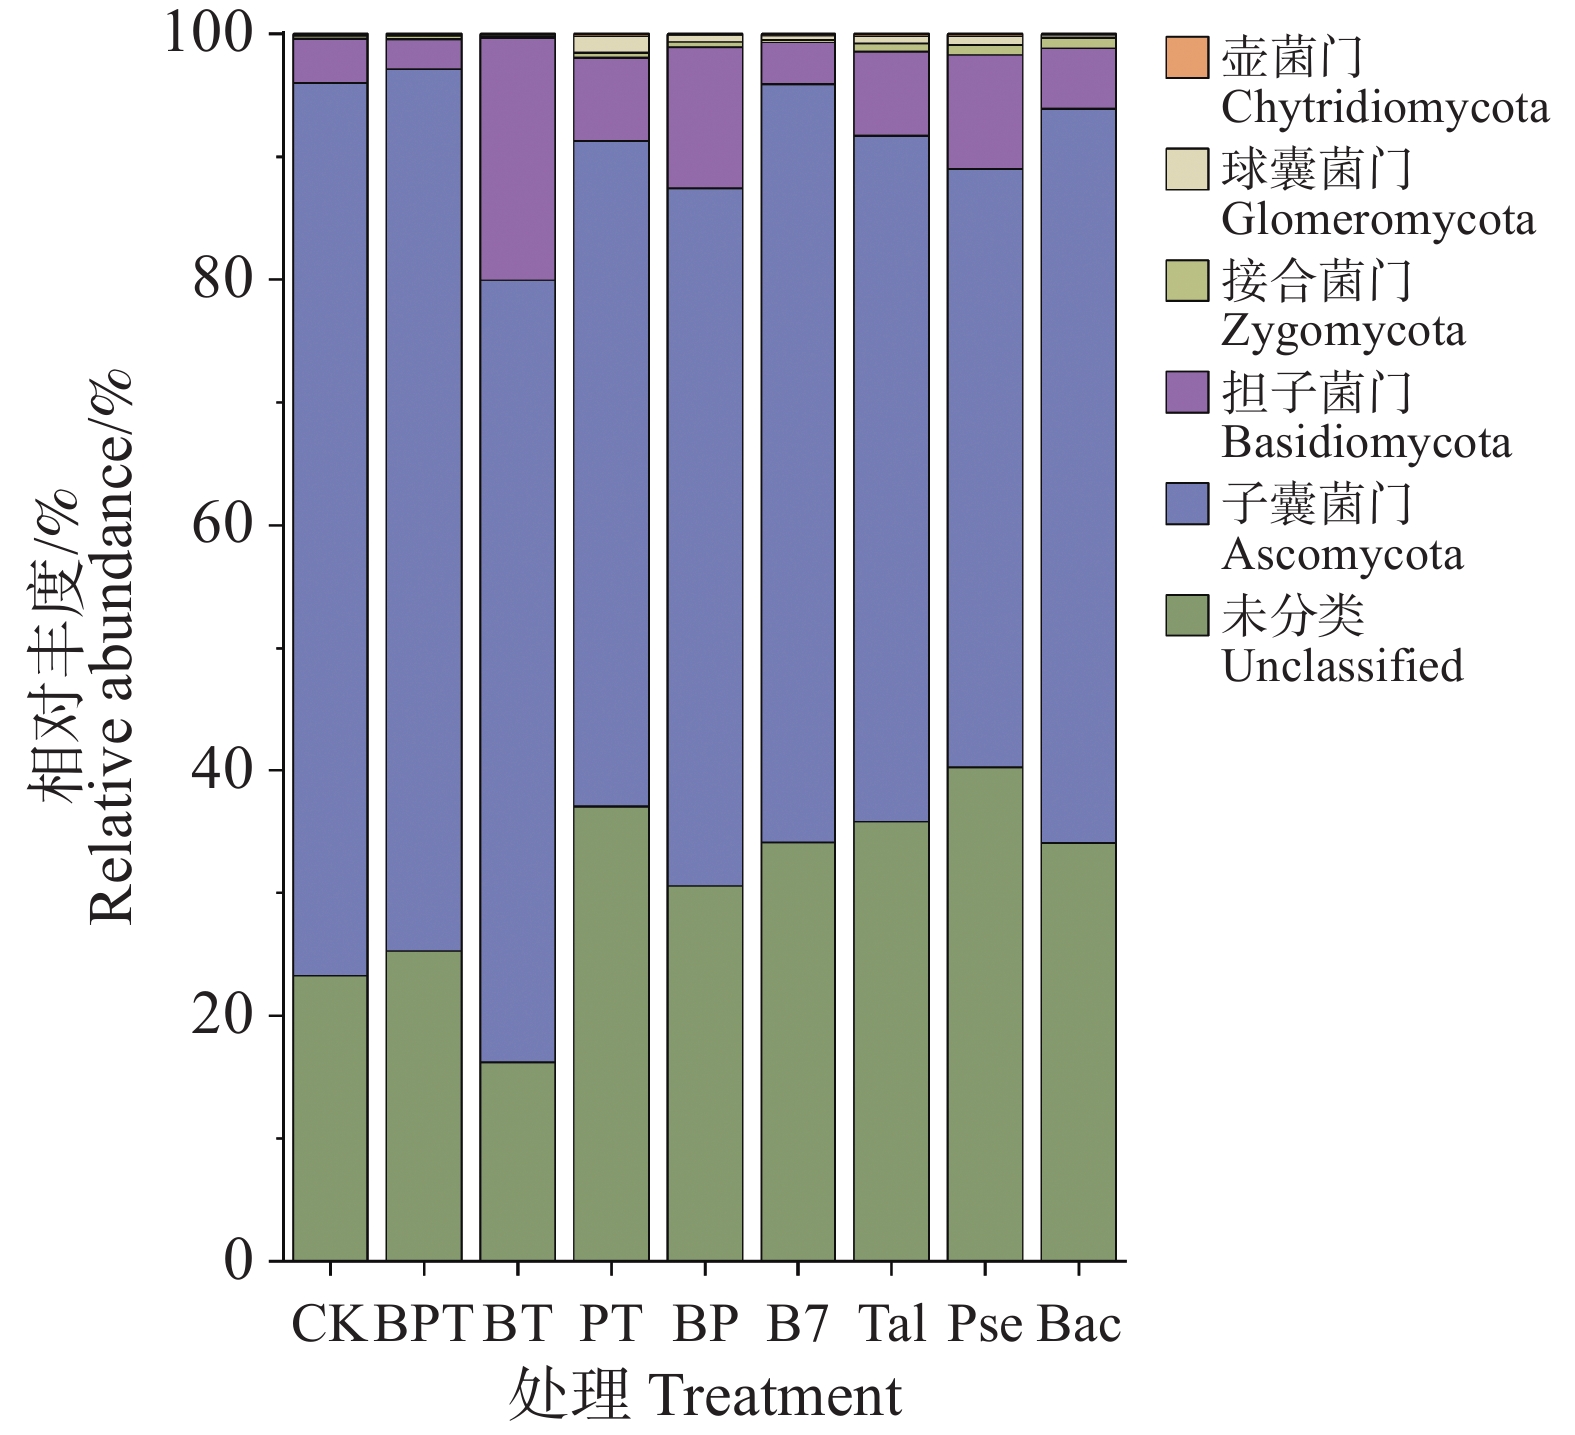
如图6所示,在真菌群落的构成方面,门分类水平上,优势微生物为:子囊菌门(Ascomycota)和担子菌门(Basidiomycota),丰度分别为48.76%~72.71%和2.45%~19.72%,与CK相比,Pse、Tal、BP、PT和BT处理显著增加了担子菌门的相对丰度(P<0.05),其中BT和PT处理担子菌门的相对丰度增加最多,分别是CK的4.47倍和2.18倍。Bac、Pse、Tal处理显著增加了接合菌门(Zygomycota)的相对丰度(P<0.05)。
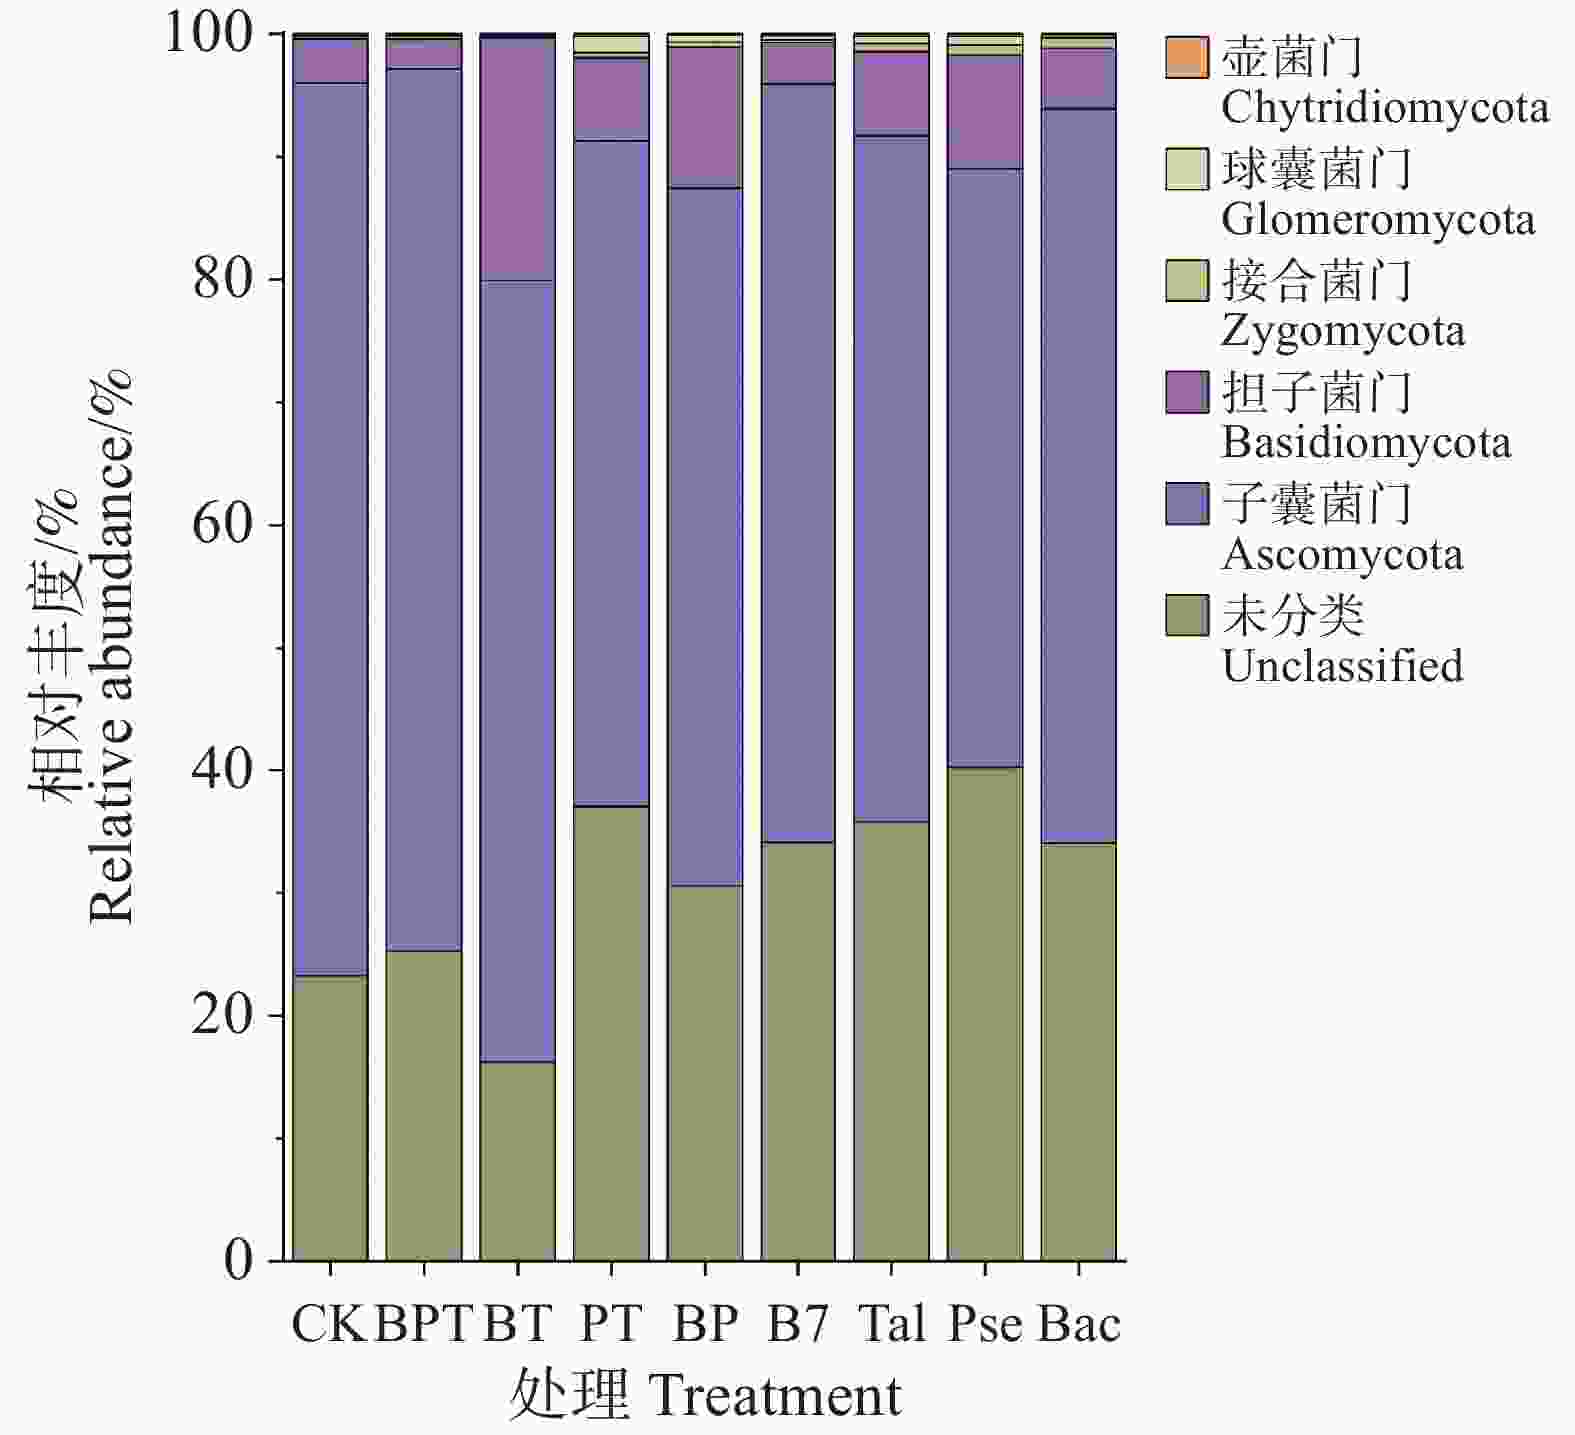
图 6 不同处理下土壤中真菌门水平相对丰度
Figure 6. Relative abundance of fungi at the phylum level in soil under different treatments
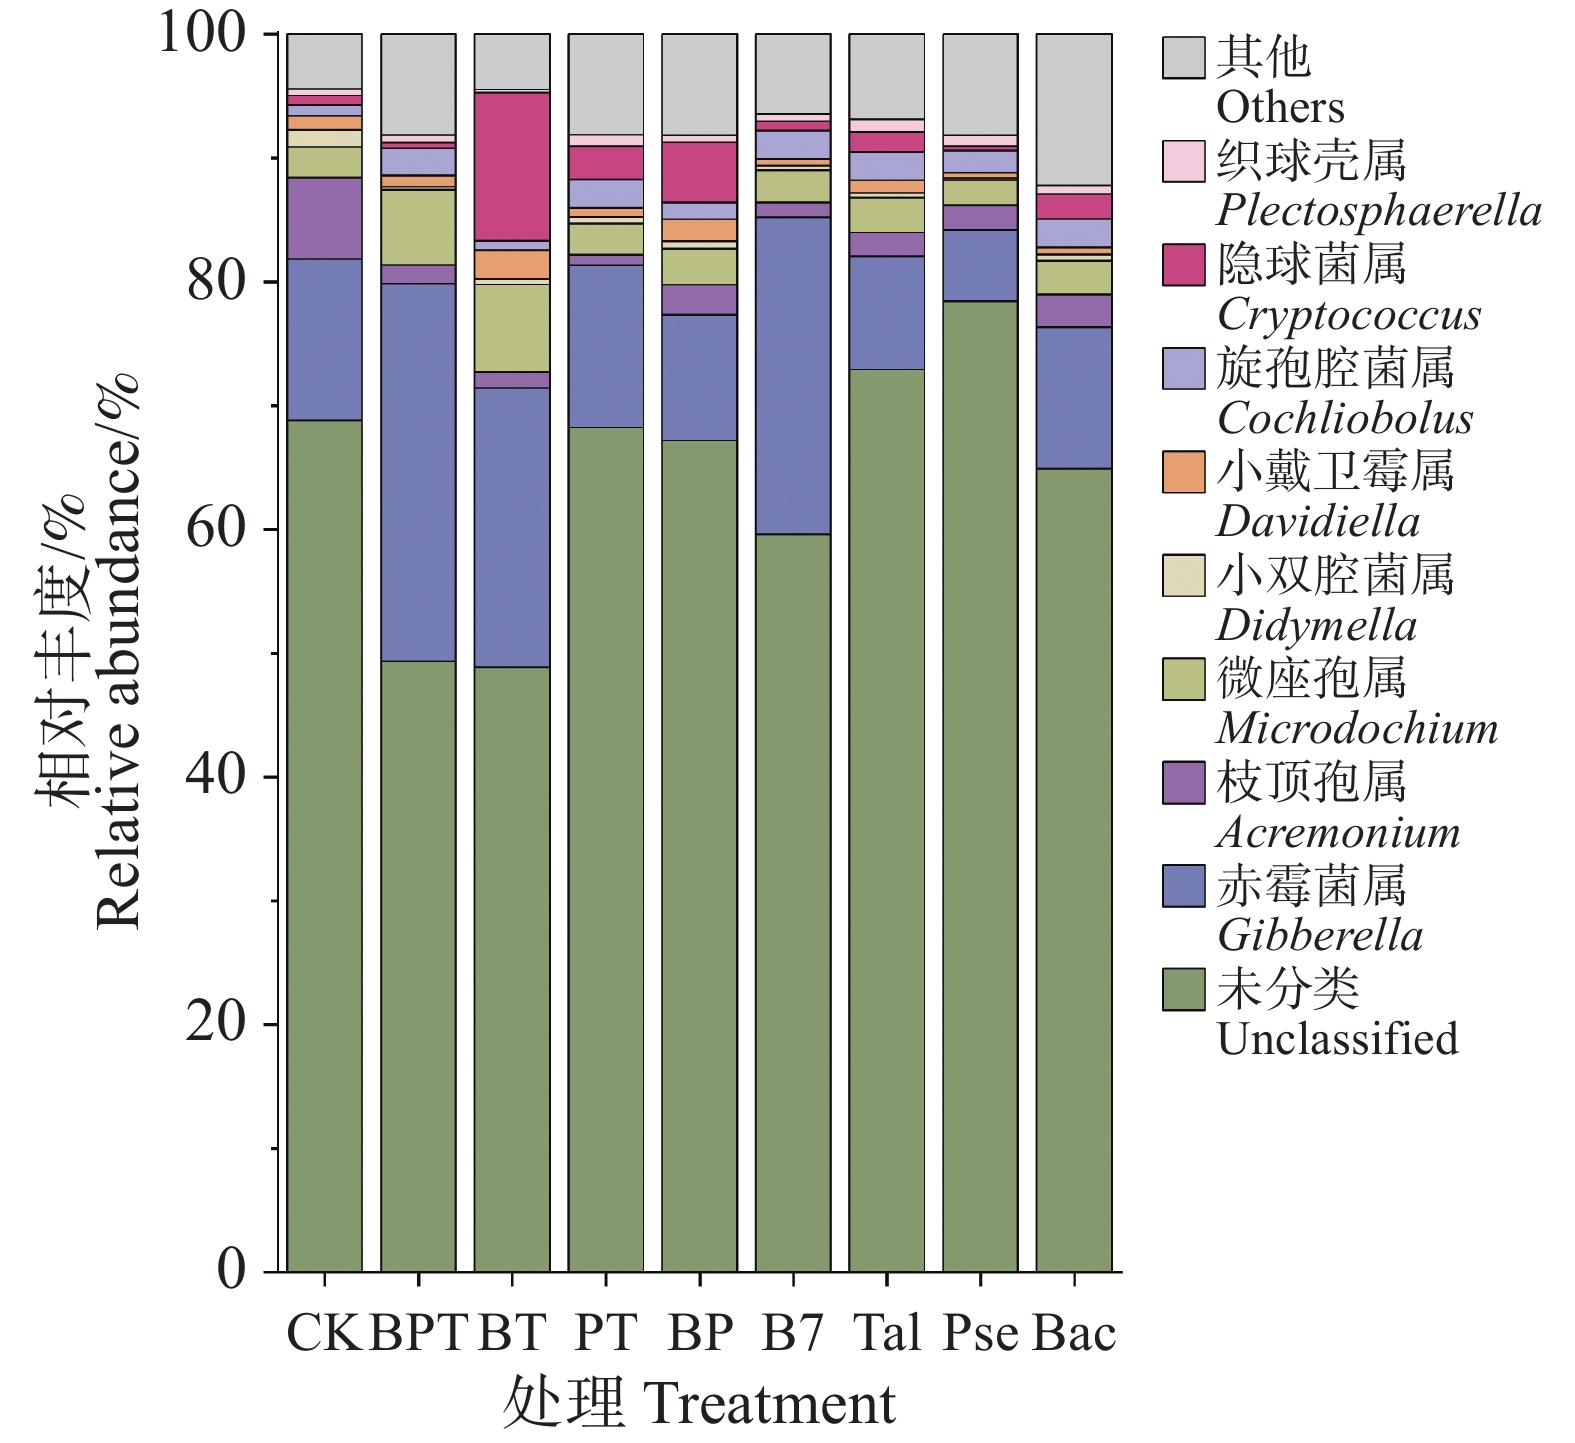
如图7所示,对真菌属水平相对丰度的分析发现,优势属为赤霉属(Gibberella)、枝顶孢属(Acremonium)和微座孢属(Microdochium),丰度分别为5.76%~30.51%、0.84%~6.59%和2.01%~7.07%,与CK相比,BPT处理显著增加了赤霉属的相对丰度,BPT和BT显著增加了微座孢属的相对丰度。
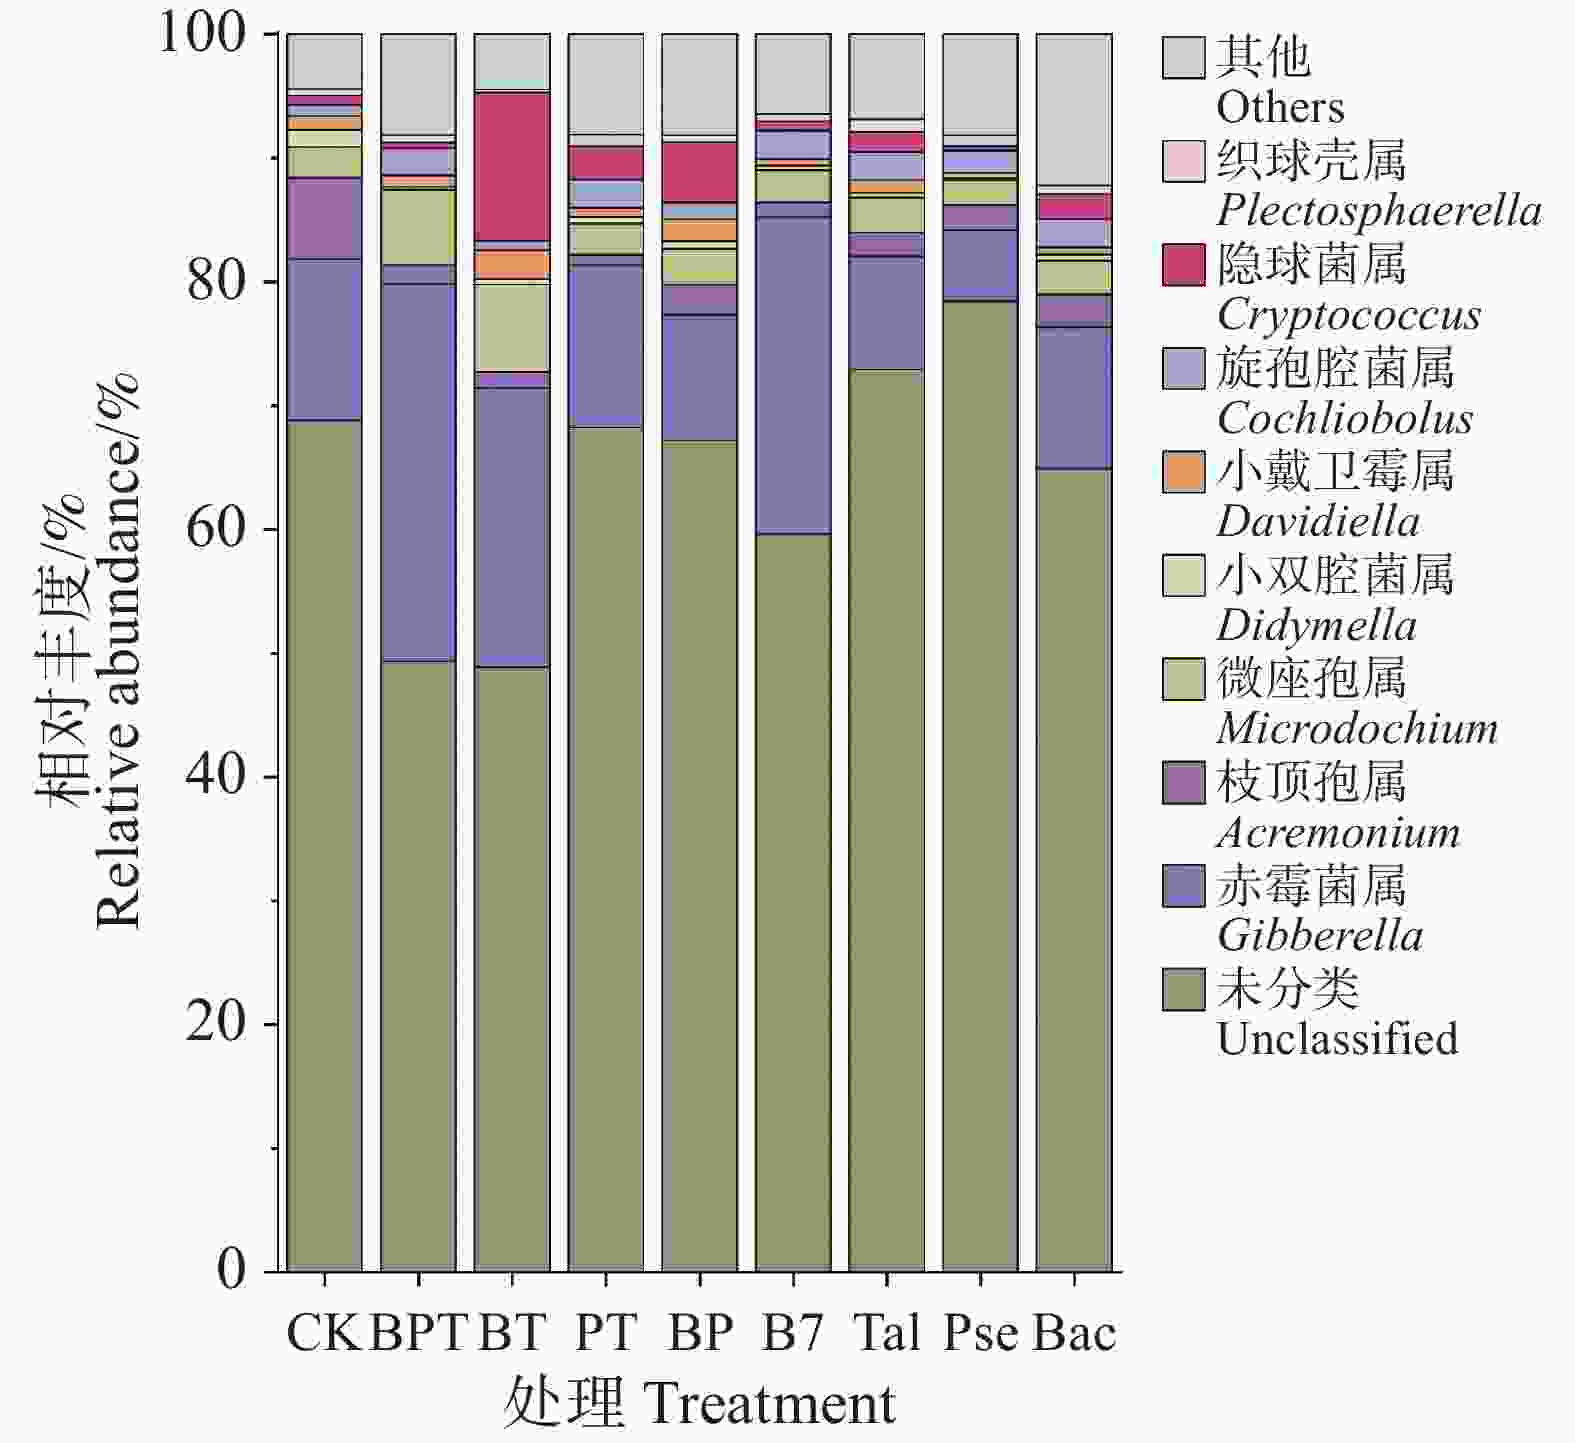
图 7 不同处理下土壤中真菌属水平相对丰度
Figure 7. Relative abundance of fungal genera in soil under different treatments
-
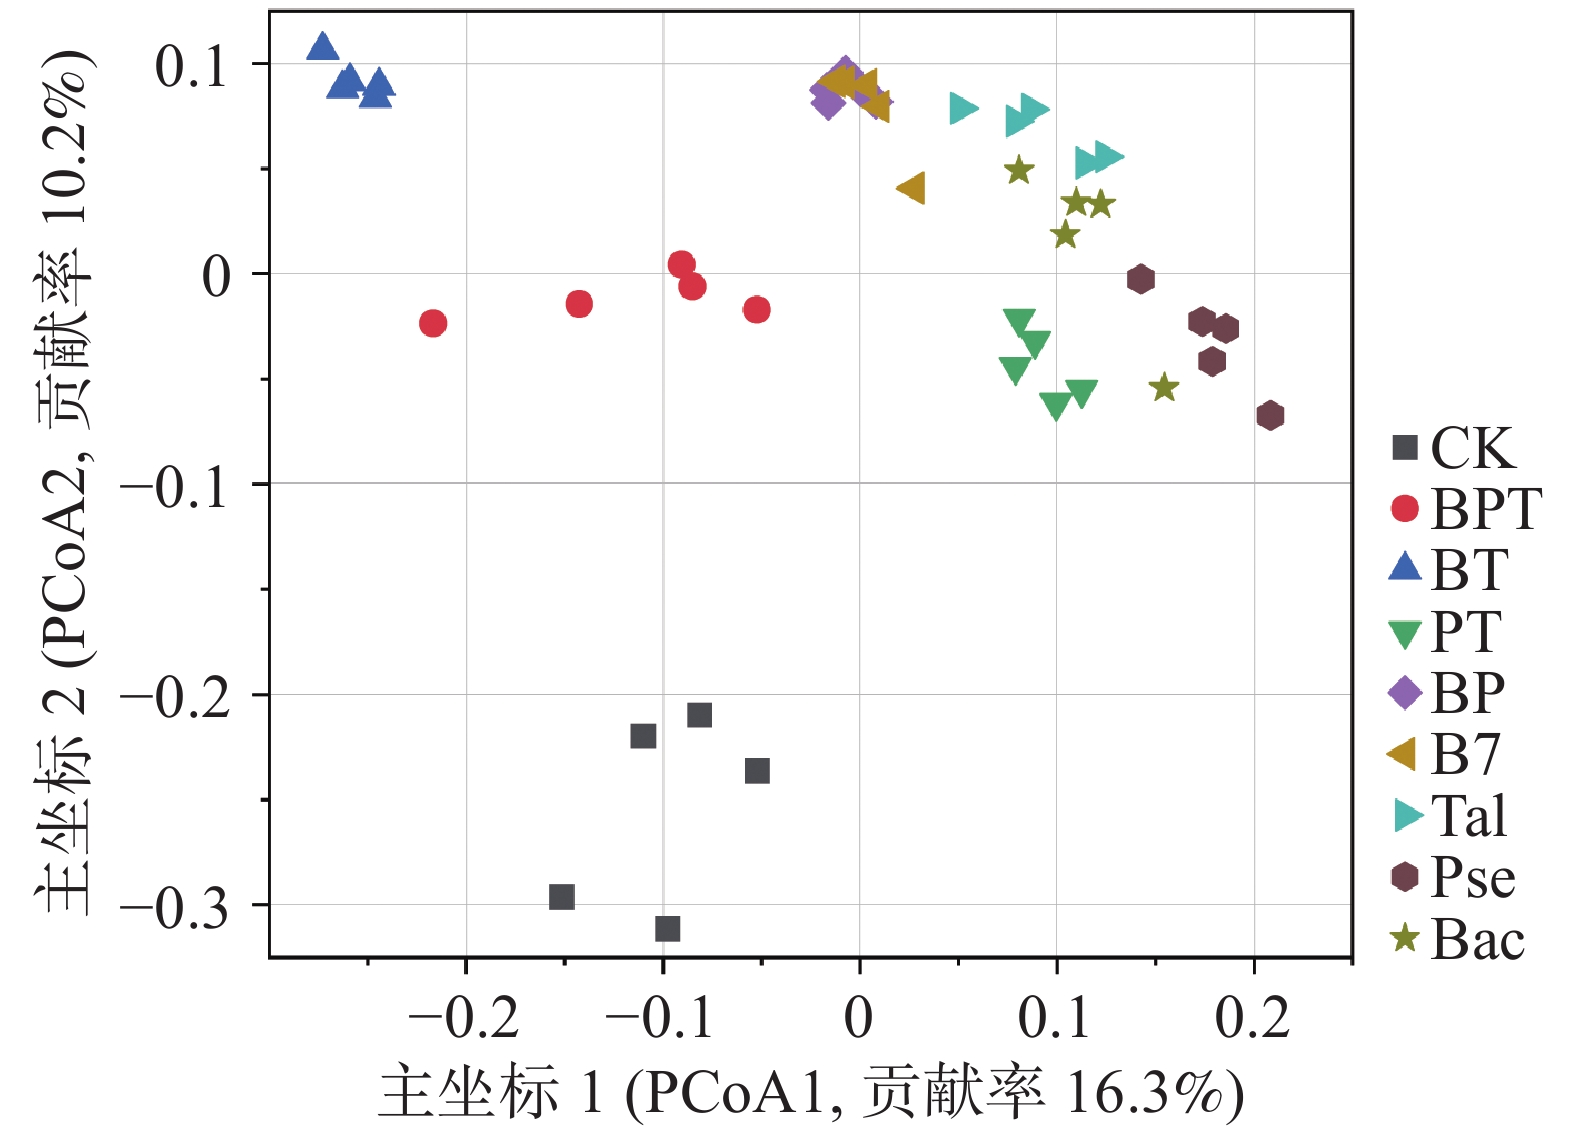
如图8所示,对各处理的真菌群落组成进行PCoA分析,不同菌液的添加显著影响真菌群落组成(R2 = 0.75, P<0.01),主坐标第一轴和第二轴分别解释了真菌群落结构16.3%和10.2%的总方差,CK和添加菌液处理具有显著的差异。
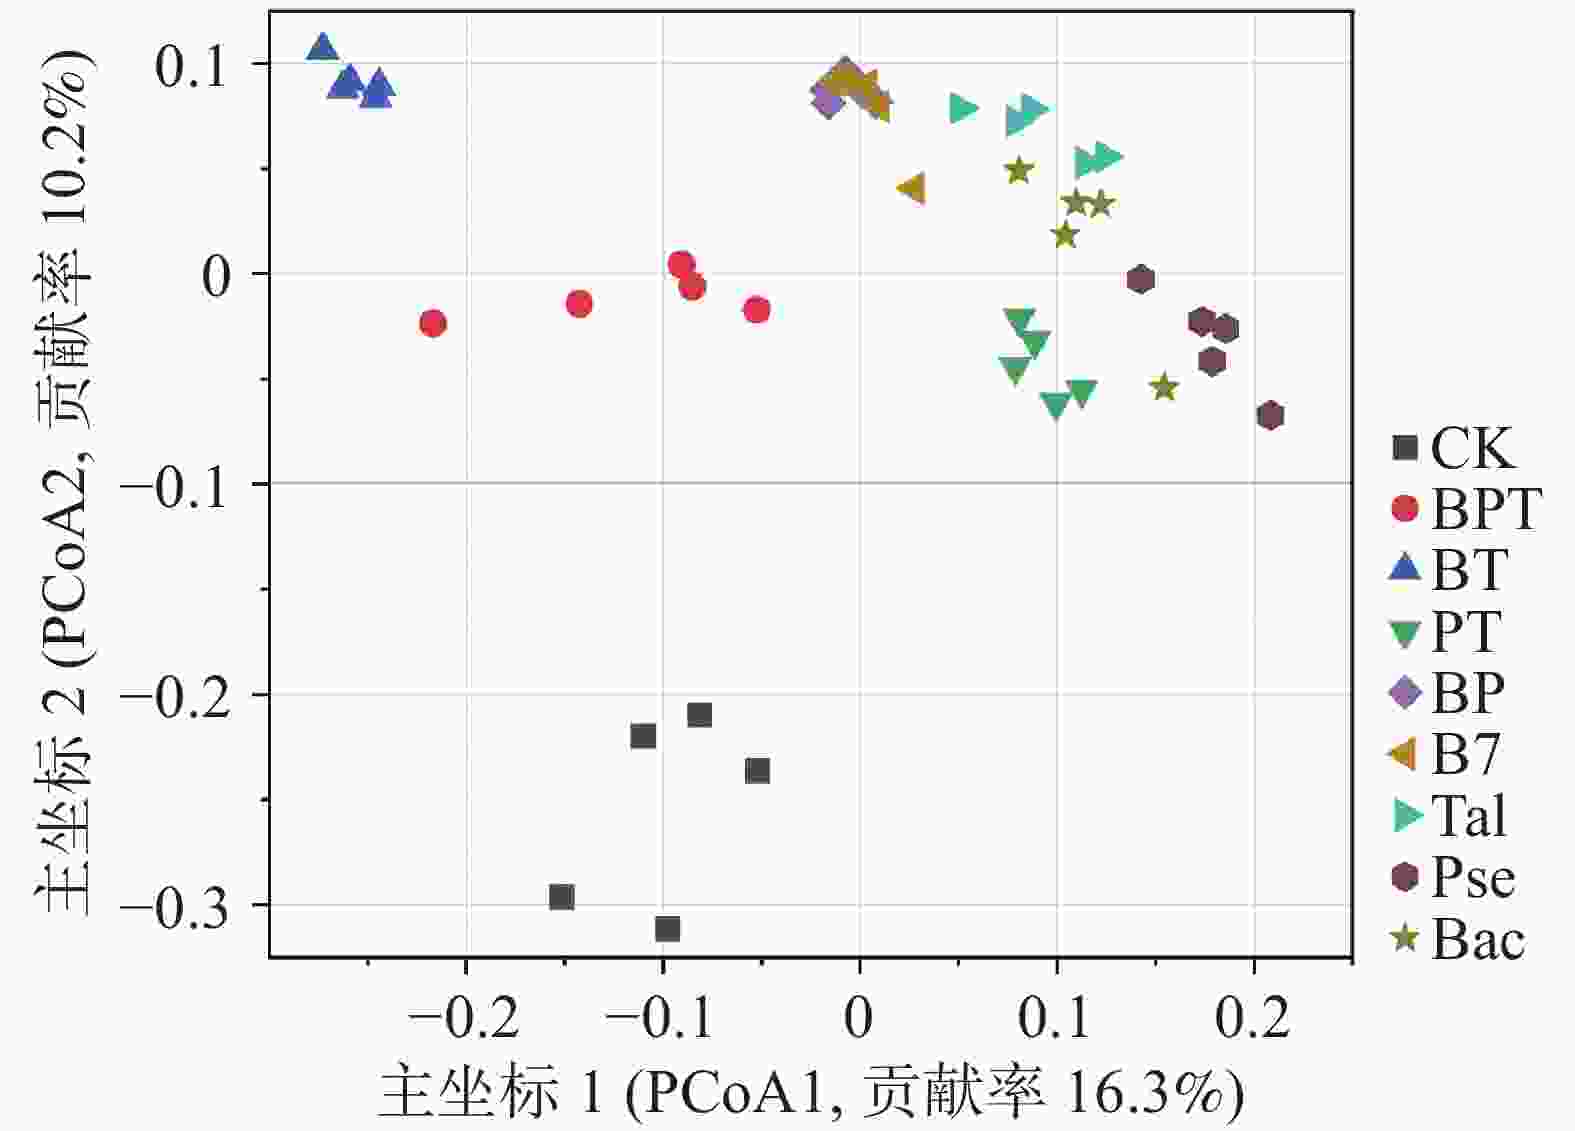
图 8 不同处理下土壤中真菌Beta多样性
Figure 8. Beta diversity of fungi in soil under different treatments
-
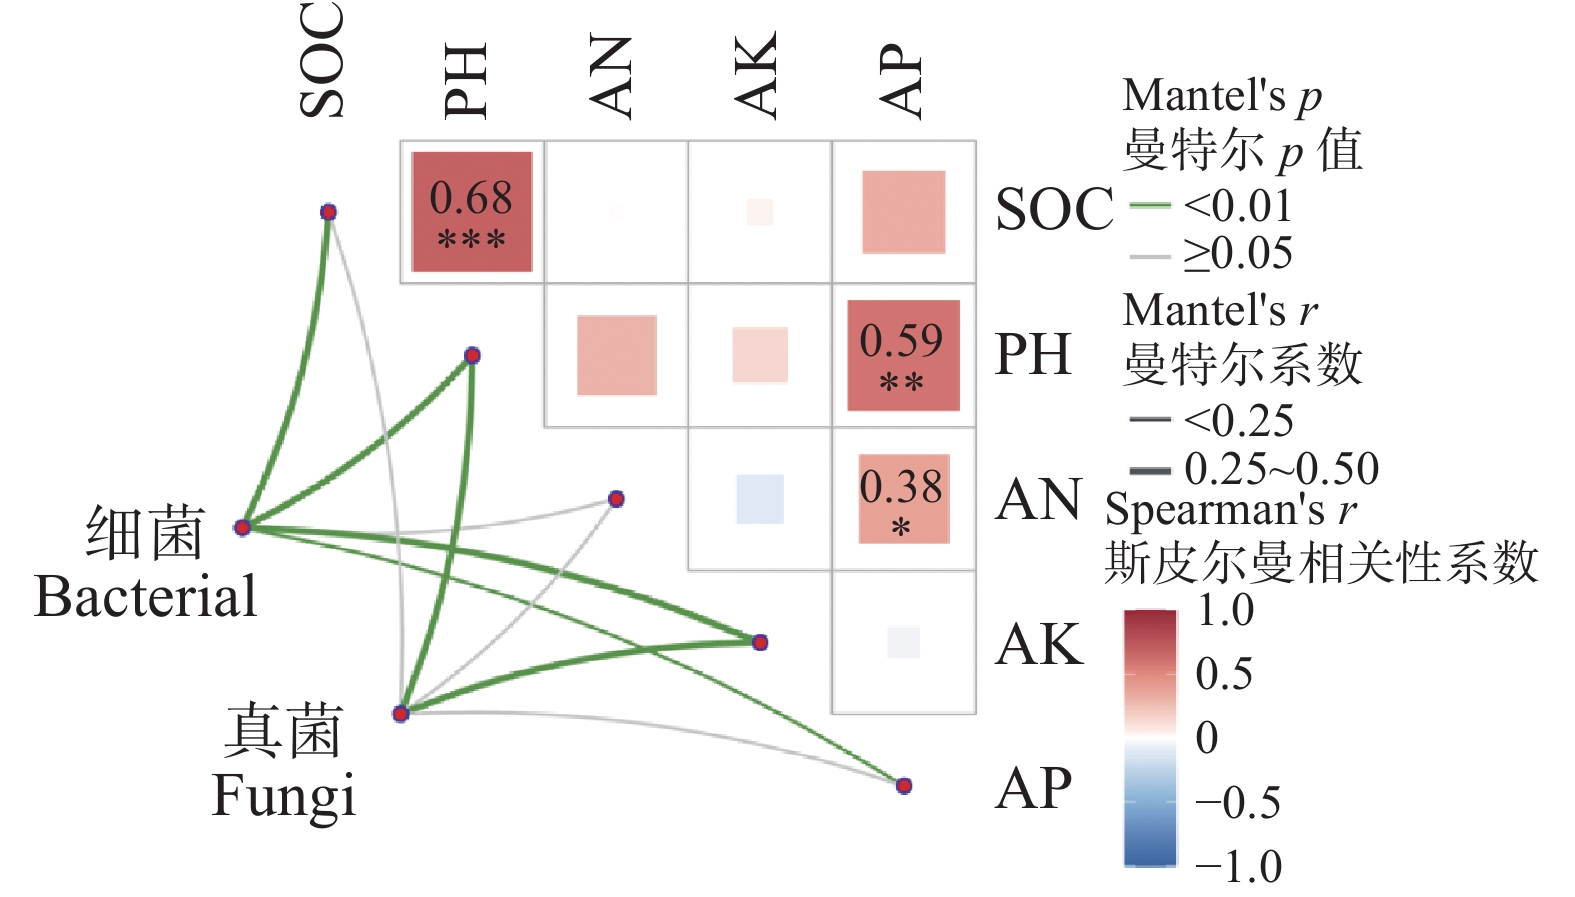
如图9所示,曼特尔检验(mantel test)相关性热图的结果表明,土壤SOC和AP都与pH极显著正相关,而土壤AN与AP显著正相关(P<0.05),并且细菌群落与土壤SOC、pH、AK和AP显著正相关,真菌群落与土壤pH、AK显著正相关(P<0.05)。
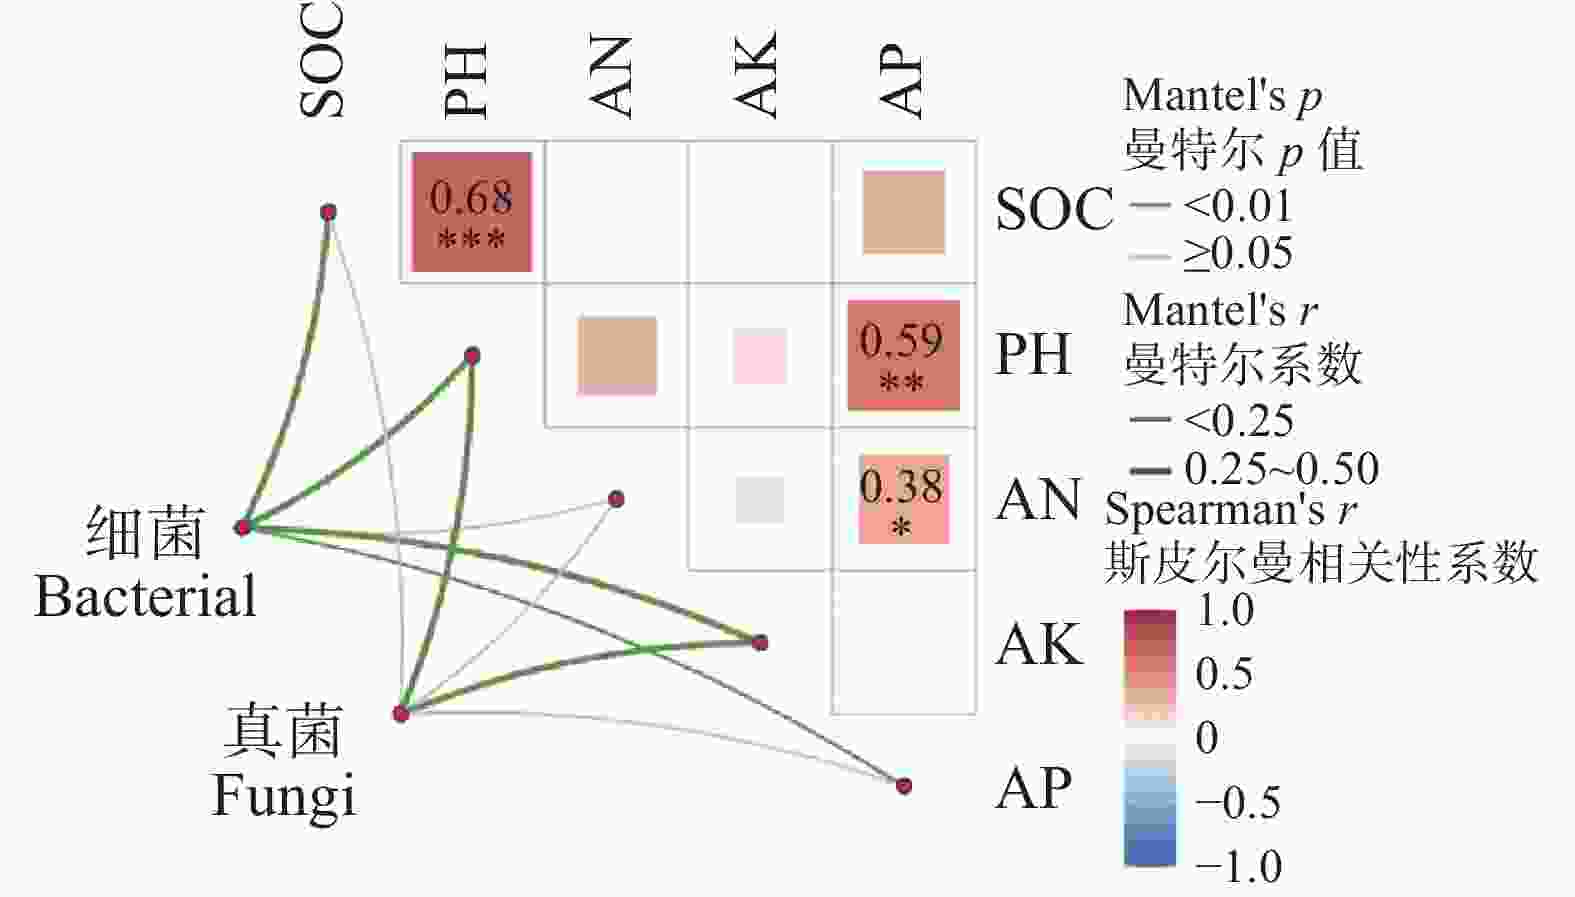
图 9 土壤养分指标的相关性分析及与微生物群落的曼特尔检验
Figure 9. Correlation analysis of soil nutrient indicators and mantel test with microbial communities
-
复合菌液的施用作为环境友好型土壤改良手段,在调控土壤养分循环、提升土壤地力方面发挥着重要作用[22]。本研究通过整合盆栽试验观测与微生物群落分析,系统阐释了复合菌群处理对香蕉枯萎病的防控机制。盆栽试验中观察到复合菌群处理的发病率降低与微生物分析中尖孢镰刀菌丰度下降、有益菌群富集形成了相互印证的因果关系链。以下从多个方面对研究结果进行深入分析与讨论。
-
本研究结果显示,施用菌液(Bac、Pse、Tal和BT处理)显著提高了土壤有机质的含量,其中Bac处理的效果最为显著,增幅达18.83%,而BPT处理却显著降低了有机质含量。这一看似矛盾的现象可能源于不同微生物组合对碳源利用的差异:Bac可能通过分泌胞外多糖促进土壤团聚体形成,从而保护有机质免于快速分解;而BPT处理中,不同菌株间可能存在营养竞争,加速了有机质的矿化分解过程。所有菌液处理均显著提高了土壤pH值,这可能与微生物代谢产生的有机酸溶解碱性矿物质,以及分泌的碱性物质中和土壤酸度有关[23]。在氮磷养分方面,BT处理的碱解氮含量最高(83.53 mg·kg−l),其有效磷含量也最高(6.56 mg·kg−l)。这种协同增效机制可能源于:芽孢杆菌通过分泌有机酸(如柠檬酸、草酸)及磷酸酶可有效溶解无机磷化合物[23];踝节菌通过菌丝网络扩大养分吸收范围;同时慢生根瘤菌属(Bradyrhizobium)的富集进一步增强了固氮和溶磷能力[24],这与番华彩等[25]研究的相一致,嗜麦芽寡养单胞菌可显著提高土壤有效磷含量,而枯草芽孢杆菌在酸性条件下表现出突出的溶磷能力[26]。在氮素转化方面,固氮菌(如根瘤菌)与解淀粉芽孢杆菌联用,不仅能将土壤铵态氮含量提升21.4%,还能抑制硝化作用以减少氮素流失[27]。
-
与前期研究结果一致[28−29],本研究发现施用菌液能显著促进香蕉植株生长。BT处理在株高、叶片数和地上部鲜重等指标上表现尤为突出,地上部鲜重较对照增加116.4%。这种显著的促生效应可能源于多重机制:一方面,复合菌群通过改善土壤养分状况间接促进植物生长;另一方面,功能微生物通过产生植物激素(如IAA、细胞分裂素)直接刺激植物生长发育[5]。此外,踝节菌可能通过扩展根系吸收面积增强养分吸收能力,从而协同提升植株生物量。
-
本研究显示,BT处理对香蕉枯萎病的防控效果最佳,发病率降至13.33%,防控率达到78.95%。这一优异防控率与尖孢镰刀菌分析结果高度吻合:BT处理下尖孢镰刀菌相对丰度仅为1.05%,较CK(5.83%)降低82%,且尖孢镰刀菌相对丰度与发病率呈显著正相关(r=0.95)。BT处理防控率为78.95%与汪军等[30]研究相当,并优于杜婵娟等[8]防效。本研究的优势可能源于使用从香蕉-菠萝轮作土壤中筛选的土著功能菌株,这些菌株更适应本地环境,具备更强的根际定殖能力和生态适应性。BT处理的优异防效可能通过以下协同机制实现:芽孢杆菌分泌脂肽类抗生素(如表面活性素、伊枯草菌素)直接抑制尖孢镰刀菌生长[5];踝节菌通过产生细胞壁降解酶(几丁质酶、葡聚糖酶)破坏病原菌结构;同时两种菌共同诱导植物系统抗性,增强香蕉自身防御能力。这与蔡宗程等[28]和罗雁馨等[29]在不同作物上观察到的菌剂诱导抗性现象相一致。值得注意的是,BPT处理的防效反而降低,这一现象印证了菌群密度和配比可能存在“饱和值”和“门限效应”[28],即过多菌群可能导致微生物间营养竞争激烈,破坏生态平衡,反而降低防控效果。
-
本研究通过高通量测序揭示了复合菌群对土壤微生态的调控作用。BT处理显著提高了真菌群落的Alpha多样性指数(ACE指数和Chao1指数提高44.00%-77.98%),这与健康土壤通常具有较高微生物多样性的规律一致[31]。在群落结构,BT处理显著富集了放线菌门(Actinobacteria)和慢生根瘤菌属(Bradyrhizobium)。放线菌以其广谱抑菌活性著称[32],能够产生多种抗生素直接抑制尖孢镰刀菌;而慢生根瘤菌则通过固氮和溶磷功能改善植物营养状况,间接增强抗病性[24]。此外,担子菌门(Basidiomycota)相对丰度的增加(BT处理为CK的4.47倍)也可能通过促进有机质分解和养分循环,创造不利于尖孢镰刀菌生长的环境。
-
香蕉-菠萝轮作土壤筛选的功能菌株及其复合微生物菌群在改善香蕉盆栽土壤养分、香蕉生长、枯萎病发病率和根际土壤微生物群落组成具有重要作用。其中,BT处理在改良土壤、促进生长及降低发病率方面表现最优。未来需结合田间试验优化菌株配方,以构建“微生物-植物-土壤”一体化的绿色防控体系,为热带地区香蕉产业可持续发展提供技术支撑。
复合微生物菌群对香蕉枯萎病防控和土壤微生物群落的影响
DOI: 10.15886/j.cnki.rdswxb.20250127
 CSTR: 32425.14.j.cnki.rdswxb.20250127
Effects of a complex microbial consortium on banana Fusarium wilt suppression and soil microbial community
-
摘要: 为探究香蕉-菠萝轮作土壤中功能菌株及其复合微生物菌群对香蕉枯萎病的防控效果。以海南大学热区土壤环境生态实验室从香蕉-菠萝轮作土壤中分离得到的对香蕉枯萎病病原菌尖孢镰刀菌古巴专化型4号生理小种(Fusarium oxysporum f. sp. cubense race4, Foc4)具有拮抗作用的贝莱斯芽孢杆菌(Bacillus velezensis)B2、荧光假单胞菌(Pseudomonas fluorescens)B8和踝节菌(Talaromyces sp.)B10为材料,制备并使用了B2菌液(Bac)、B8菌液(Pse)和B10菌液(Tal)3种单菌液,以及B2-B8的复合菌液(BP)、B2-B10的复合菌液(BT)、B8-B10的复合菌液(PT)、B2-B8-B10的复合菌液(BPT)4种复合菌液,采用盆栽试验与高通量测序分析其对香蕉生长、病害防控、土壤养分和土壤微生物群落结构的影响。结果表明:在土壤养分方面,Bac处理使土壤有机质提高18.83%,所有复合菌液处理均提升了土壤pH,其中BT处理的碱解氮和有效磷含量最高;在病原菌抑制方面,BT处理使尖孢镰刀菌相对丰度相较于CK降低82%,且尖孢镰刀菌丰度与发病率显著正相关(r=0.95);在植株生长与病害防控方面,BT处理使香蕉株高和地上部鲜重分别增加12.7%和116.4%,并将枯萎病发病率降至13.33%,防控率达78.95%,在所有处理中表现最优;在微生物群落方面,BT处理富集了放线菌门(Actinobacteria)和慢生根瘤菌属(Bradyrhizobium),并提高了真菌多样性;曼特尔检验表明微生物群落与pH、速效钾(AK)和有效磷(AP)显著相关。综上,BT处理在改善土壤养分、促进香蕉生长、防止病害发生及调控根际微生态方面均表现出最佳效果。复合微生物菌群可通过改善土壤养分和调控根际微生态实现香蕉枯萎病的高效绿色防控,为其生物防治提供理论依据。Abstract: To explore the control efficacy of functional strains and complex microbial consortia from banana-pineapple rotation soil against Banana Fusarium Wilt, antagonistic strains Bacillus velezensis B2, Pseudomonas fluorescens B8, and Talaromyces sp. B10, isolated in our lab, against Fusarium oxysporum f. sp. cubense race 4 (Foc4) were utilized to prepare three single suspensions (Bac, Pse, Tal) and four composite suspensions (BP, BT, PT, BPT) for banana plant treatment. The effects of the treatments on banana growth, disease control, soil nutrients, and microbial community structure were analyzed using pot experiments and high-throughput sequencing. For soil nutrients, Bac treatment increased soil organic matter by 18.83%; all composite treatments increased soil pH, with BT showing the highest available nitrogen and phosphorus. For pathogen suppression, BT reduced the relative abundance of F. oxysporum by 82% compared to CK, and its abundance was significantly positively correlated with disease incidence (r=0.95). For plant growth and disease control, BT increased plant height and shoot fresh weight by 12.7% and 116.4%, respectively, reduced disease incidence to 13.33%, and achieved a control efficacy of 78.95%, performing best among all the treatments. Microbial community analysis revealed that BT enriched Actinobacteria and Bradyrhizobium and increased fungal diversity. Mantel tests indicated significant correlations between the microbial community and pH, available potassium (AK) and available phosphorus (AP). In conclusion, the BT treatment demonstrated optimal performance in improving soil nutrients, promoting banana growth, reducing disease incidence, and regulating the rhizosphere micro-ecology. Complex microbial consortia can enable efficient and eco-friendly control of Banana Fusarium Wilt by improving soil nutrients and modulating the rhizosphere micro-ecology, providing a theoretical basis for its biocontrol.
-
图 2 不同处理的尖孢镰刀菌相对丰度(A)和尖孢镰刀菌与发病率的相关性(B)
注:图1(A)中不同小写字母表示差异显著(P<0.05,Tukey多重比较检验)。
Fig. 2 Relative abundance of Fusarium oxysporum under different treatments(A)and correlation between Fusarium oxysporum abundance and disease incidence(B)
Note: Different lowercase letters in the same column indicate significant difference(P<0.05, Tukey's multiple comparison test).
图 3 不同处理下土壤中细菌在门水平的相对丰度
Fig. 3 Relative abundance of bacterial phyla in soil under different treatments
图 4 不同处理下土壤中细菌在属水平的相对丰度
Fig. 4 Relative abundance of bacterial genera in soil under different treatments
图 5 不同处理下土壤中细菌Beta多样性
Fig. 5 Beta diversity of bacterial in soil under different treatments
图 6 不同处理下土壤中真菌门水平相对丰度
Fig. 6 Relative abundance of fungi at the phylum level in soil under different treatments
图 7 不同处理下土壤中真菌属水平相对丰度
Fig. 7 Relative abundance of fungal genera in soil under different treatments
图 8 不同处理下土壤中真菌Beta多样性
Fig. 8 Beta diversity of fungi in soil under different treatments
图 9 土壤养分指标的相关性分析及与微生物群落的曼特尔检验
注:*表示处理之间呈显著相关性(P<0.05),**和***表示处理之间呈极显著相关性(P<0.01和P<0.001)。SOC为有机质,AN为碱解氮,AK为速效钾,AP为有效磷。
Fig. 9 Correlation analysis of soil nutrient indicators and mantel test with microbial communities
Note: * indicates a significant correlation between treatments(P < 0.05), ** and *** denote highly significant correlations(P < 0.01 and P < 0.001 respectively). SOC denotes organic carbon, AN refers to alkali-hydrolysable nitrogen, AK signifies available potassium, and AP represents available phosphorus.
表 1 不同处理香蕉的土壤养分含量
Table 1 Nutrient content in banana plant soil under different treatments
处理
Treatment有机质/(g·kg−l)
Organic matterpH 碱解氮/(mg·kg−l)
Ammonium nitrogen有效磷/(mg·kg−1)
Available phosphorus速效钾/(mg·kg−1)
Available potassiumBac 15.78±0.07a 5.41±0.01b 77.47±4.50ab 5.86±0.63ab 48.20±0.92b Pse 14.02±0.08c 5.35±0.02cd 81.20±1.40ab 5.91±1.30ab 41.81±0.92ab Tal 15.03±0.15b 5.36±0.02c 79.33±2.14ab 6.19±0.29ab 38.62±0.92ab B7 13.74±0.43cd 5.27±0.02f 79.80±1.40ab 3.62±1.01c 32.22±0.92c BP 13.27±0.07d 5.31±0.01e 81.20±1.40ab 6.38±0.14a 40.21±0.92ab PT 13.48±0.4d 5.31±0.01e 72.80±11.11b 5.77±0.82ab 38.62±2.44ab BT 15.14±0.55b 5.44±0.02a 83.53±4.28a 6.56±0.35a 41.28±1.60ab BPT 12.70±0.09e 5.32±0.01de 80.73±2.91ab 4.84±0.37bc 41.28±1.60ab CK 13.28±0.08d 5.23±0.02g 76.07±2.91ab 4.18±0.72c 64.72±7.55a 注:不同小写字母表示差异显著(P<0.05,Tukey多重比较检验)。下同。 Note: Different lowercase letters indicate significant difference (P < 0.05, Tukey's test). Similarly hereinafter.  下载: 导出CSV
表 2 不同处理对香蕉生长特性的影响
Table 2 Effect of different treatments on the growth of banana plants in the field
处理
Treatment叶片数
Leaf number株高/cm
Plant height最大叶宽/cm
Maximum leaf width最大叶长/cm
Maximum leaf length地上部鲜重/g
Shoot Fresh weightBac 3.62±0.86b 20.35±2.71bc 5.49±0.65c 13.71±1.11c 8.84±0.45ab Pse 3.77±0.94ab 20.43±2.41bc 5.60±0.65bc 13.73±1.21bc 7.96±1.04c Tal 3.75±1.11b 21.66±3.07b 5.65±0.62bc 13.97±0.78b 8.87±1.33bc B7 3.52±0.81c 20.27±1.59c 5.35±0.29d 13.47±0.95c 7.00±0.47c BP 3.97±0.76a 20.46±2.54bc 5.67±0.50b 14.02±1.27b 8.83±1.43bc PT 3.79±0.82ab 20.46±2.56bc 5.70±0.39ab 14.14±1.05b 8.91±1.54b BT 4.25±0.68a 22.23±2.75a 6.16±0.70a 14.68±1.5a 10.71±1.33a BPT 3.92±0.93b 20.76±1.56bc 5.56±0.54c 13.64±1.03c 7.24±0.56c CK 3.26±1.13c 19.73±2.14c 5.27±0.75d 13.19±1.54c 4.95±1.15d
下载: 导出CSV
表 3 不同处理对香蕉发病率及防控率的影响
Table 3 Effects of different treatments on banana disease incidence and Biocontrol effect
处理
Treatment发病率/%
Disease incidence防控率/%
Biocontrol effectBT 13.33±11.55c 78.95±5.88b PT 16.67±5.77bc 73.68±2.94b BP 23.33±15.28b 63.16±7.69ab Tal 26.67±11.55b 57.89±5.88ab Bac 33.33±15.28b 47.37±7.69ab Pse 33.33±5.77b 47.37±2.94ab BPT 43.33±15.28ab 31.58±7.69a B7 46.67±30.55ab – CK 63.33±20.82a –
下载: 导出CSV
表 4 细菌群落Alpha多样性指数统计
Table 4 Alpha diversity index statistics of the bacterial communities
处理
TreatmentACE指数
ACE indexChao1指数
Chao1 index香农指数
Shannon index辛普森指数
Simpson indexCK 3656.90 ±158.52a3661.05 ±162.19ab9.43±0.05a 0.0045 ±0.0003cBPT 3636.26 ±30.31ab3635.20 ±67.84ab9.39±0.07ab 0.0048 ±0.0003cBT 3695.28 ±110.04a3701.63 ±141.76a9.32±0.05bc 0.0048 ±0.0002cPT 3470.69 ±78.05bc3476.38 ±82.81bc9.25±0.11cd 0.0053 ±0.0006bcBP 3709.70 ±126.86a3708.90 ±138.75a9.22±0.02d 0.0055 ±0.0003bcB7 3601.83 ±170.53ab3608.19 ±177.04ab9.19±0.04de 0.0058 ±0.0007bcTal 3621.10 ±89.84ab3619.34 ±104.39ab9.12±0.10ef 0.0060 ±0.0008bcPse 3347.59 ±123.51cd3348.64 ±119.31cd9.09±0.05f 0.0064 ±0.0005bBac 3268.14 ±160.58d3265.47 ±140.48d8.73±0.07g 0.0117 ±0.0026a
下载: 导出CSV
表 5 真菌群落Alpha多样性指数统计
Table 5 Alpha diversity index statistics of the fungal communities
处理
TreatmentACE指数
ACE indexChao1指数
Chao1 index香农指数
Shannon index辛普森指数
Simpson indexCK 379.88±70.84de 382.29±73.81de 4.37±0.68d 0.166±0.085a BPT 494.14±30.83cd 498.23±35.02cd 4.72±1.12cd 0.157±0.138a BT 547.02±56.06bc 545.44±57.42bc 5.05±0.10c 0.081±0.005b PT 347.23±28.18e 348.80±28.44e 5.94±0.06a 0.050±0.005b BP 674.26±54.95a 680.40±56.26a 5.91±0.11ab 0.053±0.006b B7 673.68±155.51a 679.44±158.29a 5.27±0.09bc 0.102±0.013ab Tal 639.04±122.17ab 642.95±119.81ab 6.18±0.26a 0.049±0.014b Pse 402.06±96.59de 404.54±96.05de 5.75±0.22ab 0.056±0.007b Bac 394.38±96.10de 400.42±100.36de 5.84±0.18ab 0.058±0.011b
下载: 导出CSV
-
[1] 杜婵娟, 杨迪, 潘连富, 等. 香蕉枯萎病生防菌肥的优化及其防病促生效果研究[J]. 中国生物防治学报, 2020, 36(3): 396−404. https://doi.org/10.16409/j.cnki.2095-039x.2020.03.016. doi: 10.16409/j.cnki.2095-039x.2020.03.016. [2] 李霜霜, 黄益强, 钟春燕. 我国香蕉枯萎病防控研究进展[J]. 安徽农业科学, 2025, 53(6): 11−16. https://doi.org/10.3969/j.issn.0517-6611.2025.06.003. doi: 10.3969/j.issn.0517-6611.2025.06.003. [3] Das K, Rajawat M V S, Saxena A K, et al. Development of Mesorhizobium ciceri-based biofilms and analyses of their antifungal and plant growth promoting activity in chickpea challenged by fusarium wilt[J]. Indian Journal of Microbiology, 2017, 57(1): 48−59. https://doi.org/10.1007/s12088-016-0610-8. doi: 10.1007/s12088-016-0610-8. [4] 袁杭杰, 粟贵俊, 杨文叶, 等. 不同微生物菌剂与土壤消毒剂配施对土壤微环境的影响[J]. 中国农学通报, 2025, 41(10): 109−114. https://doi.org/10.11924/j.issn.1000-6850.casb2024-0573. doi: 10.11924/j.issn.1000-6850.casb2024-0573. [5] 段志慧. 水培下复合微生物菌剂对香蕉根系诱导抗枯萎病的影响[D]. 南京: 南京农业大学, 2020. https://doi.org/10.27244/d.cnki.gnjnu.2020.001418 [6] Jan F, Arshad H, Ahad M, et al. In vitro assessment of Bacillus subtilis FJ3 affirms its biocontrol and plant growth promoting potential[J]. Frontiers in Plant Science, 2023, 14: 1205894. https://doi.org/10.3389/fpls.2023.1205894. doi: 10.3389/fpls.2023.1205894. [7] Liu S, Wang Z Y, Niu J F, et al. Changes in physicochemical properties, enzymatic activities, and the microbial community of soil significantly influence the continuous cropping of Panax quinquefolius L. (American ginseng)[J]. Plant and Soil, 2021, 463(1/2): 427−446. https://doi.org/10.1007/s11104-021-04911-2. doi: 10.1007/s11104-021-04911-2. [8] 杜婵娟, 杨迪, 蒋尚伯, 等. 复合微生物菌剂对香蕉枯萎病和根际土壤细菌群落的影响[C]//中国植物病理学会2023年学术年会论文集. 泰安: 中国植物病理学会, 2023: 639. https://doi.org/10.26914/c.cnkihy.2023.039241 [9] Larkin R P, Halloran J M. Management effects of disease-suppressive rotation crops on potato yield and soilborne disease and their economic implications in potato production[J]. American Journal of Potato Research, 2014, 91(5): 429−439. https://doi.org/10.1007/s12230-014-9366-z. doi: 10.1007/s12230-014-9366-z. [10] Ma Z M, Guan Z J, Liu Q C, et al. Obstacles in continuous cropping: mechanisms and control measures[J]. Advances in Agronomy, 2023, 179: 205−256. https://doi.org/10.1016/bs.agron.2023.01.004. doi: 10.1016/bs.agron.2023.01.004. [11] 袁先福, 孙玉菡, 朱成之, 等. 轮作联用生物有机肥促进香蕉生长[J]. 应用与环境生物学报, 2018, 24(1): 60−67. https://doi.org/10.19675/j.cnki.1006-687x.2017.03022. doi: 10.19675/j.cnki.1006-687x.2017.03022. [12] 杨劲明, 范平珊, 王禹童, 等. 不同菠萝品种种植对连作蕉园土壤理化性质和可培养微生物数量的影响[J]. 微生物学通报, 2020, 47(8): 2471−2483. https://doi.org/10.13344/j.microbiol.china.190945. doi: 10.13344/j.microbiol.china.190945. [13] 杨劲明. 菠萝-香蕉轮作抑制香蕉枯萎病的根际生态学机制研究[D]. 海口: 海南大学, 2024. https://doi.org/10.27073/d.cnki.ghadu.2024.000707 [14] 何欣. 防治土传香蕉枯萎病微生物有机肥研制与生物效应研究[D]. 南京: 南京农业大学, 2010. https://doi.org/10.7666/d.Y1762645 [15] 何欣, 黄启为, 杨兴明, 等. 香蕉枯萎病致病菌筛选及致病菌浓度对香蕉枯萎病的影响[J]. 中国农业科学, 2010, 43(18): 3809−3816. https://doi.org/10.3864/j.issn.0578-1752.2010.18.015 doi: 10.3864/j.issn.0578-1752.2010.18.015 [16] 甘林, 代玉立, 兰成忠, 等. 复合生防菌对香蕉枯萎病的防效及其促生作用[J]. 福建农业科技, 2024, 55(6): 13−18. https://doi.org/10.13651/j.cnki.fjnykj.2024.06.003 doi: 10.13651/j.cnki.fjnykj.2024.06.003 [17] Shen Z Z, Penton C R, Lv N N, et al. Banana Fusarium wilt disease incidence is influenced by shifts of soil microbial communities under different monoculture spans[J]. Microbial Ecology, 2018, 75(3): 739−750. https://doi.org/10.1007/s00248-017-1052-5 doi: 10.1007/s00248-017-1052-5 [18] 王蓓蓓. 轮作及生物有机肥防控香蕉土传枯萎病的土壤微生物机制研究[D]. 南京: 南京农业大学, 2015. https://doi.org/10.7666/d.Y3185706 [19] 赖朝圆, 杨越, 陶成圆, 等. 不同作物-香蕉轮作对香蕉生产及土壤肥力质量的影响[J]. 江苏农业学报, 2018, 34(2): 299−306. https://doi.org/10.3969/j.issn.1000-4440.2018.02.011. doi: 10.3969/j.issn.1000-4440.2018.02.011. [20] Fu L, Ruan Y Z, Tao C Y, et al. Continous application of bioorganic fertilizer induced resilient culturable bacteria community associated with banana Fusarium wilt suppression[J]. Scientific Reports, 2016, 6: 27731. https://doi.org/10.1038/srep27731. doi: 10.1038/srep27731. [21] 鲍士旦. 土壤农化分析[M]. 3版. 北京: 中国农业出版社, 2000: 25−270. [22] Song X C, Liu M Q, Wu D, et al. Interaction matters: synergy between vermicompost and PGPR agents improves soil quality, crop quality and crop yield in the field[J]. Applied Soil Ecology, 2015, 89: 25−34. https://doi.org/10.1016/j.apsoil.2015.01.005. doi: 10.1016/j.apsoil.2015.01.005. [23] 沈仁芳, 赵学强. 土壤微生物在植物获得养分中的作用[J]. 生态学报, 2015, 35(20): 6584−6591. https://doi.org/10.5846/stxb201506051140. doi: 10.5846/stxb201506051140. [24] 柳晓磊, 齐钊, 闫臻, 等. 复合微生物菌剂与氨基酸水溶肥组合施用对香蕉土壤理化性质及微生物群落的影响[J]. 中国土壤与肥料, 2019(1): 151−158. https://doi.org/10.11838/sfsc.1673-6257.18092. doi: 10.11838/sfsc.1673-6257.18092. [25] 番华彩, 魏薇, 曾莉, 等. 香蕉枯萎病和健康植株根际土壤细菌群落结构差异对比分析[J]. 西南农业学报, 2021, 34(9): 1885−1891. https://doi.org/10.16213/j.cnki.scjas.2021.9.011. doi: 10.16213/j.cnki.scjas.2021.9.011. [26] 汪金华. 复合菌与不同配比氮磷钾联合施用对香蕉枯萎病的防控效果[D]. 海口: 海南大学, 2021. https://doi.org/10.27073/d.cnki.ghadu.2021.001507 [27] 甘林, 代玉立, 刘晓菲, 等. 香蕉枯萎病高效拮抗土著细菌的筛选及其防效[J]. 西北农林科技大学学报(自然科学版), 2024, 52(6): 95−105. https://doi.org/10.13207/j.cnki.jnwafu.2024.06.010 doi: 10.13207/j.cnki.jnwafu.2024.06.010 [28] 蔡宗程, 吕亮雨, 高佩, 等. EM微生物菌剂对高海拔地区燕麦产量品质及土壤质量的影响[J]. 中国土壤与肥料, 2025(9): 138−149. https://doi.org/10.11838/sfsc.1673-6257.25012. doi: 10.11838/sfsc.1673-6257.25012. [29] 罗雁馨, 曹行行, 沈婷婷, 等. 微生物菌剂对退砂地土壤改良及西瓜品质的调控作用[J]. 西北农林科技大学学报(自然科学版), 2025, 53(11): 79−91. https://doi.org/10.13207/j.cnki.jnwafu.2025.11.008. doi: 10.13207/j.cnki.jnwafu.2025.11.008. [30] 汪军, 李晓霞, 刘建, 等. 绿农林®41复合微生物菌肥对番茄枯萎病发生和根际土壤真菌群落的影响[J]. 热带作物学报, 2024, 45(11): 2416−2426. https://doi.org/10.3969/j.issn.1000-2561.2024.11.020. doi: 10.3969/j.issn.1000-2561.2024.11.020. [31] Shi H M, Lu L X, Ye J R, et al. Effects of two Bacillus velezensis microbial inoculants on the growth and rhizosphere soil environment of Prunus davidiana[J]. International Journal of Molecular Sciences, 2022, 23(21): 13639. https://doi.org/10.3390/ijms232113639. doi: 10.3390/ijms232113639. [32] 马慧媛, 黄媛媛, 刘胜尧, 等. 微生物菌剂施用对设施茄子根际土壤养分和细菌群落多样性的影响[J]. 微生物学通报, 2020, 47(1): 140−150. https://doi.org/10.13344/j.microbiol.china.190275. doi: 10.13344/j.microbiol.china.190275. -

 点击查看大图
计量
- 文章访问数: 1
- HTML全文浏览量: 4
- 被引次数: 0
