

-
辣椒(Capsicum spp.)是茄科辣椒属作物,在中国蔬菜生产与消费中占据重要地位。辣椒果实富含辣椒素、辣椒红素、维生素及矿质元素,兼具食用、药用及工业用途,经济及营养价值较高[1-2]。随着对抗病、抗逆、优质等各种目标性状的需求持续升级,传统育种技术因其周期长、遗传背景复杂、改良效率低等局限,已难以满足市场对辣椒种质改良的需求[3]。基因工程技术为辣椒种质创新提供了定向改良途径,其中遗传转化体系作为基因功能验证与优质种质创制的核心技术支撑,其高效性与稳定性直接决定育种进程[4]。
目前,辣椒遗传转化研究多依赖根癌农杆菌介导的愈伤组织转化路径,普遍面临基因型依赖性强、外植体再生困难、转化效率低且不稳定等问题[2-3]。发根农杆菌(Agrobacterium rhizogenes)介导的遗传转化技术,是植物基因功能研究和分子育种领域的一项重要技术手段。该方法利用发根农杆菌侵染植物外植体创面,诱导产生毛状根(hairy roots),从而实现外源基因的导入与表达分析[5]。该方法凭借操作简便、转化周期短、毛状根生长迅速且遗传稳定等优势,已在草莓(Fragaria × ananassa)、蒺藜苜蓿(Medicago truncatula)、白菜(Brassica campestris)等多种作物中成功应用,为作物根部基因功能研究提供了良好的技术支撑[6-8]。近年来,以毛状根转化体系为代表的一系列技术突破,为根部基因功能分析提供了高效、快速的研究平台。陈佳欣等通过优化共培养条件并清理不定根,建立了一套高效的大豆转基因毛状根嵌合植株体系,显著提高了毛状根诱导率与阳性率,并加快了结瘤进程[9]。韩英鹏等则利用发根农杆菌介导的毛状根转化体系,对大豆胞囊线虫(Heterodera glycines)病4号生理小种抗性候选基因GmRSCN4-3进行功能鉴定,发现转基因阳性根中雌虫胞囊数显著低于对照,初步验证了该基因的抗病功能[10]。
有研究者通过优化外植体类型、培养基配方、农杆菌侵染条件等参数,在辣椒遗传转化研究中取得一定进展[1, 2]。例如,子叶外植体因芽诱导率高、再生周期短等特点被广泛应用,而头孢霉素或草铵膦的浓度优化,也为转化体高效筛选提供了保障[1]。已有少量研究开展辣椒发根农杆菌诱导毛状根的相关试验[11, 12],但适配可视化报告基因、可稳定用于基因功能验证的辣椒毛状根遗传转化体系仍然较为匮乏。
除此以外,现有遗传转化研究多使用GUS、GFP等报告基因,存在检测流程复杂、需特殊仪器辅助等局限[13]。RUBY作为新型可视化标记基因,其表达产物可催化生成红色的甜菜素,无需复杂处理即可通过肉眼快速检出阳性植株,关于RUBY报告基因在辣椒转化体系中的应用值得进行深入探索[14]。
基于此,本研究以辣椒为试验材料,依托发根农杆菌介导的遗传转化技术,引入RUBY可视化报告基因,通过筛选最优发根农杆菌菌株、优化菌液浓度、侵染时间、共培养时间等核心转化参数,构建一套稳定、高效的辣椒毛状根遗传转化体系。本研究结果可丰富辣椒基因功能验证的技术手段,为辣椒种质资源定向改良提供技术支撑,同时也为RUBY报告基因在茄科作物遗传转化中的推广应用提供参考依据。
-
本研究所用辣椒品种为‘茄门’,购自沧州津科力丰种苗有限责任公司。
-
发根农杆菌(Agrobacterium rhizogenes)菌株Ar Qual(CAT:AC1060)、K599(CAT:AC1080)、MSU440(CAT:AC1070)以及35S::RUBY质粒(PL1245)均购于上海唯地生物技术有限公司,其抗性标记特征见表1。
表 1 所用发根农杆菌菌株和质粒的抗性标记特征
Table 1. Resistant marker characterization of Agrobacterium rhizogenes strains and plasmids
菌株/质粒
Strains/plasmid抗性标记
Resistant markerAr Qual 链霉素(Strep) MSU440 链霉素(Strep) K599 链霉素(Strep) 35S::RUBY 壮观霉素(Spec) -
在超净工作台中,将种子置于体积分数75%乙醇浸泡1 min,随后在体积分数15% NaClO溶液中摇晃浸泡15 min,完成表面消毒。无菌水冲洗种子3~5次,随即接种于MS固体培养基上,28℃暗培养5 d。后移至(24±2)℃、光周期为L︰D=16 h︰8 h的生长室进行培养。待辣椒苗的子叶充分展开、生长点露出后,即获得无菌苗。
-
取出发根农杆菌感受态细胞,冰上融化,每100 µL感受态加入1 µg 35S::RUBY质粒,混匀,依次于冰上静置5 min,液氮5 min,37℃水浴5 min,冰上放置5 min。室温下加入700 µL无抗生素的TY液体培养基,220 r·min−1振荡培养2 h。
6000 rpm离心1 min,弃上清,重悬菌体,涂布于含有50 µg·mL−1 spec抗生素的TY平板上,28℃倒置培养2~3 d。挑取单克隆置于含spec抗生素的TY液体培养基中过夜振荡培养。基于载体序列设计RUBY引物(F: 5’-GACAGCCGAGACAGACCAAA-3’,R: 5’-TCCCAGGAGGAGTGGATCAG-3’)对菌液进行PCR扩增,得到441 bp条带的为阳性克隆,用50%甘油低温保存。 -
取20 µL甘油保存的阳性克隆菌液,接种于5 mL LB液体培养基(含100 µg· mL−1 spec),220 r·min−1振荡培养20 h,按照1︰200比例加入100 mL LB液体培养基(含100 µg·mL−1 spec)中培养24 h。将所得菌液以
6000 r·min−1离心10 min,弃上清,重悬于液体MS培养基中(含100 µmol·L AS),室温静置3 h,得到农杆菌侵染液。 -
选取两叶一心无菌苗,于子叶节下方2~3 cm处切除根系。本研究采用单因素试验,依次优化发根农杆菌菌株、菌液OD600(0.2、0.4、0.6)、侵染时间(10、20、30 min)、共培养时间(1、2、3 d)。开展某一因素优化时,其余固定参数参考茄科作物毛状根相关文献[15-16],并结合本实验前期预实验结果设置,基础固定条件为OD600=0.4,侵染时间20 min,共培养2 d。将去根苗浸泡在农杆菌侵染液中10、20、30 min,用无菌滤纸吸干去根苗表面菌液,转移至MS共培养培养基(含100 µM AS),室温暗培养1~3 d。共培养结束后,用无菌水清洗5-6次,无菌滤纸吸干去根苗表面水分,转移至毛状根诱导培养基(MS+100 µmol·L AS+400 mg·L−1特美汀),20 d后统计毛状根诱导效率。
$$ \begin{split} &毛状根诱导率=\\&(发根外植体数/侵染外植体数)\times 100\% ; \end{split} $$ $$\begin{split} &毛状根阳性率=\\&(红色毛状根外植体数/发根外植体数)\times 100\% 。 \end{split} $$ -
选取毛状根,使用Aidlab New Type Plant DNA试剂盒(DN15)提取DNA。利用基于质粒序列设计的引物进行PCR扩增。rolB引物(F: 5’-ACTATAGCAAACCCCTCCTGC-3’,R: 5’-TTCAGGTTTACTGCAGCAGGC-3’),扩增出652 bp条带的样本,可确定为毛状根。RUBY引物同1.2.2,能扩增出441 bp条带的样本,可确认为转入了35S::RUBY载体的阳性毛状根。
-
每个处理设置3次生物学重复,每次生物学重复不少于30个外植体。采用Excel 2021整理原始试验数据,采用IBM SPSS Statistics 26对辣椒不同外植体毛状根诱导率、毛状根阳性率数据进行单因素方差分析(ANOVA),并采用Duncan多重比较法进行组间差异显著性检验(以P<0.05作为差异显著判断阈值)。
-
利用发根农杆菌菌液浸泡法侵染幼苗诱导毛状根,主要流程如图1所示。去根幼苗与发根农杆菌菌液共培养后,侵染位点可见显著膨大(图1-A);转至发根诱导培养基10 d后,切口处开始形成毛状根(图1-B);继续生长至20 d,子叶也观察到有肉眼明显可见的红色毛状根(图1-C)。
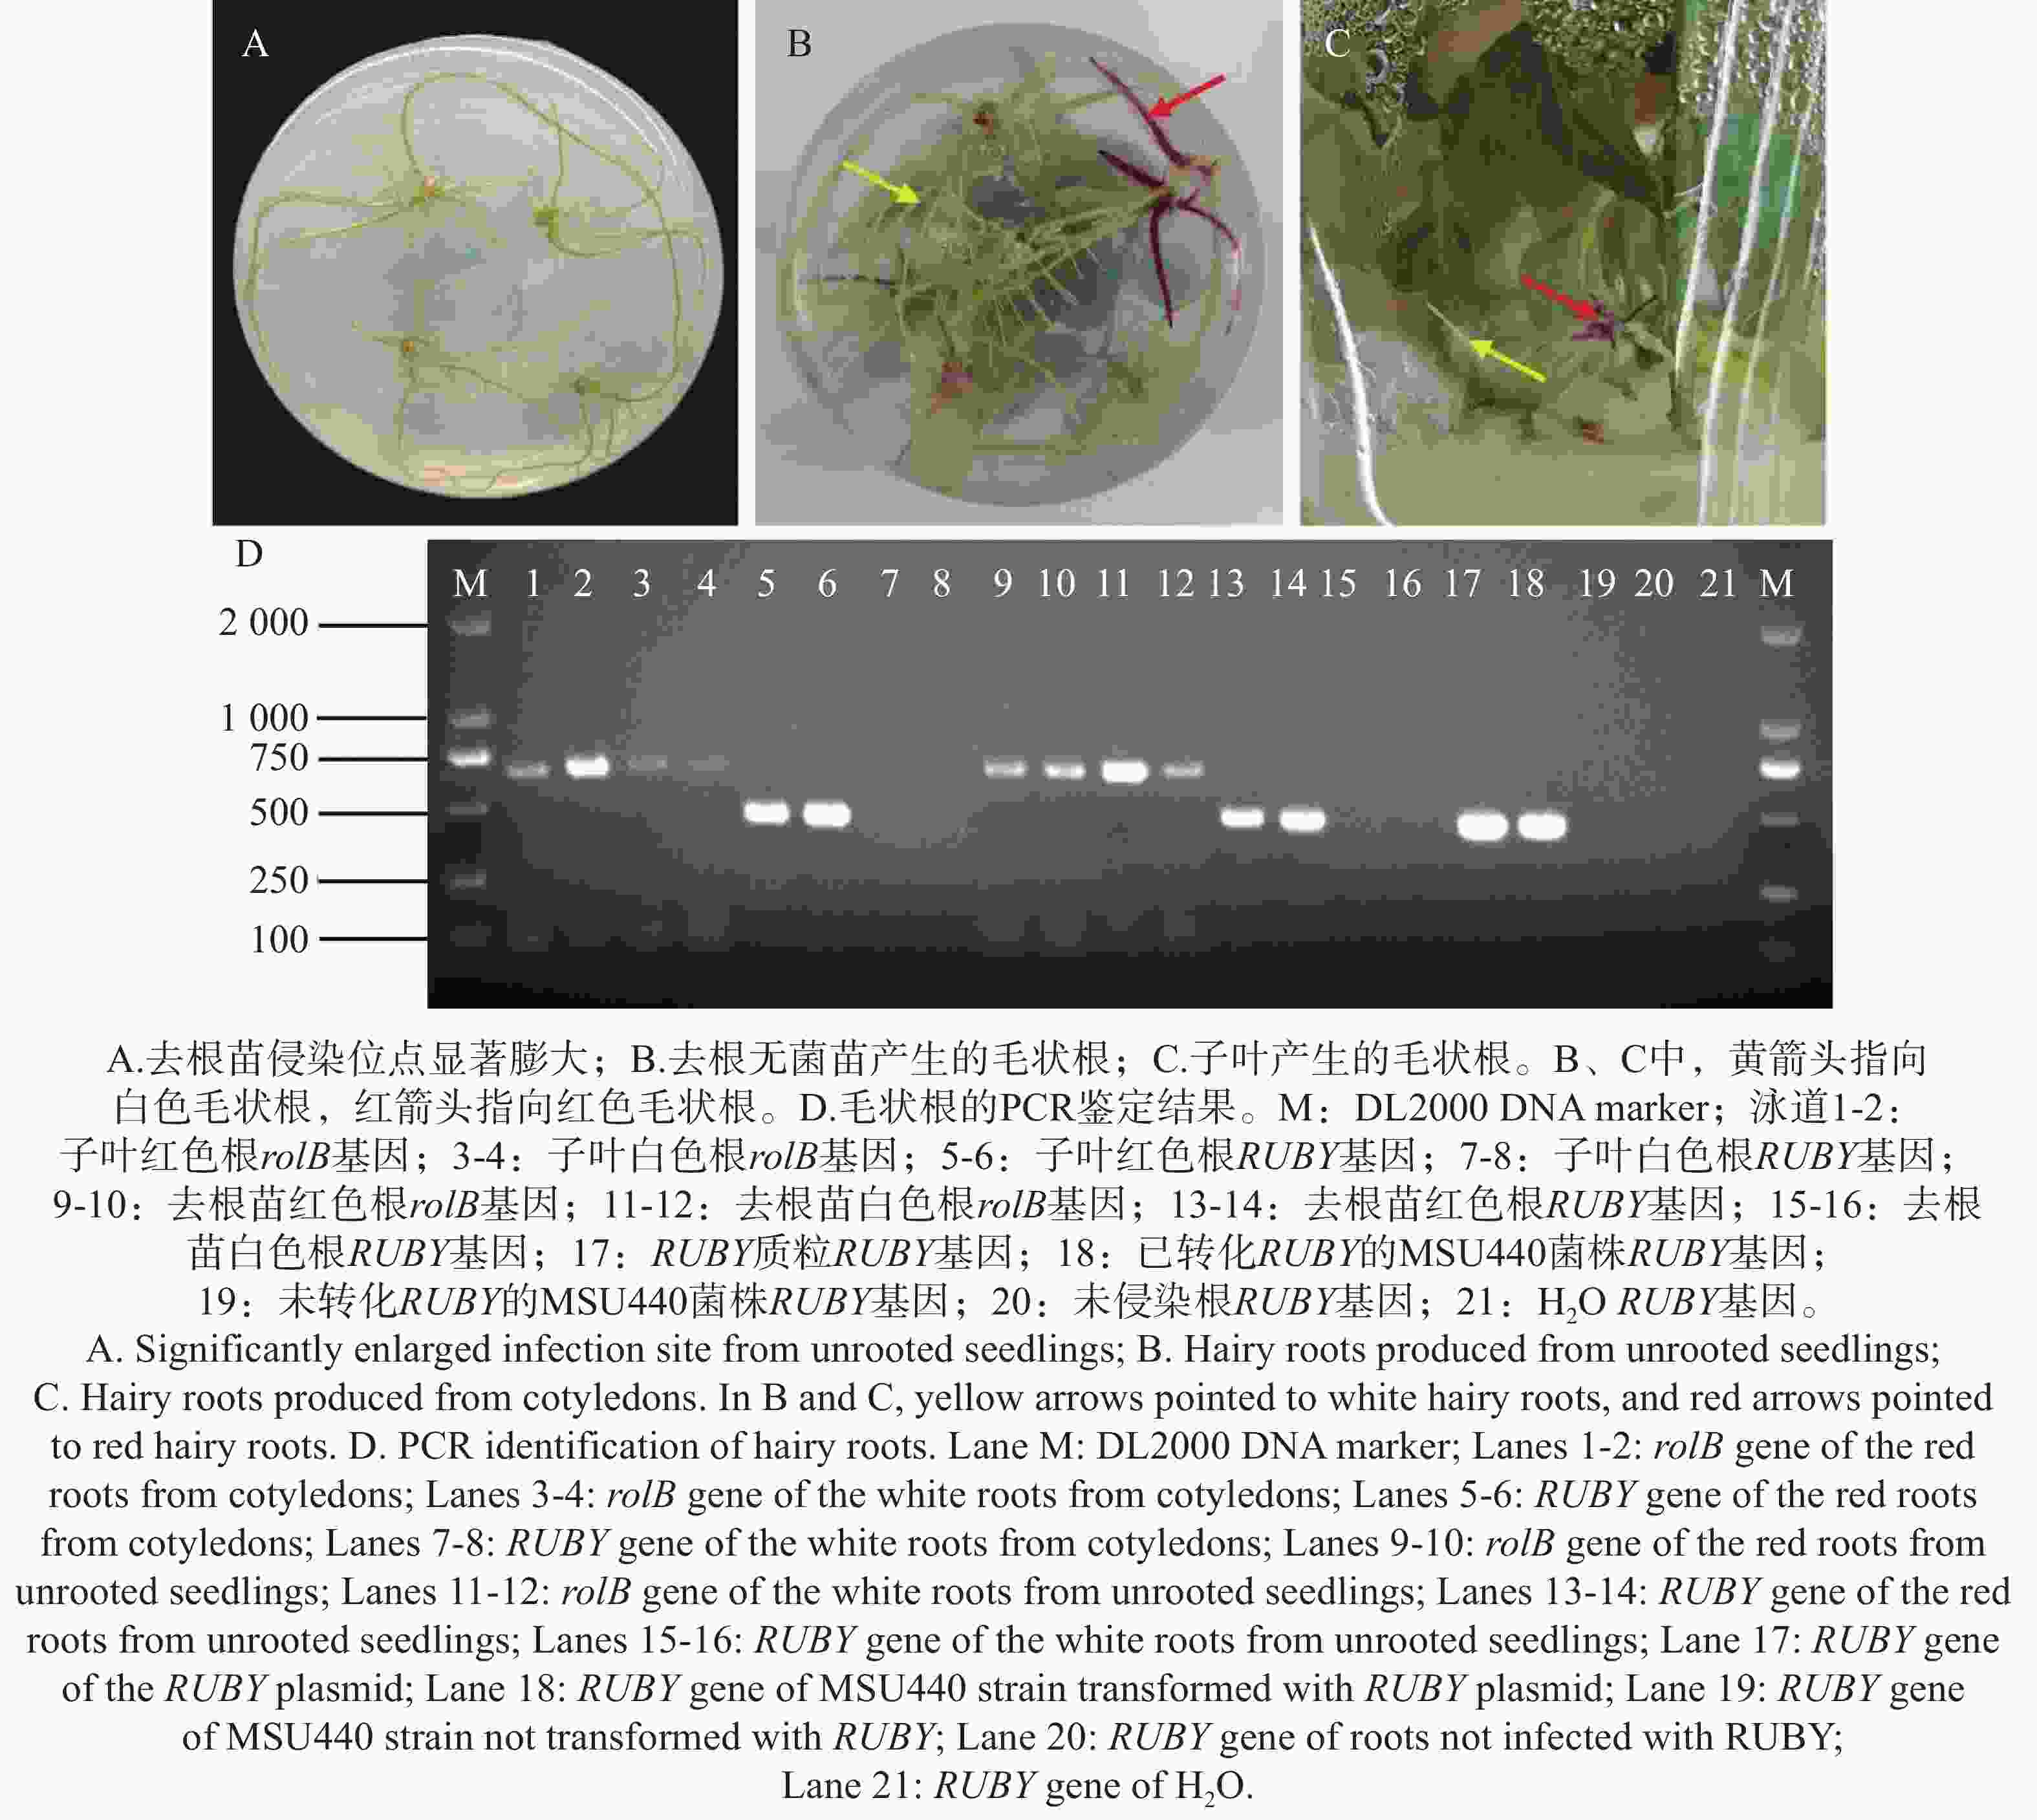
图 1 辣椒毛状根遗传转化体系的建立
Figure 1. Construction of the hairy roots genetic transformation system of pepper
分别提取去根苗和子叶的毛状根DNA进行PCR检测,以转入35S::RUBY质粒的MSU440菌株作为阳性对照,以未侵染的根系、未转入35S::RUBY质粒的MSU440菌株和H2O作为阴性对照(图1-D)。结果显示,检测的红色与白色根系均能扩增出652 bp的rolB基因片段,提示长出的根系均为发根农杆菌侵染导致的毛状根。而红色毛状根能扩增出441 bp的RUBY基因片段,白色毛状根却无法扩增出该基因片段,说明毛状根显示出来的红色可以作为遗传转化成功的标志。
-
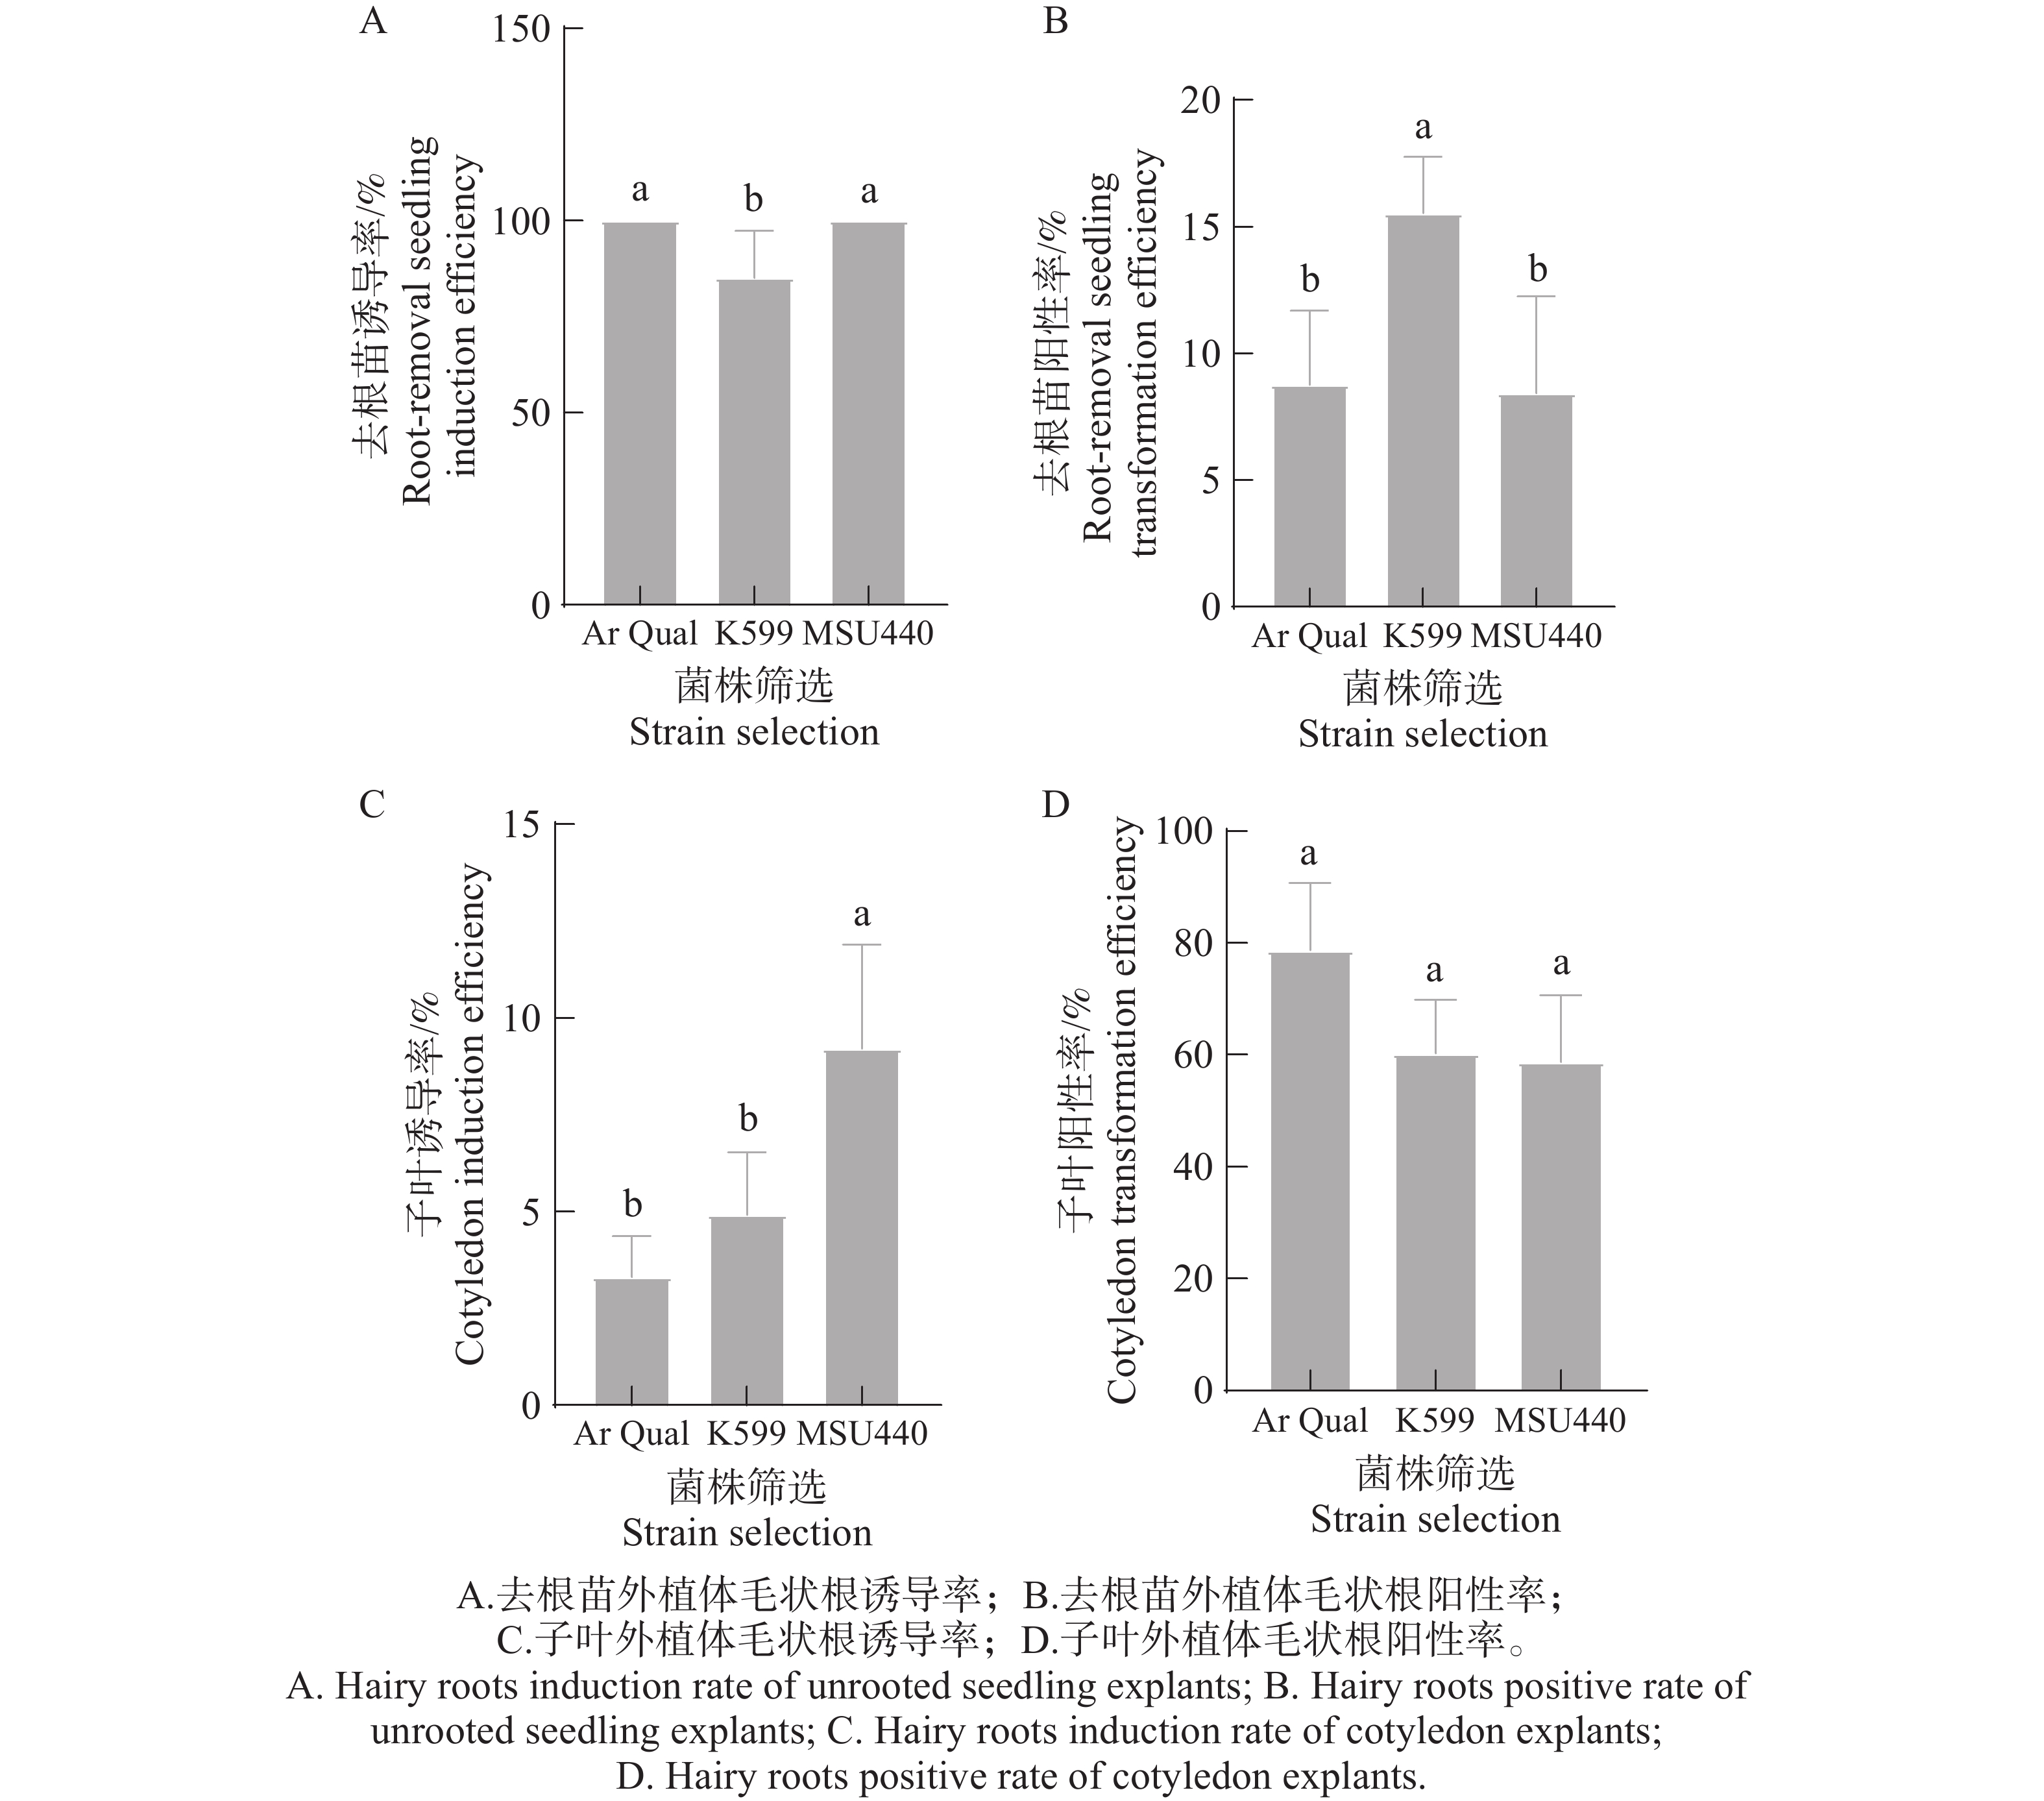
在菌液OD600=0.4、侵染时间30 min、培养时间2 d的条件下,比较Ar Qual、K599、MSU440发根农杆菌对2种外植体的转化效果,得出不同发根农杆菌菌株对辣椒毛状根的诱导和转化效率均存在一定差异(图2)。在去根苗的毛状根诱导率方面,Ar Qual与MSU440菌株的诱导率皆为100%,显著高于K599的85.16%(图2-A)。然而,从毛状根遗传转化效率方面来看,K599的阳性率(15.53%)显著高于Ar Qual(8.76%)和MSU440(8.43%)(图2-B)。综合诱导率和阳性率数据,可以推断K599菌株比较适合用于辣椒去根苗的毛状根遗传转化试验。
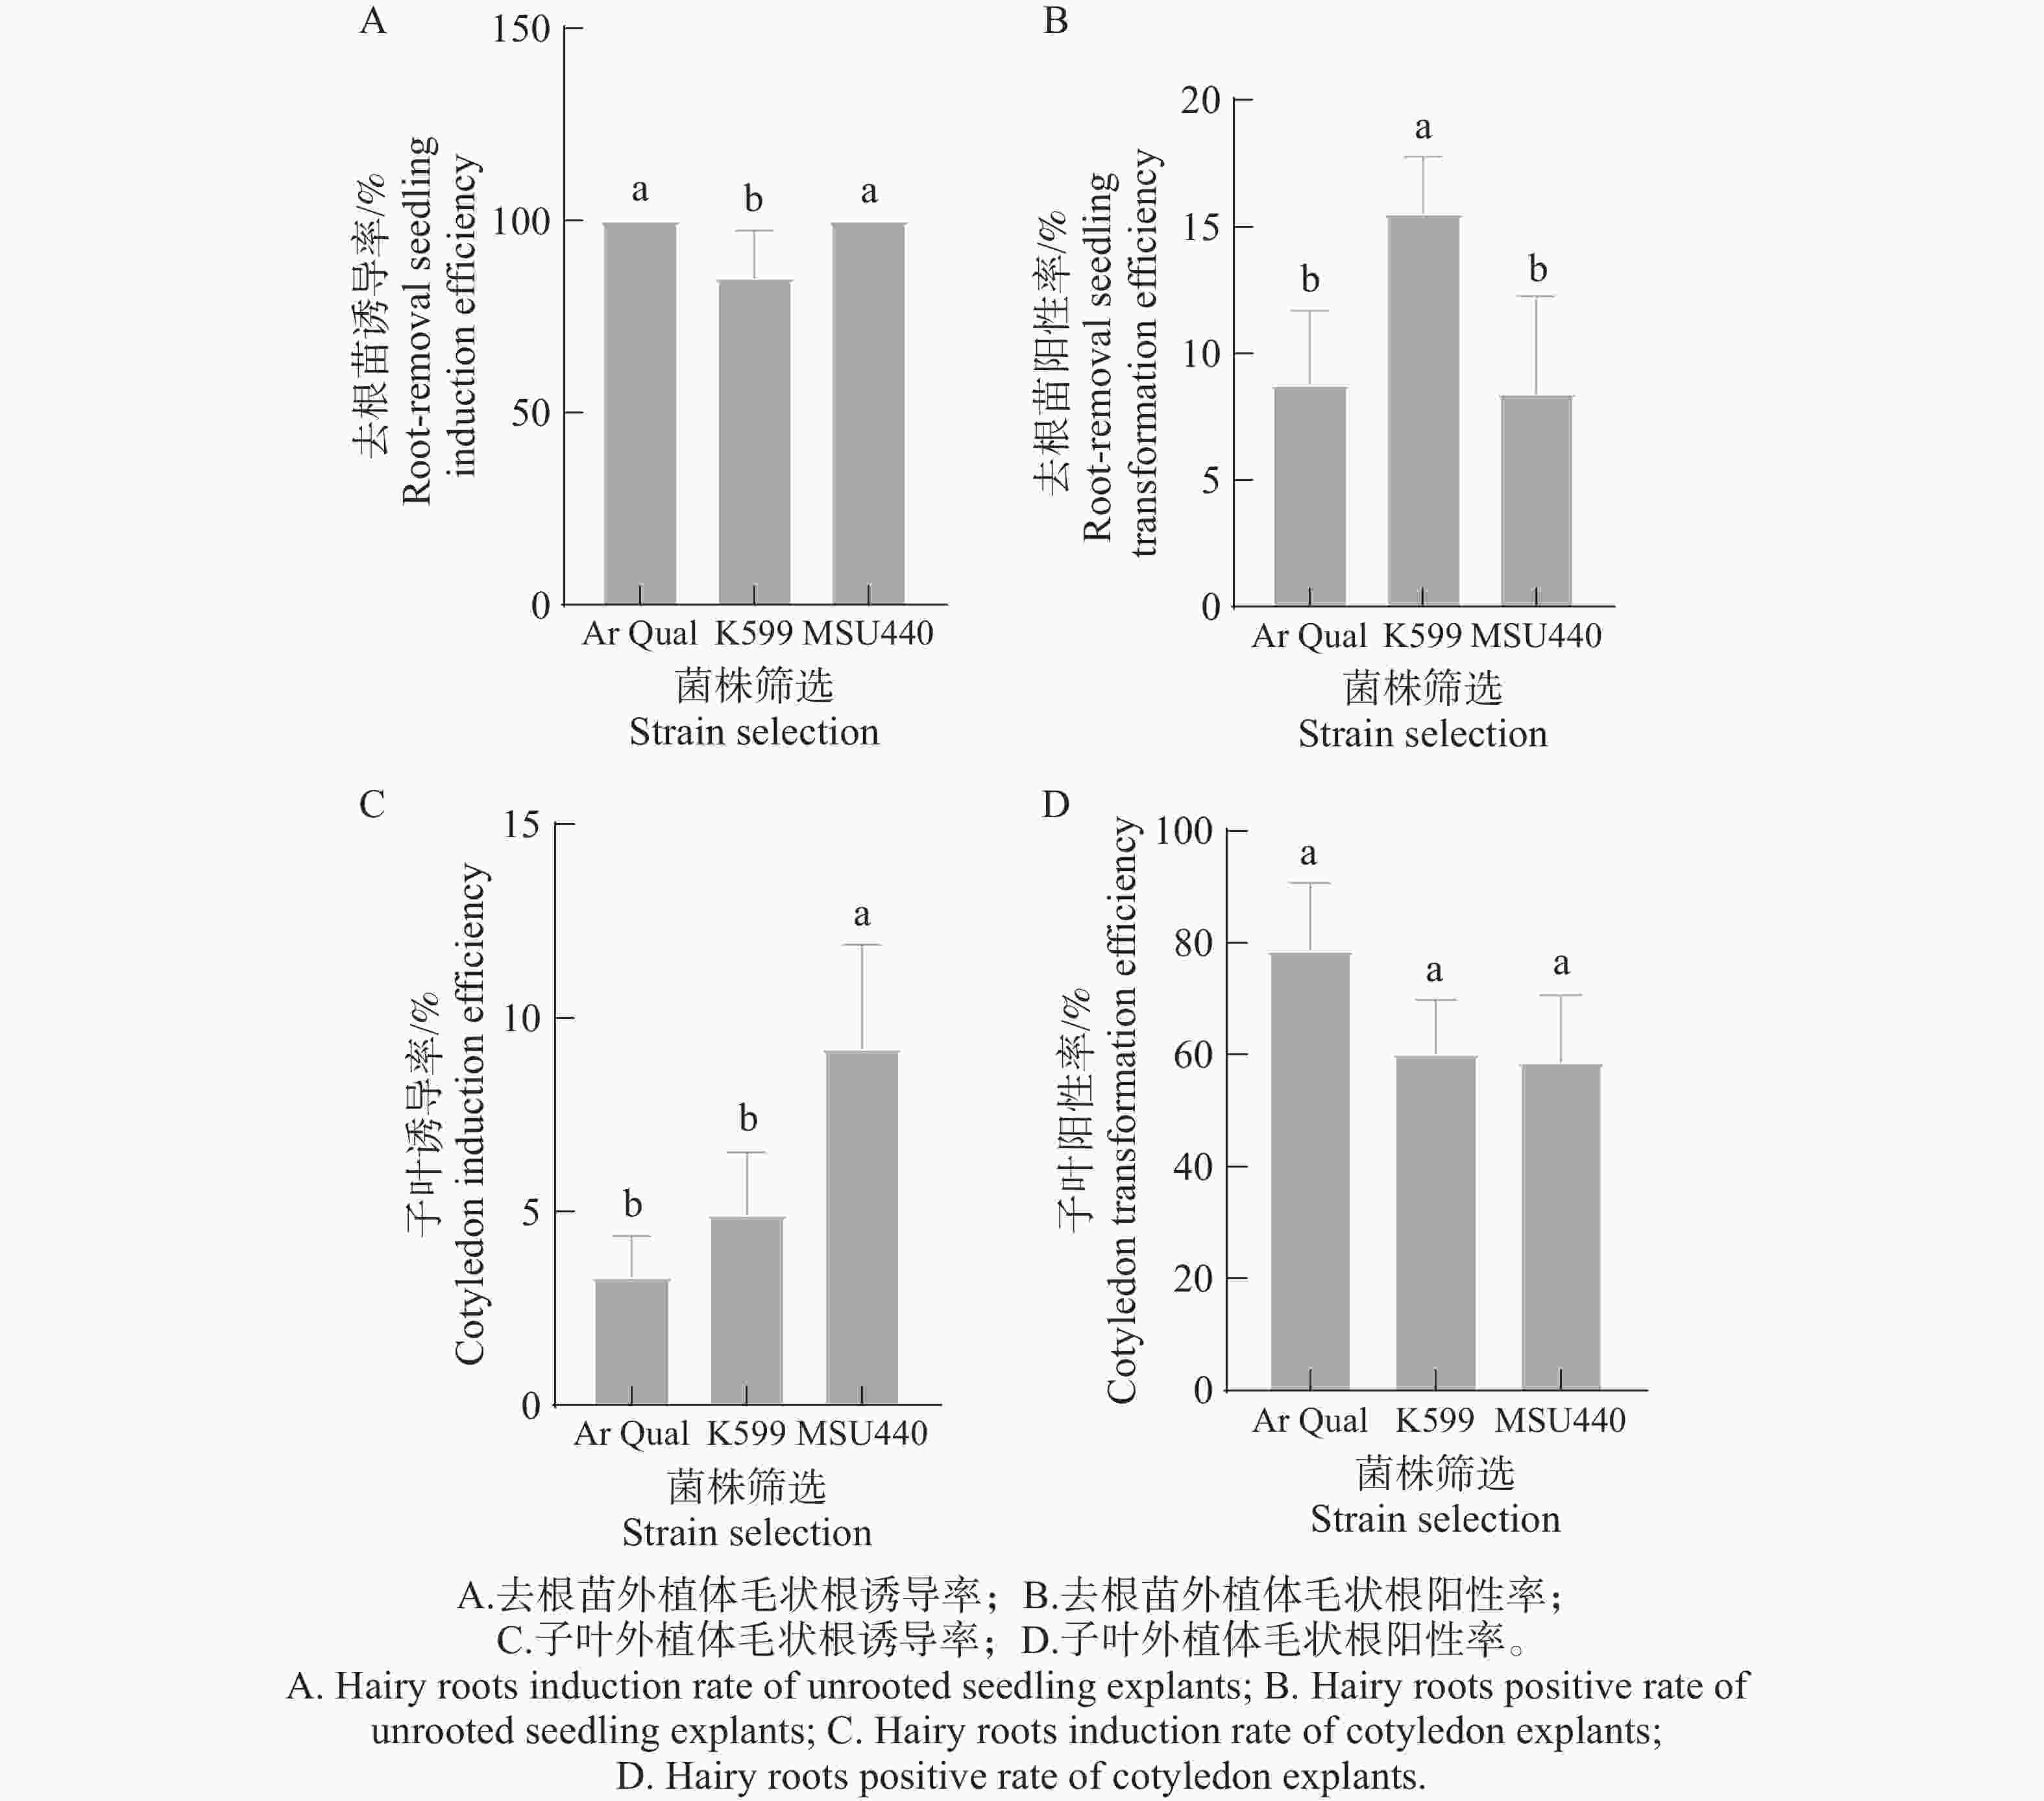
图 2 不同农杆菌菌株对辣椒外植体毛状根诱导率和转化阳性率的影响
Figure 2. Effects of different Agrobacterium strains on hairy roots induction rate and transformation positive rate of pepper explants
在子叶的毛状根诱导率方面,MSU440菌株的诱导率最高(9.21%),K599和Ar Qual的诱导率均低于5%,三者之间均存在显著差异(图2-C)。从毛状根遗传转化效率方面来看,Ar Qual的阳性率(78.70%)高于K599(60.32%)和MSU440(58.78%)(图2-D)。综合诱导率和阳性率数据,可以推断MSU440菌株比较适合用于子叶的毛状根遗传转化试验。
-
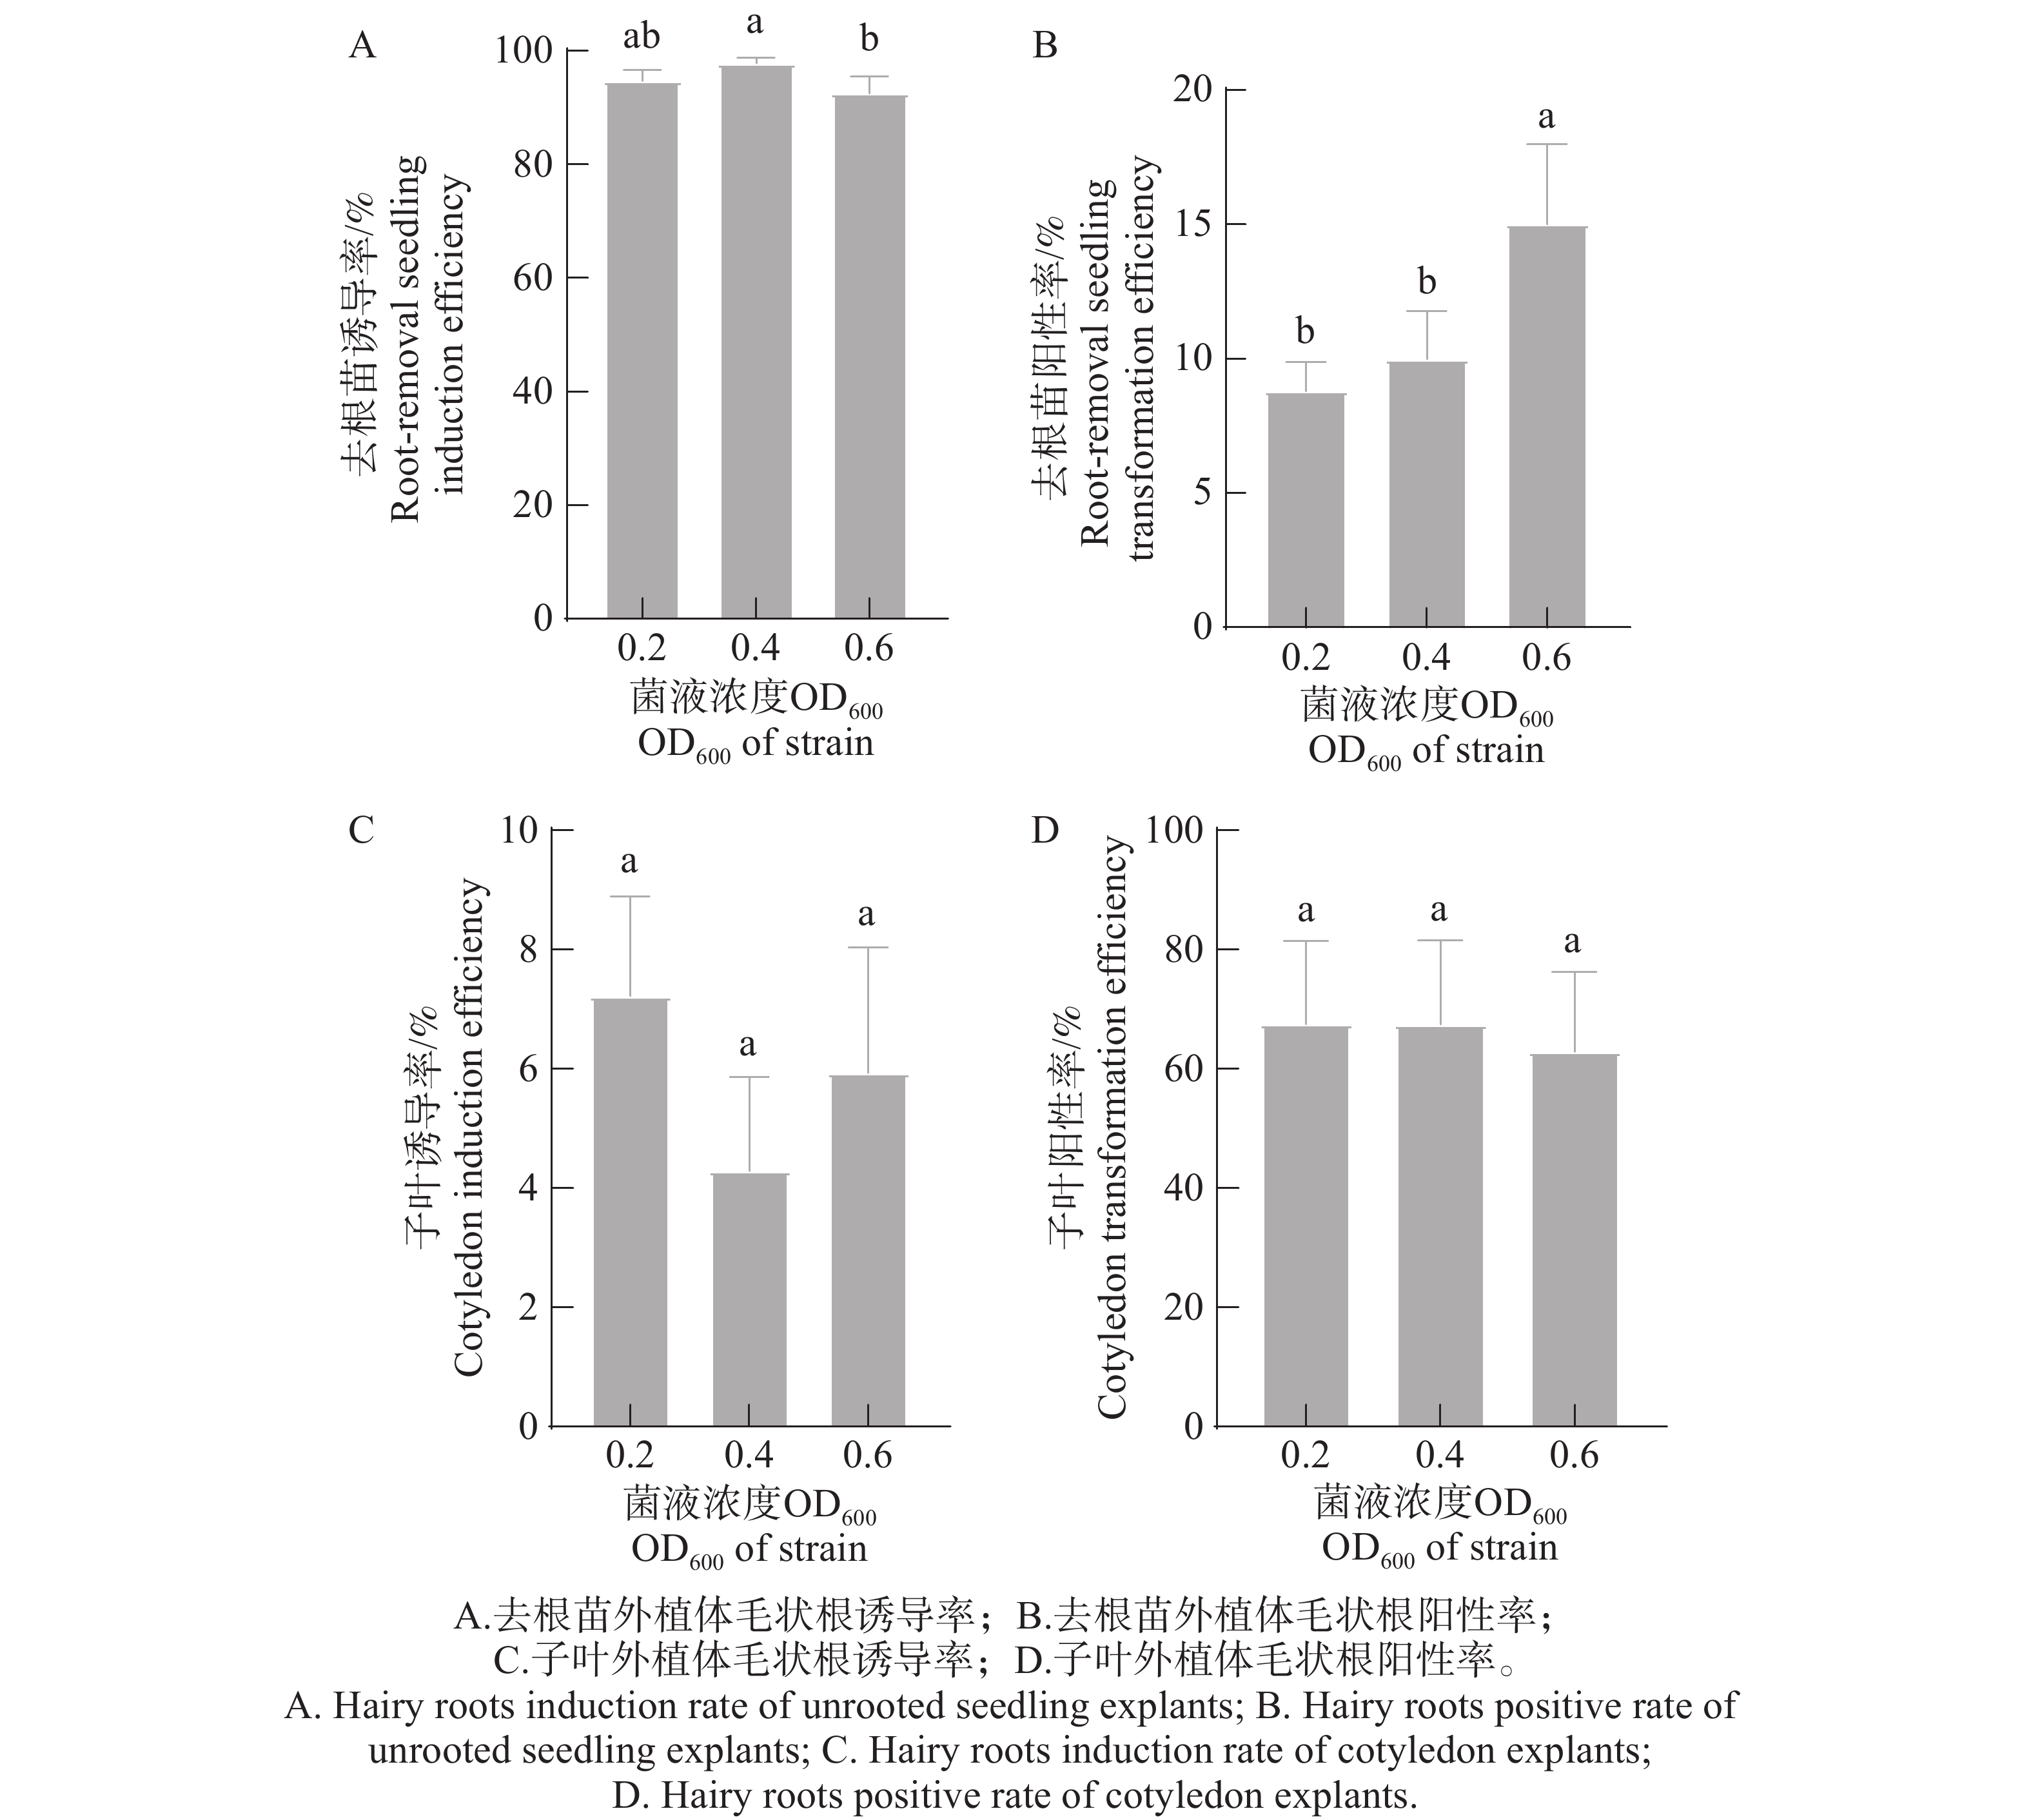
不同外植体选取各自最优菌株,设置菌液浓度OD600为0.2、0.4、0.6 3个梯度,得出不同菌液浓度对辣椒毛状根的诱导和转化效率均存在一定差异(图3)。在去根苗的毛状根诱导率方面,OD600为0.4的诱导率(97.87%)显著高于OD600为0.6(92.57%),OD600为0.2与二者差异不显著(图3-A)。然而,从毛状根转化效率方面来看,阳性率随菌液浓度升高呈上升趋势,其中OD600为0.6时阳性率最高(15.02%),显著高于OD600为0.2(8.79%)和0.4(9.99%)的阳性率(图3-B)。由此可见,OD600为0.6的菌液浓度比较适合用于去根苗的毛状根遗传转化试验。
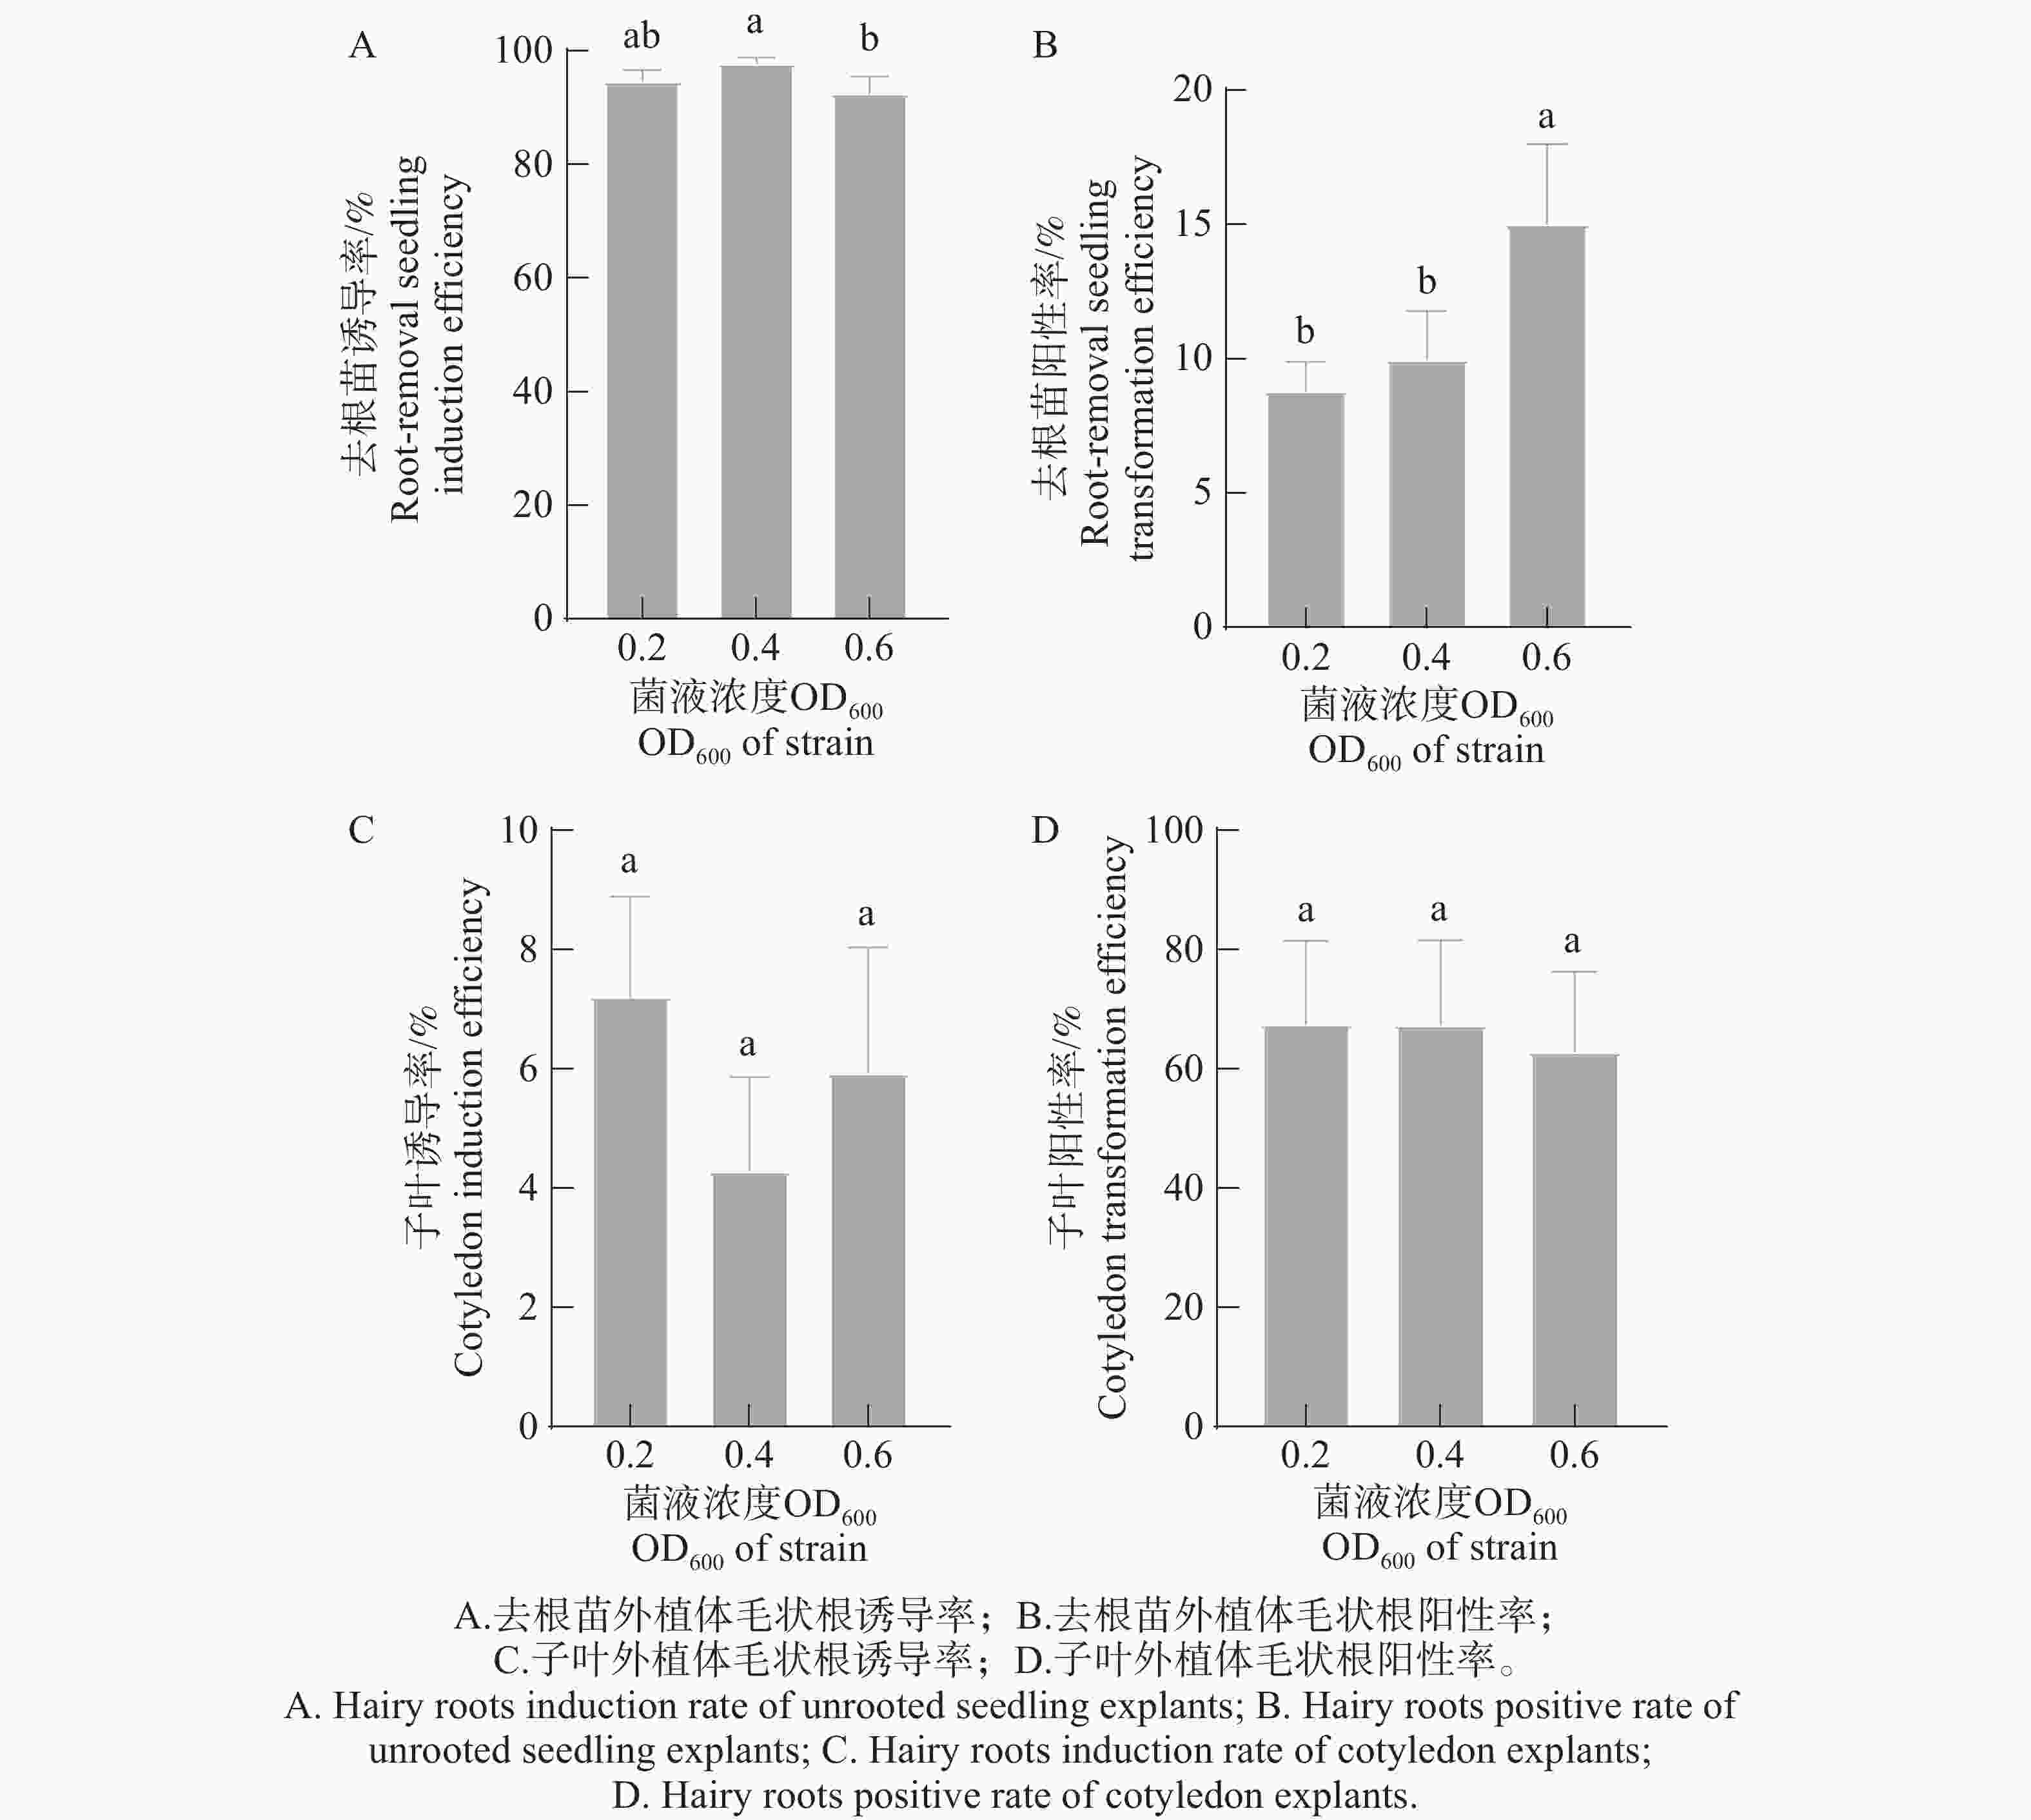
图 3 不同菌液浓度对辣椒外植体毛状根诱导率和转化阳性率的影响
Figure 3. Effects of different bacterial suspension concentrations on hairy roots induction rate and transformation positive rate of pepper explants
子叶的毛状根诱导率整体极低(<10%),仅在OD600为0.2浓度下略高,为7.22%(图3-C)。在阳性率检测中,3种浓度下的毛状根阳性率均维持在60%~70%,无显著差异(图3-D)。基于以上数据,OD600为0.2的菌液浓度比较适合用于子叶的毛状根遗传转化试验。
-
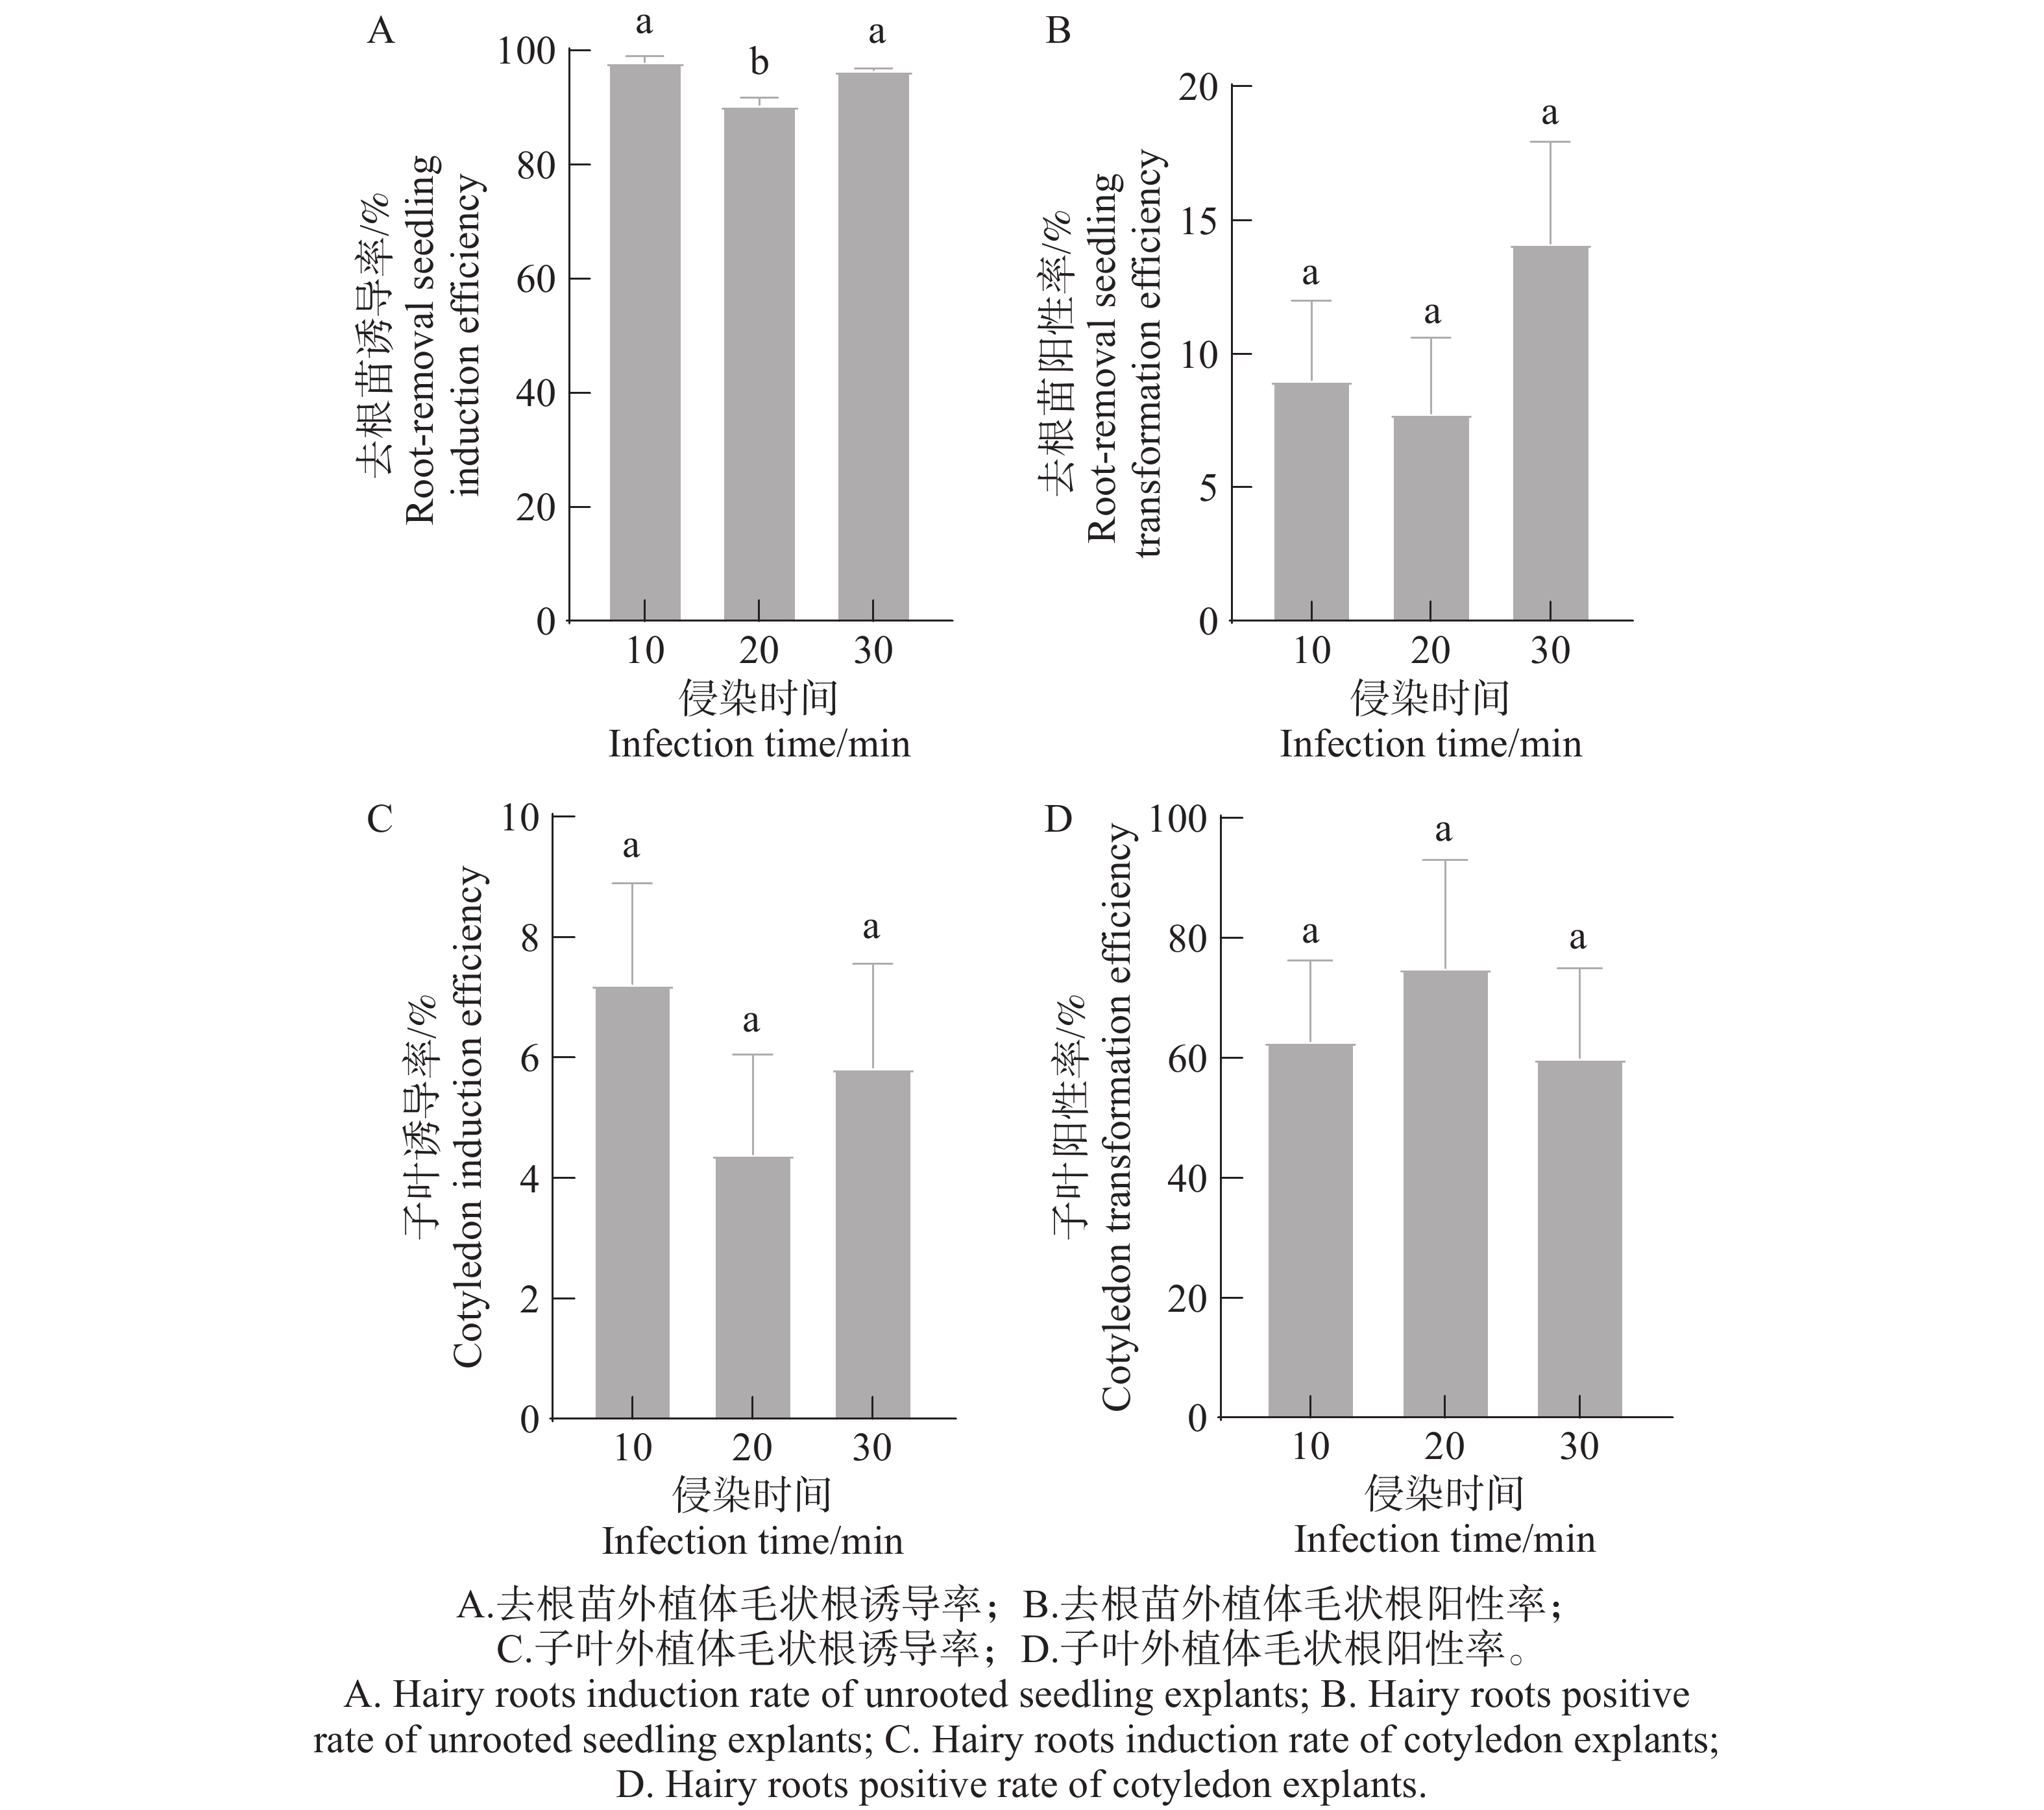
不同外植体选取各自最优菌株及菌液浓度,设置10、20、30 min 3个侵染时间梯度,得出不同侵染时间对辣椒毛状根的诱导和转化效率均存在一定差异(图4)。在去根苗的毛状根诱导率方面,侵染10 min(98.09%)与30 min(96.58%)的诱导率显著高于侵染20 min(90.50%)(图4-A);从毛状根转化效率方面来看,30 min的阳性率(14.11%)高于10 min(9.01%)和20 min(7.78%)(图4-B),但无显著差异。由此可见,侵染时间30 min比较适合用于去根苗的毛状根遗传转化试验。
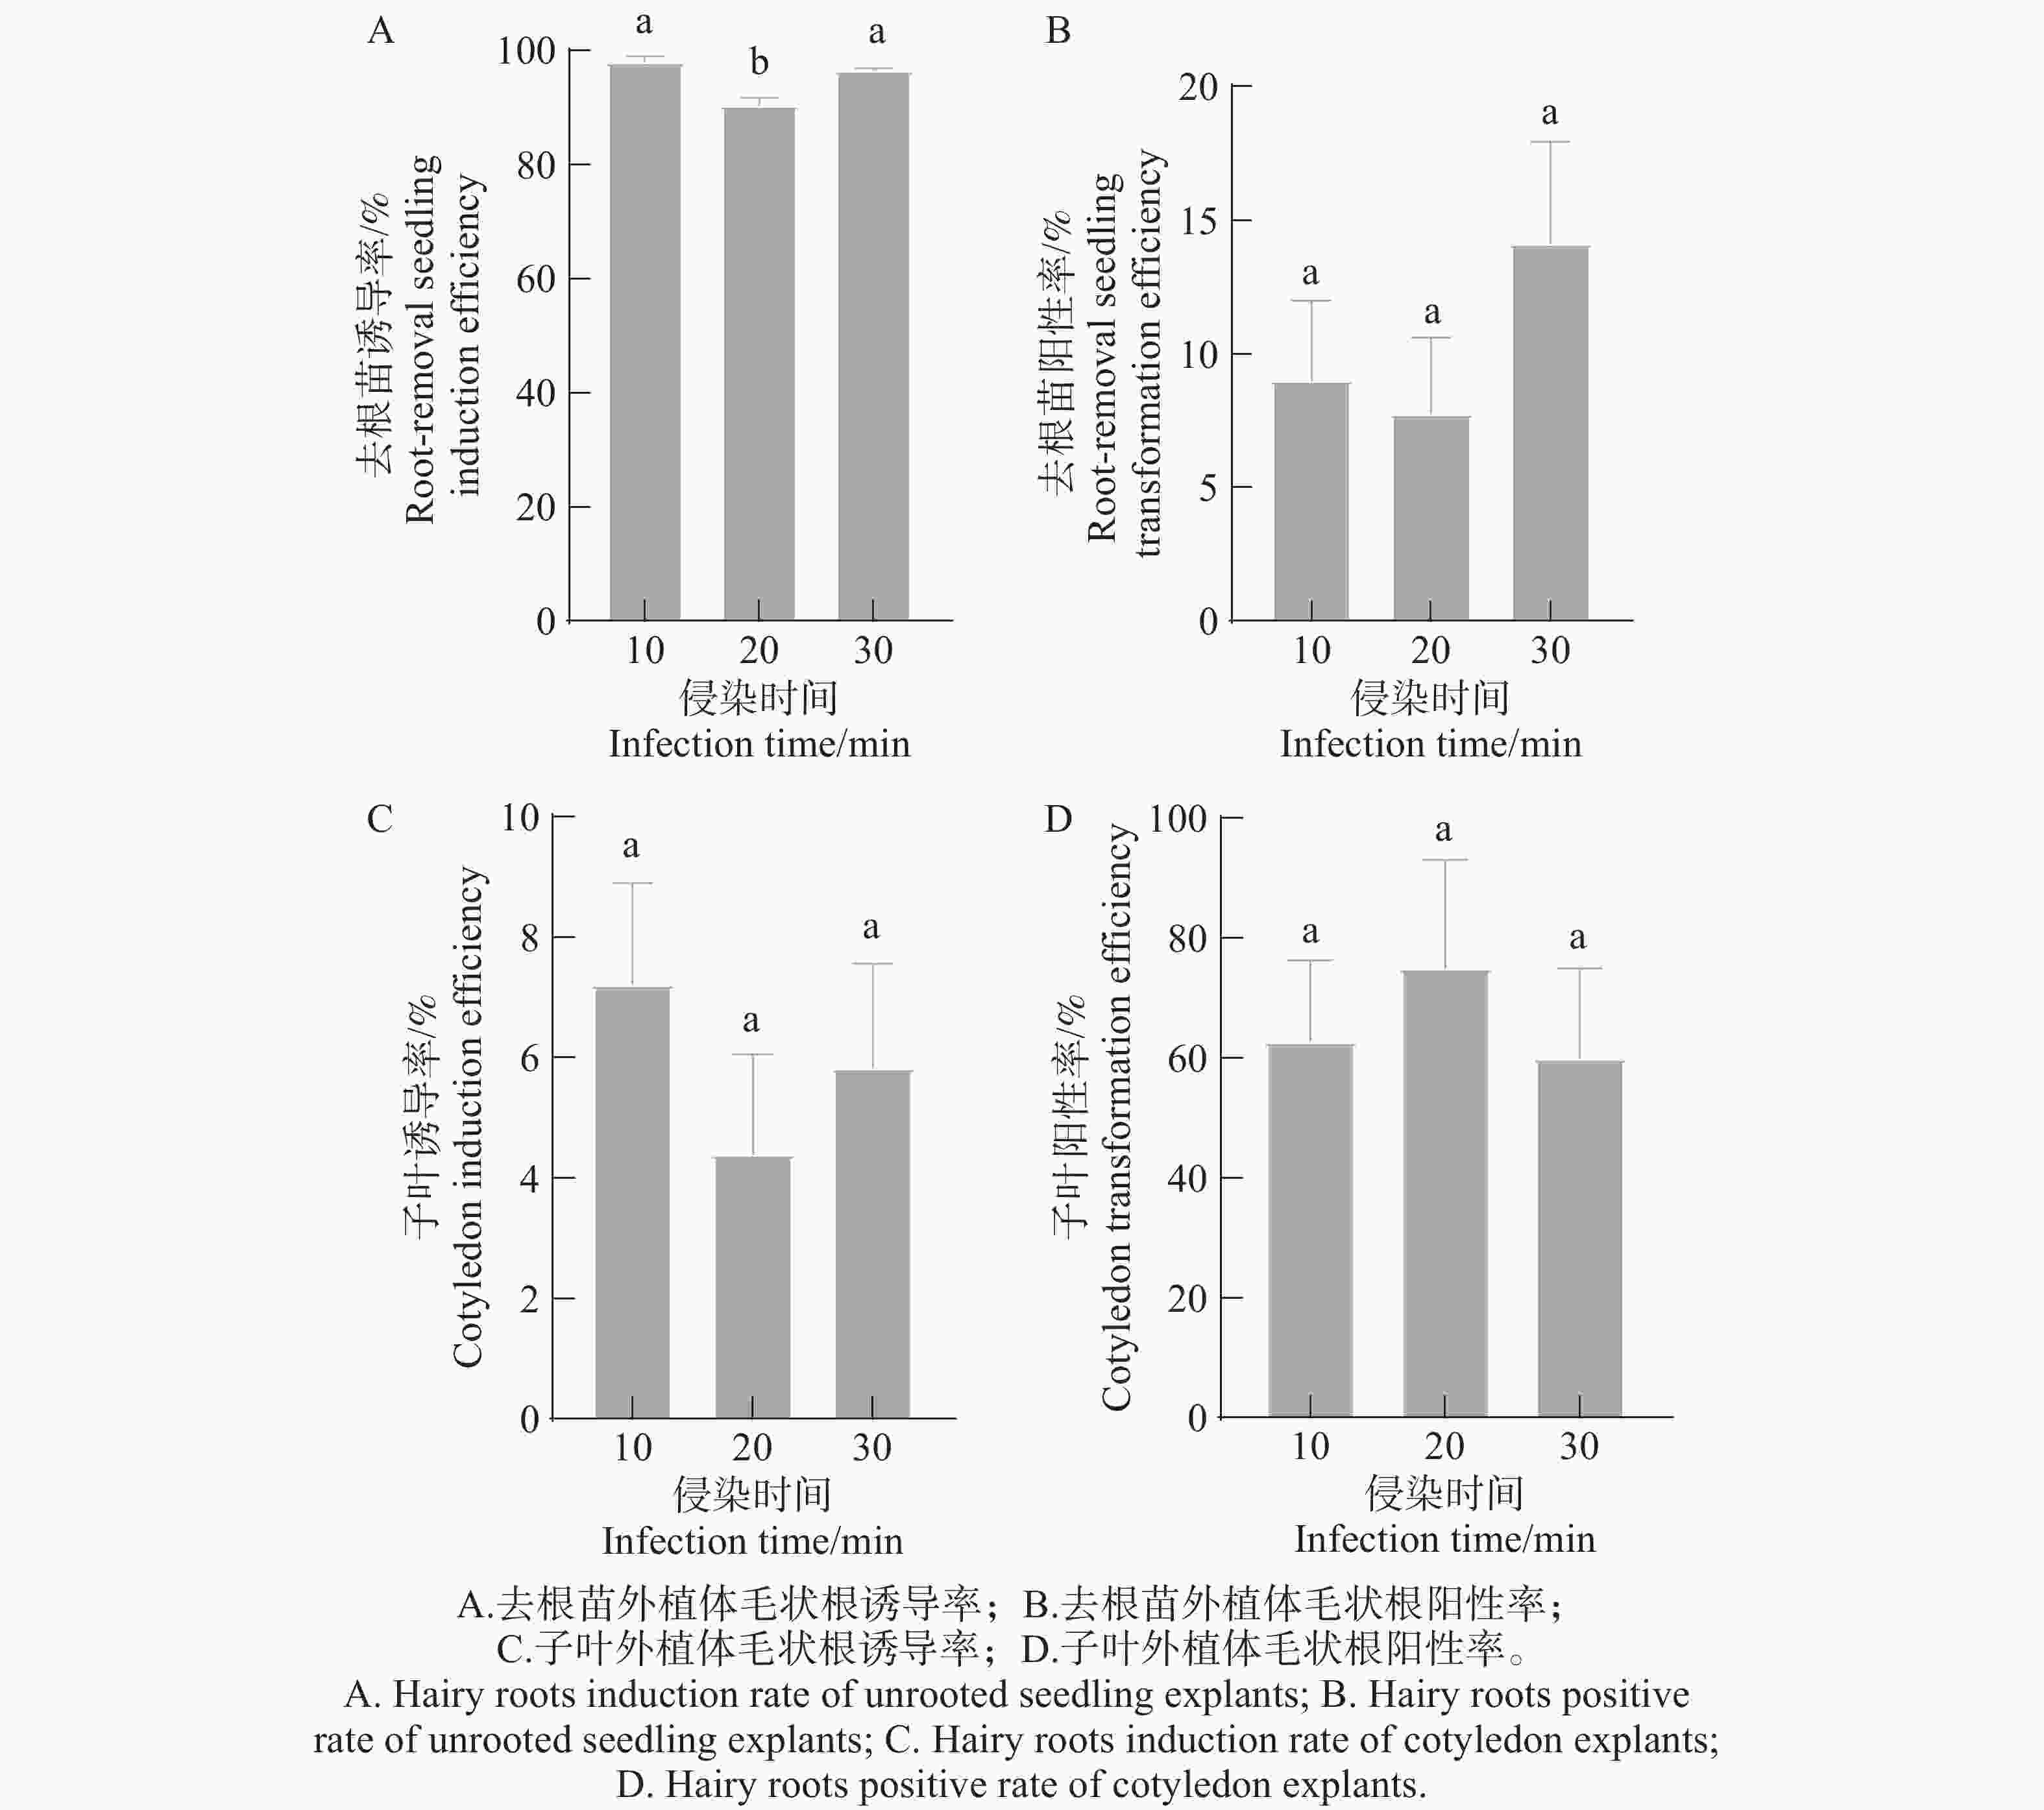
图 4 不同侵染时间对辣椒外植体毛状根诱导率和转化阳性率的影响
Figure 4. Effects of different infection time on hairy roots induction rate and transformation positive rate of pepper explants
在子叶的毛状根诱导率方面,整体维持在极低水平,各时间点之间也无显著差异(图4-C)。从毛状根转化效率方面来看,20 min的阳性率(75%)高于10 min(62.80%)和30 min(60%),但无显著差异(图4-D),基于诱导率和阳性率数据,侵染时间为10 min比较适合用于子叶的毛状根遗传转化试验。
-
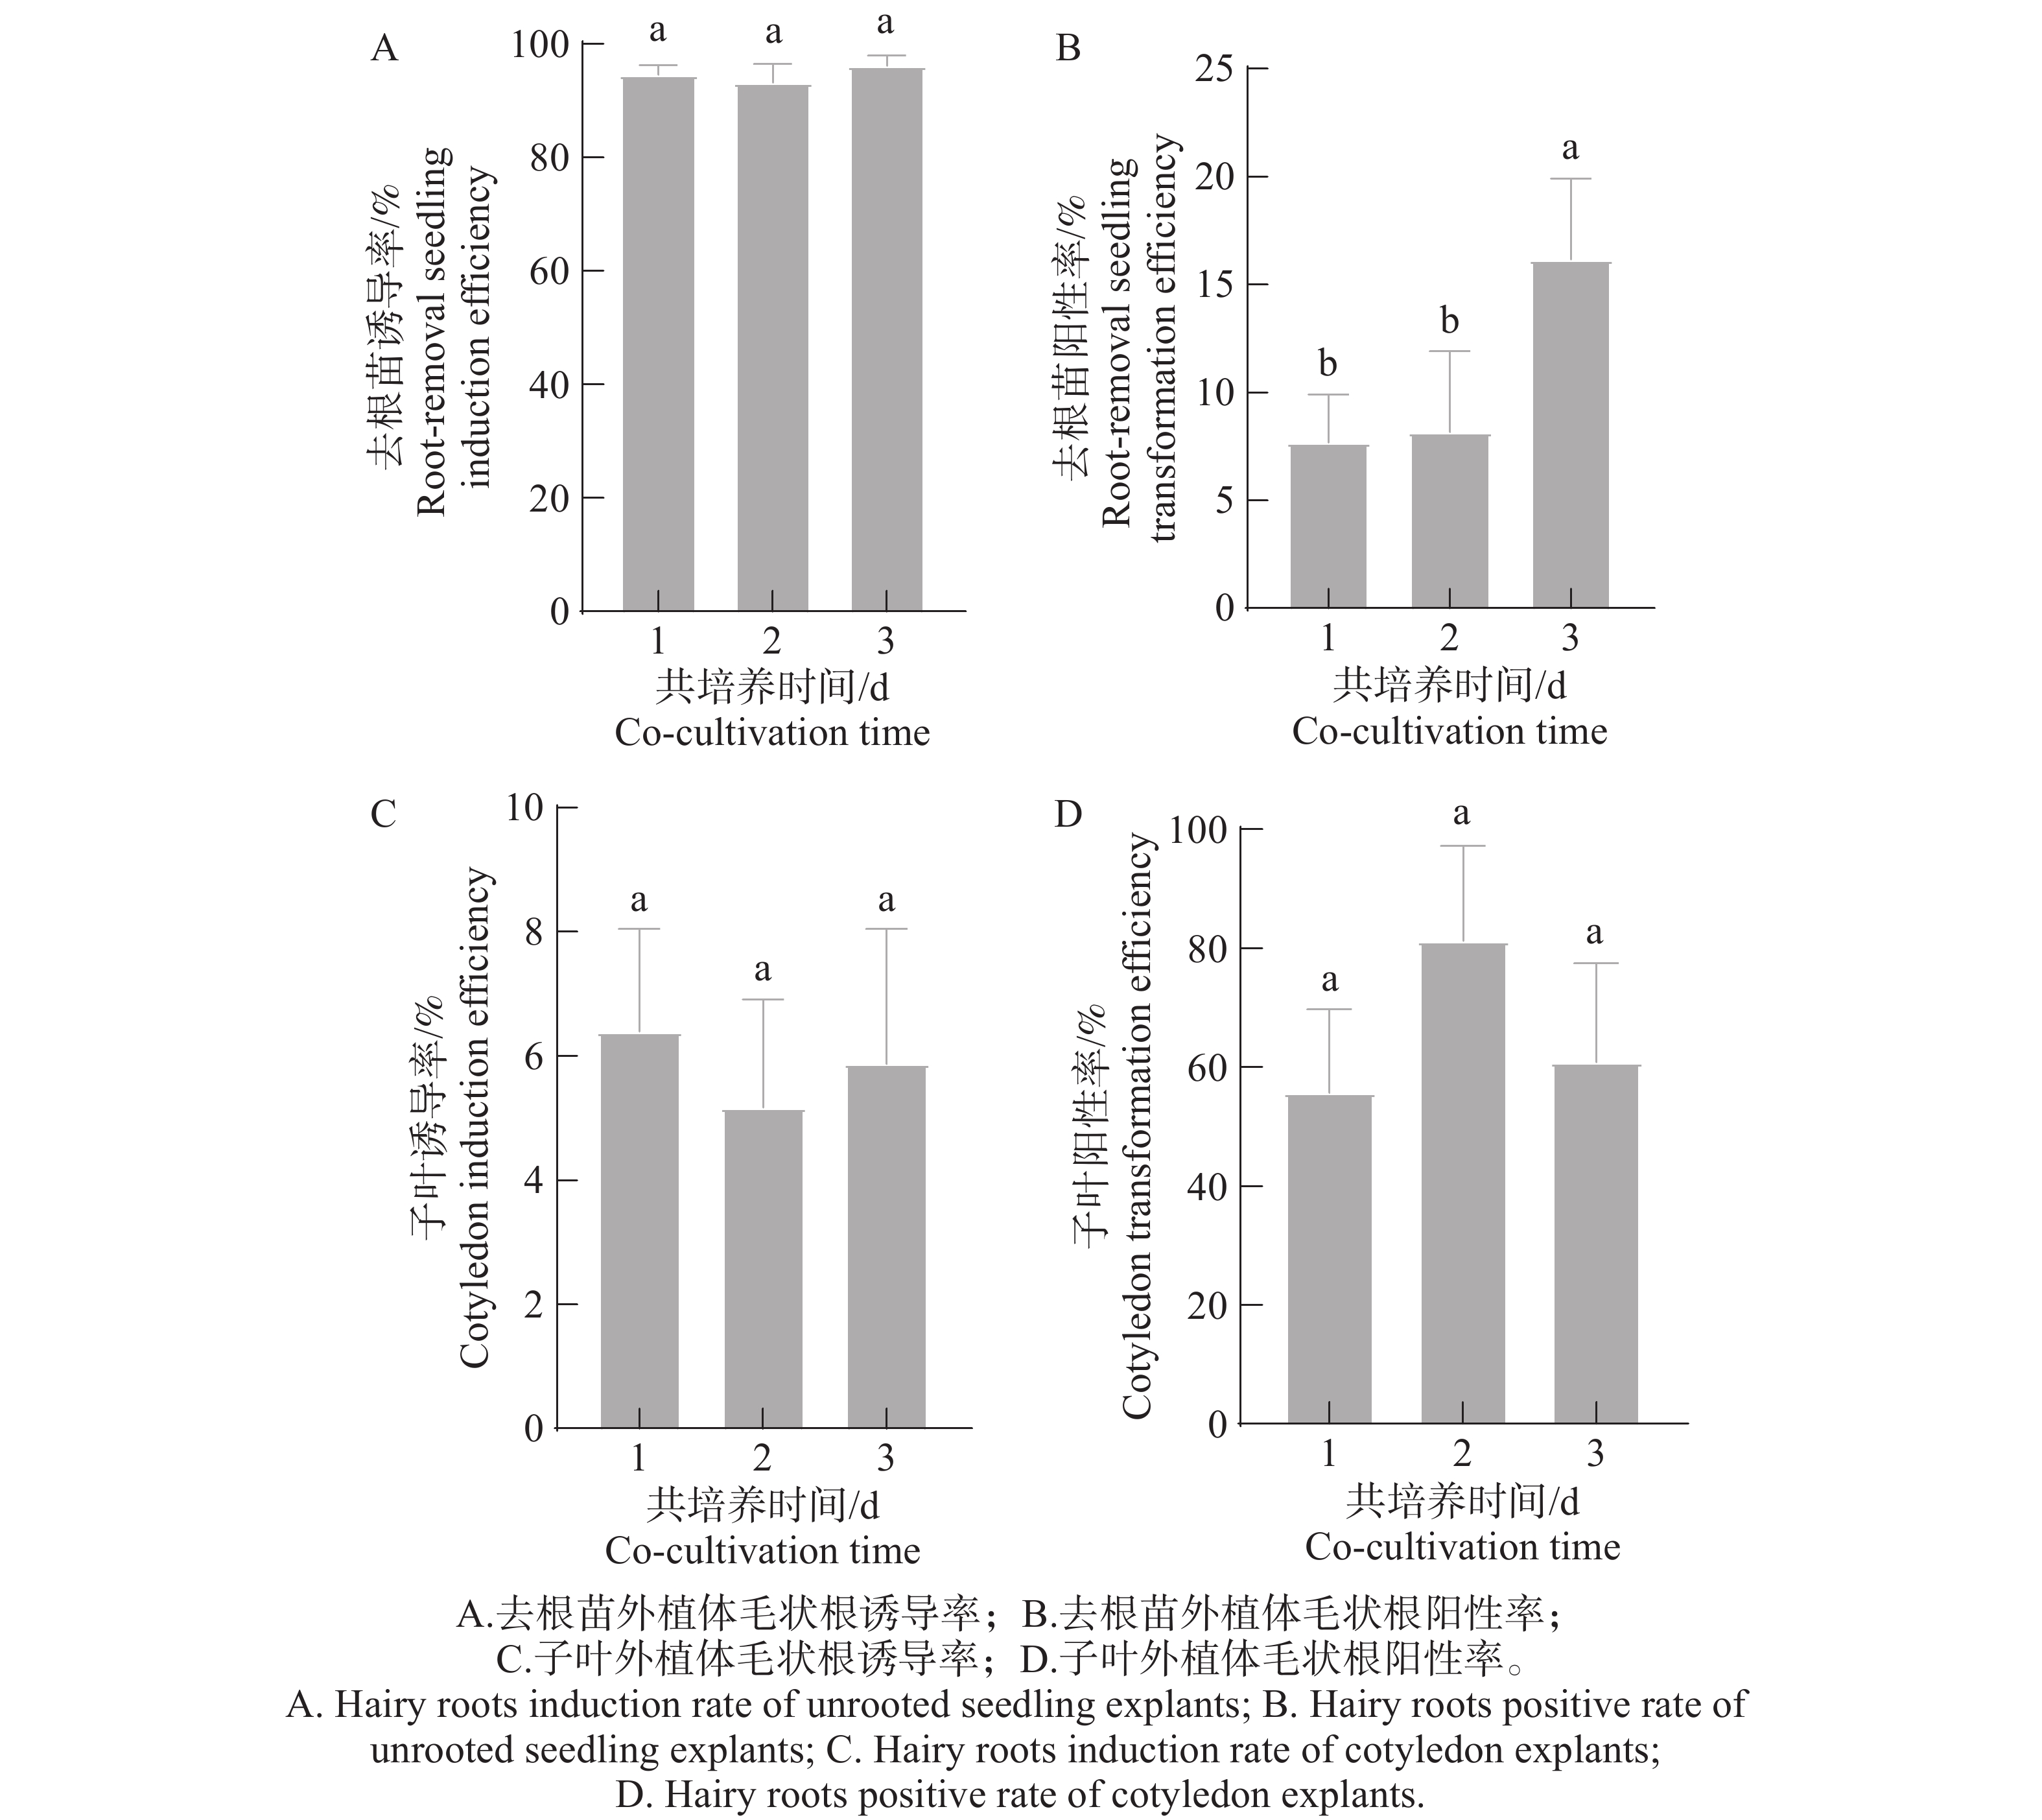
不同外植体选取各自最优菌株、菌液浓度和侵染时间,设置1、2、3 d 3个共培养时间梯度,得出不同共培养时间对辣椒毛状根的诱导和转化效率均存在一定差异(图5)。在去根苗的毛状根诱导率方面,3种共培养时间下的根诱导率均稳定在90%以上,无显著差异(图5-A);然而,从毛状根转化效率方面来看,共培养3 d时阳性率最高(16.16%),显著高于1 d(7.69%)和2 d(8.17%)(图5-B),由此可见,共培养3 d比较适合用于去根苗的毛状根遗传转化试验。
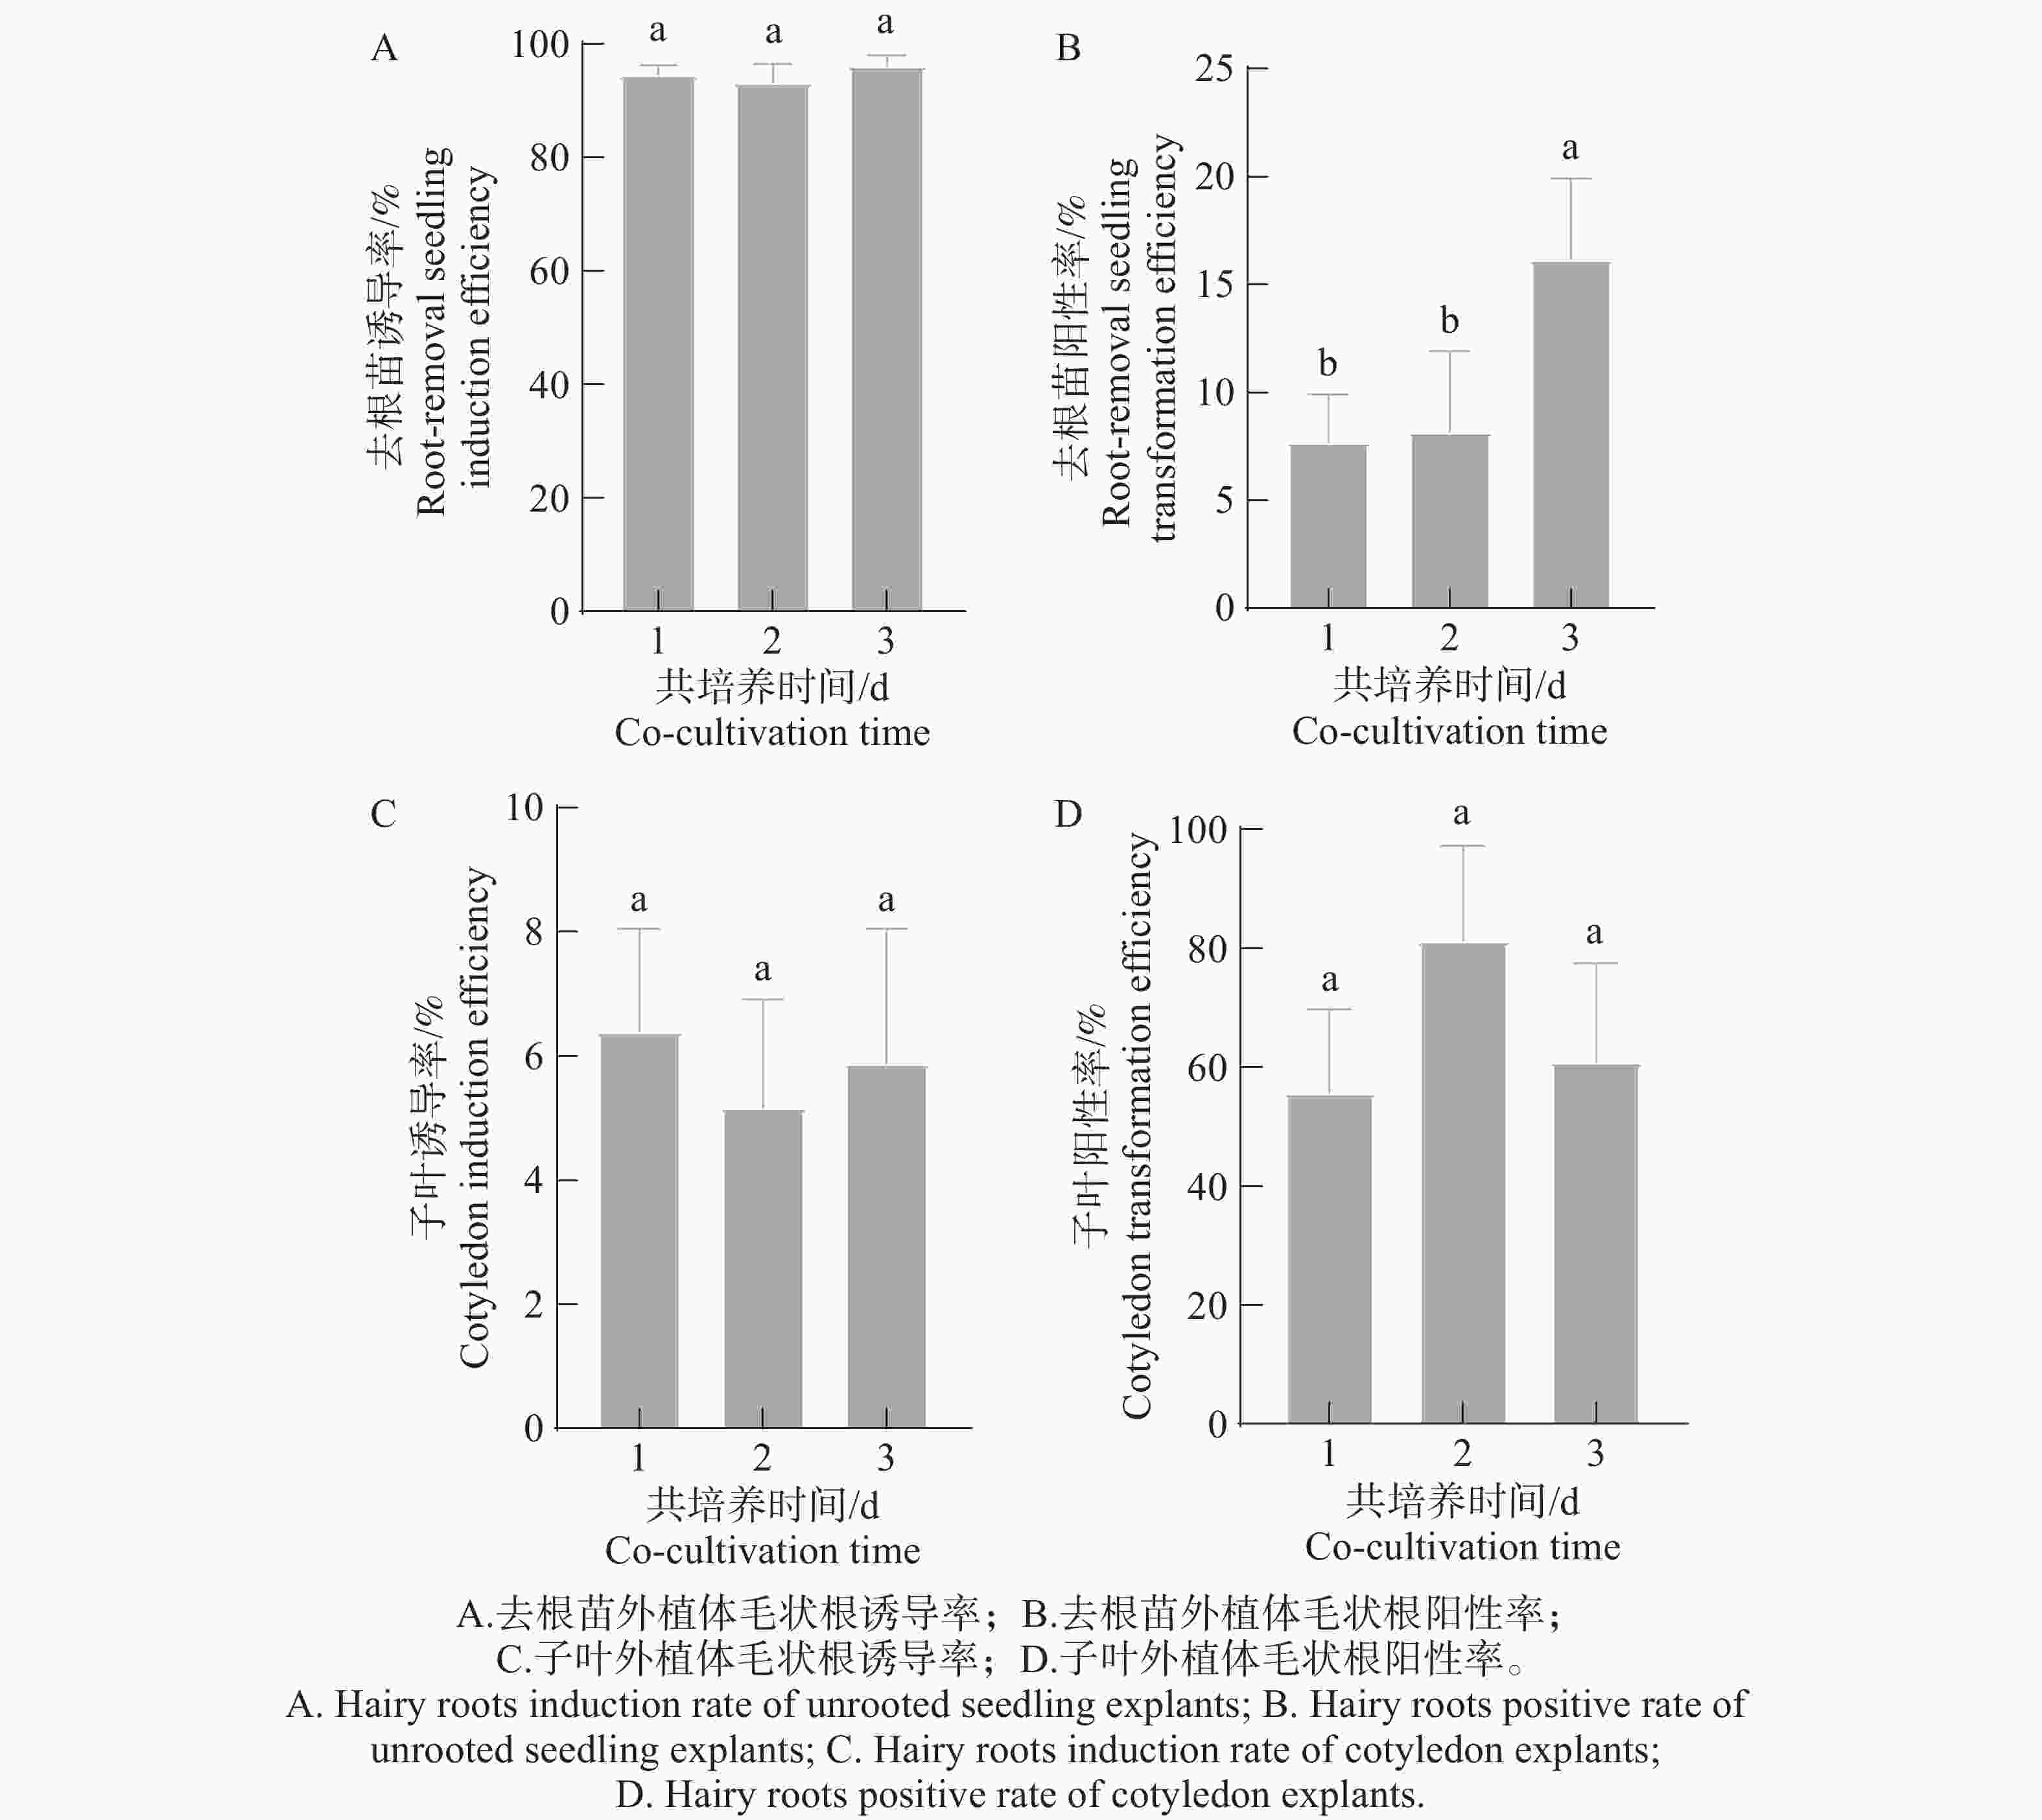
图 5 不同共培养时间对辣椒外植体毛状根诱导率和转化阳性率的影响
Figure 5. Effects of different co-culture time on hairy roots induction rate and transformation positive rate of pepper explants
在子叶的毛状根诱导率方面,3种共培养时间下,子叶诱导率整体维持在极低水平(<7%),无显著差异(图5-C);从毛状根转化效率方面来看,共培养2 d的阳性率最高(81.26%),高于1 d(55.69%)和3 d(60.86%)(图5-D),但无显著差异,综合子叶的诱导率和阳性率,共培养2 d比较适合用于子叶的毛状根遗传转化试验。
-
不同外植体对发根农杆菌的响应存在明显差异。本研究中,去根苗伤口处较早产生大量毛状根,而子叶产生毛状根时间较晚,且诱导率不足10%。这可能与根茎分生细胞分裂活性强、毛状根发生速度快有关,导致外源基因与Rol基因共同转入细胞的时间窗口较短,因此去根苗阳性率相对较低。子叶分化程度高,发根形成条件更严格,反而为外源基因整合提供了更充足的时间,故其阳性率较高。类似现象在杨树(Populus tremula × P. alba)、马铃薯(Solanum tuberosum L.)和苜蓿(Medicago sativa L.)等植物中也有报道,说明外植体类型是影响转化效率的重要因素[17-19]。
菌株类型同样显著影响转化效率。本研究中,Ar Qual和MSU440对去根苗的毛状根诱导率均显著高于K599,但K599的阳性率最高。这可能与K599携带的pRi2659质粒有关,其T-DNA片段更易整合到植物基因组中[20, 21]。此外,K599对地下组织可能具有偏好性,而MSU440对子叶的转化效率相对较高,反映出不同菌株对辣椒不同组织的侵染特异性[22]。
-
菌液浓度是决定农杆菌侵染效率的关键参数。本研究中,去根苗的毛状根诱导率在3种菌液浓度下均维持在90%以上,说明辣椒去根苗对菌液浓度具有一定耐受性。OD600=0.6时阳性率最高,表明适宜的高浓度菌液可在保证侵染活力的同时,避免过度伤害外植体。类似结果在拟南芥(Arabidopsis thaliana(L.)Heynh.)、尾巨桉(Eucalyptus urophylla × E. grandis)等植物中也有报道,但不同物种所需菌液浓度差异较大[23- 24]。
侵染时间影响农杆菌在植物组织表面的附着量及侵染深度,共培养时间则影响T-DNA的转移、整合及表达。本研究中,10~30 min侵染时间均能维持去根苗90%以上的毛状根诱导率,而子叶诱导率始终低于10%,说明去根苗对侵染时间适应性较强,子叶则难以被有效侵染。共培养3 d时去根苗阳性率显著高于1 d和2 d,表明充足的共培养时间有利于T-DNA转移和整合;但超过3 d会增加染菌风险,因此本试验设置最长共培养时间为3 d。该结果与苦瓜(Momordica charantia L.)、杜梨(Pyrus betulifolia Bunge)、彩色马蹄莲(Zantedeschia hybrida)等植物中“侵染30 min+共培养3 d”的较优参数组合基本一致[25-27]。
-
与传统GFP、GUS等报告基因相比,RUBY表达产物可产生肉眼可见的红色色素,无需复杂检测步骤即可快速筛选阳性毛状根,且阳性率与PCR鉴定结果完全吻合。该优势显著简化了转化体系筛选流程,提高了工作效率,已在水稻(Oryza sativa L.)、矮牵牛(Petunia × hybrida)、柠檬(Citrus × limon(L.)Osbeck)等植物中验证了其应用潜力[28-30]。
本研究初步构建了发根农杆菌介导的辣椒毛状根遗传转化体系,得出以去根苗为外植体时,选用K599菌株、菌液OD600=0.6、侵染30 min、共培养3 d,遗传转化阳性率可达16%左右。但本研究采用单因素试验,仅能获得单因素条件下的较优参数组合,无法解析菌株、菌液浓度、侵染时间、共培养时间之间的交互效应。后续可基于本研究筛选得到的参数区间,进一步开展正交试验或响应面分析,解析因子间的协同或拮抗作用,提升辣椒毛状根转化效率。此外,还可进一步优化共培养温度、AS浓度、培养基激素配比,并尝试子叶节、下胚轴等不同外植体,或结合真空、超声波等辅助处理,为辣椒转化体系优化提供更多方向。本研究目前仅获得转基因阳性毛状根,尚未实现由阳性毛状根再生成完整辣椒再生植株,因此该体系适合开展辣椒根部相关基因的快速功能验证。后续还需进一步优化分化再生条件,尝试从阳性毛状根获得完整转基因再生植株。
-
本研究构建了基于RUBY可视化报告系统的去根苗外植体辣椒毛状根遗传转化体系,并依次开展了菌株、菌液浓度、侵染时间、共培养时间条件的初步优化。在以去根苗为外植体的情况下,采用菌株K599、菌液浓度OD600为0.6、根部侵染30 min、共培养3 d的培养条件,能达到约16%的毛状根阳性率。在以子叶为外植体的情况下,采用菌株MSU440、菌液浓度OD600为0.2、根部侵染10 min、共培养2 d,能达到相对较高的毛状根阳性率。然而,在现有条件下,子叶的毛状根诱导率不足10%,尚未建立稳定可用的毛状根遗传转化体系,需要进一步予以优化。综上所述,本研究为发根农杆菌介导的辣椒根部基因功能验证提供了一定的技术平台。
基于RUBY可视化报告系统的辣椒毛状根遗传转化体系的建立和优化
DOI: 10.15886/j.cnki.rdswxb.20260096
 CSTR: 10.15886/j.cnki.rdswxb.20260096
Establishment and optimization of genetic transformation system based on RUBY visual reporting system for pepper hairy roots
-
摘要: 为构建高效便捷的辣椒(Capsicum spp.)遗传转化技术平台,支撑辣椒基因功能解析与分子育种研究,本研究以 RUBY 作为可视化报告基因,采用发根农杆菌介导法,选取去根苗与子叶两种外植体开展试验。通过单因素试验依次优化农杆菌菌株、菌液浓度、侵染时间及共培养时间;利用 RUBY 红色表型初步筛选阳性毛状根,并结合 PCR 分子鉴定验证转化体系稳定性。结果显示,各转化参数显著影响辣椒毛状根阳性率。以去根苗为外植体时,最优条件为发根农杆菌 K599、菌液 OD600=0.6、侵染 30 min、共培养 3 d,毛状根阳性率可达 16.16%;以子叶为外植体时,最优条件为菌株 MSU440、菌液 OD600=0.2、侵染 10 min、共培养 2 d,毛状根阳性率达 81.26%,但子叶毛状根诱导率不足 10%,整体转化效率偏低,仍有待优化。综上,本研究构建并初步优化了基于 RUBY 可视化报告系统的辣椒去根苗毛状根遗传转化体系,可为辣椒根部基因功能验证提供技术支撑;而子叶来源的转化体系暂不稳定,后续需进一步深入优化,提升转化效率。Abstract: In order to establish an efficient and convenient pepper (Capsicum spp.) genetic transformation technology platform to help pepper gene function analysis and molecular breeding research, 35S::RUBY was used as a visual reporter gene in this study. Agrobacterium rhizogenes-mediated method was used to optimize the strain type, bacterial concentration, infection time and co-culture time by single factor test. The positive hairy roots of pepper were preliminarily screened by RUBY visual reporting system. The results showed that different transformation parameters had significant effects on the positive rate of pepper hairy roots. When the unrooted seedlings were used as explants, the optimal transformation system was A. rhizogenes K599, the concentration of bacterial solution was OD600=0.6, the infection time was 30 min, and the co-culture time was 3 d. Under this system, the positive rate of hairy roots could reach 16.16%. When cotyledons were used as explants, the optimal transformation system was strain MSU440, bacterial concentration OD600=0.2, infection time 10 min, co-culture time 2 d, and the positive rate of hairy roots 81.26%. However, the induction rate of cotyledon hairy roots was less than 10%, and the transformation efficiency was extremely low, which still needed to be further optimized. In summary, the genetic transformation system for hairy roots of pepper unrooted seedlings was constructed and preliminarily optimized based on RUBY visual reporting system, which could provide a technical platform for the verification of gene function in pepper roots, while a stable and available transformation system has not been established in cotyledons. In the future, the system should be further optimized in order to obtain higher conversion efficiency.
-
Key words:
- Capsicum annuum /
- Agrobacterium rhizogenes /
- genetic transformation system /
- hairy root /
- reporter gene
-
图 2 不同农杆菌菌株对辣椒外植体毛状根诱导率和转化阳性率的影响
注:采用单因素方差分析结合Duncan新复极差法进行多重比较。同一子图内不同小写字母代表处理间差异显著(P<0.05)。下图同。
Fig. 2 Effects of different Agrobacterium strains on hairy roots induction rate and transformation positive rate of pepper explants
Note: One-way ANOVA followed by Duncan’s multiple range test was used for significance analysis. Different lowercase letters within the same subfigure indicate significant differences among treatments (P<0.05). Similarly hereinafter.
图 3 不同菌液浓度对辣椒外植体毛状根诱导率和转化阳性率的影响
Fig. 3 Effects of different bacterial suspension concentrations on hairy roots induction rate and transformation positive rate of pepper explants
图 4 不同侵染时间对辣椒外植体毛状根诱导率和转化阳性率的影响
Fig. 4 Effects of different infection time on hairy roots induction rate and transformation positive rate of pepper explants
图 5 不同共培养时间对辣椒外植体毛状根诱导率和转化阳性率的影响
Fig. 5 Effects of different co-culture time on hairy roots induction rate and transformation positive rate of pepper explants
表 1 所用发根农杆菌菌株和质粒的抗性标记特征
Table 1 Resistant marker characterization of Agrobacterium rhizogenes strains and plasmids
菌株/质粒
Strains/plasmid抗性标记
Resistant markerAr Qual 链霉素(Strep) MSU440 链霉素(Strep) K599 链霉素(Strep) 35S::RUBY 壮观霉素(Spec)  下载: 导出CSV
-
[1] 蔡文. Cap1基因转化辣椒的研究[D]. 广州: 华南农业大学, 2018. [2] 吴业林, 纪艺雪, 袁友志, 等. 辣椒离体再生的建立和遗传转化体系优化[J]. 安徽科技学院学报, 2025, 39(6): 15−22. https://doi.org/10.19608/j.cnki.1673-8772.2025.0603 doi: 10.19608/j.cnki.1673-8772.2025.0603 [3] 曾华, 胡宗利, 陈国平, 等. 辣椒离体再生及遗传转化研究进展[J]. 生命科学研究, 2011, 15(6): 542−549. https://doi.org/10.16605/j.cnki.1007-7847.2011.06.012 doi: 10.16605/j.cnki.1007-7847.2011.06.012 [4] Lee Y H, Kim H S, Kim J Y, et al. A new selection method for pepper transformation: callus-mediated shoot formation [J]. Plant Cell Reports, 2004, 23(1): 50−58. https://doi.org/10.1007/s00299-004-0791-1 doi: 10.1007/s00299-004-0791-1 [5] 汪虞骅, 黄思远, 郝雪婷, 等. 植物毛状根研究与应用进展[J]. 现代农业科技, 2024(22): 138−142. https://doi.org/10.3969/j.issn.1007-5739.2024.22.033 doi: 10.3969/j.issn.1007-5739.2024.22.033 [6] 朱雨萱, 姚明军, 李斌, 等. 发根农杆菌介导的草莓遗传转化体系构建[J]. 果树学报, 2026, 43(1): 196−210. https://doi.org/10.13925/j.cnki.gsxb.20250313 doi: 10.13925/j.cnki.gsxb.20250313 [7] Zhang H L, Cao Y P, Zhang H, et al. Efficient generation of CRISPR/Cas9-mediated homozygous/biallelic Medicago truncatula mutants using a hairy root system [J]. Frontiers in Plant Science, 2020, 11: 294. https://doi.org/10.3389/fpls.2020.00294 doi: 10.3389/fpls.2020.00294 [8] Wang H Y, Zheng Y S, Zhou Q, et al. Fast, simple, efficient Agrobacterium rhizogenes-mediated transformation system to non-heading Chinese cabbage with transgenic roots [J]. Horticultural Plant Journal, 2024, 10(2): 450−460. https://doi.org/10.1016/j.hpj.2023.03.018 doi: 10.1016/j.hpj.2023.03.018 [9] 陈佳欣, 梅浩, 黄彩翔, 等. 利用转基因毛状根高效培育大豆嵌合植株的方法[J]. 植物学报, 2024, 59(1): 89−98. https://doi.org/10.11983/CBB23021 doi: 10.11983/CBB23021 [10] 韩英鹏, 孙秋霞, 包冬芳, 等. 大豆胞囊线虫病4号生理小种抗性候选基因GmRSCN4-3克隆与功能初步鉴定[J]. 东北农业大学学报, 2018, 49(8): 32−38. https://doi.org/10.3969/j.issn.1005-9369.2018.08.004 doi: 10.3969/j.issn.1005-9369.2018.08.004 [11] 段宇, 胡博文. 发根农杆菌介导的茄科作物转化体系研究进展[J]. 辣椒杂志, 2025, 23(3): 11−19. https://doi.org/10.16847/j.cnki.issn.1672-4542.2025.03.005 doi: 10.16847/j.cnki.issn.1672-4542.2025.03.005 [12] Lopez-Agudelo J C, Goh F J, Tchabashvili S, et al. Rhizobium rhizogenes A4-derived strains mediate hyper-efficient transient gene expression in Nicotiana benthamiana and other solanaceous plants [J]. Plant Biotechnology Journal, 2026, 24(1): 131−144. https://doi.org/10.1111/pbi.70083 doi: 10.1111/pbi.70083 [13] 董依萍, 刘画, 刘丹, 等. 利用绿色荧光蛋白优化辣椒遗传转化体系[J]. 广东农业科学, 2024, 51(3): 103−113. https://doi.org/10.16768/j.issn.1004-874X.2024.03.010 doi: 10.16768/j.issn.1004-874X.2024.03.010 [14] 王中一, 刘熠, 胡博文, 等. 基于RUBY及CaREF1的辣椒高效遗传转化体系构建[J]. 园艺学报, 2025, 52(4): 1093−1104. https://doi.org/10.16420/j.issn.0513-353x.2025-0368 doi: 10.16420/j.issn.0513-353x.2025-0368 [15] 胡霄, 唐瑶, 李婷, 等. 不同发根农杆菌菌株诱导番茄毛状根的研究[J]. 广东农业科学, 2015, 42(3): 20−23. https://doi.org/10.16768/j.issn.1004-874x.2015.03.023 doi: 10.16768/j.issn.1004-874x.2015.03.023 [16] Ye P, Wang M H, Zhang T, et al. Enhanced cadmium accumulation and tolerance in transgenic hairy roots of Solanum nigrum L. expressing Iron-Regulated transporter gene IRT1 [J]. Life, 2020, 10(12): 324. https://doi.org/10.3390/life10120324 doi: 10.3390/life10120324 [17] Lu H W, Jawdy S, Chen J G, et al. Poplar transformation with variable explant sources to maximize transformation efficiency [J]. Scientific Reports, 2025, 15(1): 1320. https://doi.org/10.1038/s41598-024-81235-y doi: 10.1038/s41598-024-81235-y [18] 程永芳, 张丽, 宋玉霞. 马铃薯高效遗传转化受体体系的建立[J]. 西北农业学报, 2016, 25(9): 1350−1357. https://doi.org/10.7606/j.issn.1004-1389.2016.09.011 doi: 10.7606/j.issn.1004-1389.2016.09.011 [19] 李波, 彭丹, 徐婉玉, 等. 苜蓿不同外植体愈伤组织诱导效果及其相关性分析[J]. 种子, 2016, 35(2): 73−75. https://doi.org/10.16590/j.cnki.1001-4705.2016.02.073 doi: 10.16590/j.cnki.1001-4705.2016.02.073 [20] 潘佳怡. 发根农杆菌介导百香果毛状根遗传转化体系的建立与优化[D]. 福州: 福建农林大学, 2025. https://doi.org/10.27018/d.cnki.gfjnu.2025.000725 [21] Meng D, Yang Q, Dong B Y, et al. Development of an efficient root transgenic system for pigeon pea and its application to other important economically plants [J]. Plant Biotechnology Journal, 2019, 17(9): 1804−1813. https://doi.org/10.1111/pbi.13101 doi: 10.1111/pbi.13101 [22] 周雪婷, 武凯凯, 崔蓝芳, 等. 平邑甜茶发根农杆菌介导转化体系构建与优化[J]. 果树学报, 2024, 41(5): 999−1008. https://doi.org/10.13925/j.cnki.gsxb.20240046 doi: 10.13925/j.cnki.gsxb.20240046 [23] Wang Y R, Yaghmaiean H, Zhang Y L. High transformation efficiency in Arabidopsis using extremely low Agrobacterium inoculum [J]. F1000Research, 2020, 9: 356. doi: 10.12688/f1000research.23449.1 [24] 罗萍, 张昊楠, 徐建民, 等. 发根农杆菌介导的尾巨桉遗传转化体系的建立[J]. 植物研究, 2022, 42(3): 512−520. https://doi.org/10.7525/j.issn.1673-5102.2022.03.021 doi: 10.7525/j.issn.1673-5102.2022.03.021 [25] 史志迪, 于仁波, 包文龙, 等. 发根农杆菌介导的苦瓜毛状根遗传转化体系的建立[J/OL]. 分子植物育种, (2025-03-06)[2026-09-08]. https://link.cnki.net/urlid/46.1068.S.20250305.1632.004. [26] 邢萍, 李岩妍, 孙娥, 等. 杜梨愈伤组织诱导及遗传转化体系建立[J]. 甘肃农业大学学报, 2025, 60(5): 113−121. https://doi.org/10.13432/j.cnki.jgsau.2025.05.012 doi: 10.13432/j.cnki.jgsau.2025.05.012 [27] 蒋尹. 彩色马蹄莲组培快繁体系优化及遗传转化体系建立[D]. 秦皇岛: 河北科技师范学院, 2025. https://doi.org/10.27741/d.cnki.ghbkj.2025.000075 [28] He Y B, Zhang T, Sun H, et al. A reporter for noninvasively monitoring gene expression and plant transformation [J]. Horticulture Research, 2020, 7: 152. https://doi.org/10.1038/s41438-020-00390-1 doi: 10.1038/s41438-020-00390-1 [29] 胡晓. 矮牵牛PMADS18和PMADS9基因的定点敲除及RUBY标记基因在矮牵牛中的应用[D]. 重庆: 西南大学, 2022. https://doi.org/10.27684/d.cnki.gxndx.2022.001450 [30] 苑忠杰. RNAi技术在柠檬抗CYVCV育种中的应用及柠檬遗传转化体系的建立[D]. 重庆: 西南大学, 2024. https://doi.org/10.27684/d.cnki.gxndx.2024.003490 -

 点击查看大图
计量
- 文章访问数: 3
- HTML全文浏览量: 2
- 被引次数: 0
