

-
三叶草斑潜蝇(Liriomyza trifolii Burgess, 1880)和美洲斑潜蝇(Liriomyza sativae, Blanchard, 1938)隶属于双翅目(Diptera)潜蝇科(Agromyzidae)斑潜蝇属(Liriomyza),是一类以幼虫潜食叶片为害、严重危害瓜果蔬菜及花卉等经济作物的世界性害虫[1−2]。该害虫原产自美洲,目前已被全球多个国家列为检疫对象。1993年,我国首次在海南发现美洲斑潜蝇[3],此后该虫扩散迅速,现已广泛分布于全国各市县及城区。三叶草斑潜蝇于2005年在我国广东省中山市首次被发现,随后在海南多个地市相继被报道[4−5]。2006年,该虫被列入《全国农业植物检疫性有害生物名录》。目前该虫已在海南、广东、广西、福建、浙江、江苏等地出现,东南沿海为其主要分布地区,北方部分省份亦有分布[6−7]。全球气候的变化及国际贸易的迅速发展,为这两种斑潜蝇的入侵和扩散提供了便利条件,使其成为我国中部及东南沿海地区农业经济作物上危害最为严重的两种入侵斑潜蝇[8−9]。海南独特的热带气候为各类病虫害的发生提供了非常有利的条件,两种斑潜蝇在海南地区无越冬且繁殖速度较快,容易出现大面积爆发的现象,对当地瓜菜作物的危害逐年加重,对瓜菜的产量和品质造成了巨大影响[10−11]。
斑潜蝇是一类高度多食性害虫,其幼虫会潜入叶片上下表皮之间取食,形成不规则蛇形潜道;其寄主范围极广,包括26科300余种植物[12−13]。然而,两种斑潜蝇的寄主范围及嗜食寄主植物种类存在差异:三叶草斑潜蝇可对菊科、豆科、茄科等寄主植物造成危害,尤其嗜食豇豆、菜豆等豆科经济作物;在江苏地区,三叶草斑潜蝇在绝大部分市县的豇豆上均发生严重危害;而美洲斑潜蝇除嗜食豆科植物外,在西瓜、黄瓜等葫芦科经济作物上也具有较强的为害能力,甚至造成地块绝收[14−15]。豇豆(Vigna unguiculata (L.) Walp.)和西瓜(Citrullus lanatus (Thunb.) Matsum. & Nakai)为海南地区冬季瓜菜的重要经济作物[16−17],凭借生长周期短、经济效益高的优势而被广泛种植。《2024年海南统计年鉴》数据表明,豇豆和西瓜的种植面积与产量在海南瓜菜作物中均位居前五,其中豇豆种植面积达2.03万hm2、产量50.65万t,西瓜则为1.55 万hm2、55.75万t[18]。目前,海南地区两种斑潜蝇对主要经济作物的适合度以及在不同寄主植物上的生长发育表现差异尚不明确。因此,本研究通过调查海南地区两种斑潜蝇田间寄主情况,以及不同寄主植物对其生长发育和繁殖的影响,为解释其不同寄主植物适应性分子机制,以及为后续的斑潜蝇害虫综合治理提供参考。
-
2025年2—7月在海南地区北部、中部及南部的多个市县开展田间系统调查,调查对象包括海南主要经济农作物以及作物周边杂草等。调查采用对角线五点取样法,选择种植单一且处于生长期的经济作物田块,每个田块设置五个样方,每个样方面积为4 m × 4 m。在每个样方内,检查寄主植物叶片是否存在幼虫潜道痕迹,将存在潜道痕迹的叶片收集带回实验室;对于分辨不出的植物样本,则采样并拍照后带回实验室进一步鉴定,同时详细记录寄主植物的相关信息。
-
收集到的植物叶片放置透气采集袋中,待叶片中的斑潜蝇幼虫化蛹,使用软毛刷将蛹收集到果蝇管中,待其羽化后在显微镜下通过观察内外顶鬃着生位置及腹部背面黑色条纹是否完整等特征进行形态学鉴定[19−20],并提取斑潜蝇DNA作为模板,通过COI基因鉴定的PCR扩增程序获得产物,将产物送至生工生物工程(上海)股份有限公司测序,将结果与已知序列进行比对分析[21]。
-
室内寄主适应性实验所用寄主植物,选取斑潜蝇在海南危害严重的两种典型作物,豆科选择豇豆品种‘美白佳丽’;葫芦科选择西瓜品种‘冰糖麒麟
8424 ’。栽培基质选择椰壳营养土(Pindstrup),使用直径15 cm,高15 cm的花盆栽培,每盆5株;育苗在室内恒温光照培养箱中进行,温度为25±1 ℃、湿度为65±5%,光周期为16L∶8D,待幼苗长出两片真叶,真叶面积达到约5 cm2时用做实验。 -
室内寄主适应性实验所用虫源:三叶草斑潜蝇采集于海南省三亚市崖州区崖城镇(18°23'20.21" N,109°08'26.23" E)的豇豆田,美洲斑潜蝇采集于海南省昌江黎族自治县牙营村(19°15'08.70" N,109°04'50.72" E)的豇豆田。采集带有虫道的叶片带回实验室,待其化蛹后收集至果蝇管内,羽化后成虫用点样毛细管蘸取10%浓度的蜂蜜水进行短暂饲喂,后接入放置长出两片真叶的豇豆或西瓜幼苗的昆虫饲养笼(50 cm × 50 cm × 50 cm)中进行室内继代饲养,两种斑潜蝇均在实验室环境培养10代以上。斑潜蝇整个世代均在室内恒温光照培养箱中进行饲养,温度为25±1 ℃、湿度为65±5%,光周期为16L∶8D。
-
随机选取1日龄斑潜蝇雌雄成虫各一头配对,装入干净透明塑料罐中,罐中放置一株新鲜土培苗,并置于室内恒温光照培养箱中,待成虫产卵,24 h后将土培苗转移至另一干净养虫笼内,然后重新向罐中放置一株新鲜土培苗供其继续取食产卵,期间不再额外补充营养,循环往复直至斑潜蝇雌雄虫全部死亡,死亡后不再补充,统计雌雄成虫的寿命,每种组合进行15个重复。将转移出的土培苗放置于显微镜下观察记录成虫的产卵量,将每种组合的卵分为3个重复,每个重复30枚,其余使用昆虫针去除,对更换出的土培苗进行持续培养和观察,并每间隔8 h详细记录后续F1代斑潜蝇的各阶段生长发育及存活情况。选择斑潜蝇2日龄蛹,使用体视显微镜观察测量蛹体头部最前端到腹部末节的最长直线距离为蛹长及蛹体最大宽度的横向直线距离为蛹宽;使用万分之一分析天平测定单头蛹重。
-
为探究昆虫物种与寄主植物两个因素对各项观测指标的独立影响及其交互作用,采用SPSS v27.0.1.0软件进行一般线性模型下的双因素方差分析(two-way ANOVA),针对两因素交互作用显著(P<0.05)的指标进一步进行简单效应分析,对交互作用不显著(P≥0.05)的指标针对主效应显著的因素使用Tukey事后检验进行各水平间的多重比较,所有统计检验的显著性水平均设定为P<0.05,数据表示为平均值±标准误差。使用GraphPad Prism v9.5.0软件进行绘图。
-
在海南省北部、中部及南部的8个市县(包括三亚、乐东、陵水、五指山、儋州、海口、澄迈和定安)开展了斑潜蝇种群及其寄主植物的田间调查,结果表明,相较于三叶草斑潜蝇,美洲斑潜蝇在海南地区的分布范围更广,为害寄主植物种类更多(表1)。美洲斑潜蝇在8个市县均发现有分布,且为害的寄主植物种类除豆科植物(豇豆V. unguiculata和菜豆Phaseolus vulgaris)外,还包括葫芦科植物(葫芦Lagenaria siceraria、南瓜Cucurbita moschata、黄瓜Cucumis sativus、西瓜C. lanatus、冬瓜Benincasa hispida和丝瓜Luffa aegyptiaca),此外,在陵水还发现其为害茄科植物(圣女果 Solanum lycopersicum var. cerasiforme)。三叶草斑潜蝇则仅在其中6个市县发现为害(包括北部3个、中部1个和南部2个市县),主要为害寄主为豆科植物,包括豇豆和菜豆,另外,仅在儋州发现为害葫芦科的西瓜。在作物田块周边杂草的调查中,均未发现两种斑潜蝇寄生为害。
表 1 海南地区两种斑潜蝇田间种群及其寄主植物分布
Table 1. Field populations and host plant distribution of two Liriomyza species in Hainan
调查地点
Location调查时间
Date寄主植物
Host Plant三叶草斑潜蝇
L. trifolii美洲斑潜蝇
L. sativae三亚 2025-02-14 豇豆 豇豆、葫芦、南瓜 乐东 2025-02-23 豇豆 豇豆、黄瓜、西瓜 陵水 2025-03-18 − 冬瓜、圣女果 五指山 2025-04-04 豇豆、菜豆 豇豆、丝瓜、西瓜、南瓜 儋州 2025-05-17 菜豆、西瓜 菜豆、西瓜 海口 2025-06-21 豇豆 豇豆 澄迈 2025-06-21 豇豆 菜豆 定安 2025-07-11 − 豇豆 -
利用双因素方差分析(Two-way ANOVA)对斑潜蝇物种和寄主植物对各生物学参数的影响进行了分析(表2)。卵期、幼虫期、蛹期、总发育历期以及蛹宽的交互作用显著,表明其受到斑潜蝇种类和寄主植物的共同影响。其余指标的交互作用均不显著,其中部分指标存在单一或两个主效应显著的情况,蛹长、雌虫寿命和产卵量受物种和寄主植物双重影响,而雄虫寿命仅受寄主植物影响,蛹重仅受到物种影响。
表 2 斑潜蝇种类和寄主植物对各生物学参数影响的双因素方差分析
Table 2. Two-way ANOVA of the effects of Liriomyza species and host plants on various biological parameters
方差来源 Source of variation 自由度 df F值 F-value P值 P-value 孵化率 Hatching rate 物种 Species 1, 8 0.84 0.386 寄主植物 Host Plant 1, 8 7.38 0.226 物种×寄主植物 S×HP 1, 8 2.30 0.168 化蛹率 Pupation rate 物种 Species 1, 8 0.57 0.471 寄主植物 Host Plant 1, 8 0.46 0.518 物种×寄主植物 S×HP 1, 8 1.57 0.245 羽化率 Emergence rate 物种 Species 1, 8 0.02 0.883 寄主植物 Host Plant 1, 8 0.10 0.763 物种×寄主植物 S×HP 1, 8 0.25 0.628 卵期 Egg stage 物种 Species 1, 356 80.44 <0.001 寄主植物 Host Plant 1, 356 155.71 <0.001 物种×寄主植物 S×HP 1, 356 36.48 <0.001 幼虫期 Larval stage 物种 Species 1, 331 13.60 <0.001 寄主植物 Host Plant 1, 331 72.61 <0.001 物种×寄主植物 S×HP 1, 331 17.08 <0.001 蛹期 Pupal stage 物种 Species 1, 300 13.27 <0.001 寄主植物 Host Plant 1, 300 525.23 <0.001 物种×寄主植物 S×HP 1, 300 128.19 <0.001 总发育历期 Total developmental duration 物种 Species 1, 291 1.84 0.176 寄主植物 Host Plant 1, 291 3.84 0.051 物种×寄主植物 S×HP 1, 291 4.48 0.035 蛹长 Pupal length 物种 Species 1, 300 47.66 <0.001 寄主植物 Host Plant 1, 300 11.92 0.001 物种×寄主植物 S×HP 1, 300 3.37 0.068 蛹宽 Pupal width 物种 Species 1, 303 65.14 <0.001 寄主植物 Host Plant 1, 303 12.47 <0.001 物种×寄主植物 S×HP 1, 303 6.59 0.011 蛹重 Pupal weight 物种 Species 1, 36 18.86 <0.001 寄主植物 Host Plant 1, 36 3.90 0.056 物种×寄主植物 S×HP 1, 36 0.62 0.435 雌虫寿命 Female adult longevity 物种 Species 1, 56 27.04 <0.001 寄主植物 Host Plant 1, 56 44.01 <0.001 物种×寄主植物 S×HP 1, 56 0.13 0.721 雄虫寿命 Male adult longevity 物种 Species 1, 56 0.01 0.935 寄主植物 Host Plant 1, 56 19.09 <0.001 物种×寄主植物 S×HP 1, 56 1.15 0.288 产卵量 Number of eggs laid 物种 Species 1, 56 16.74 <0.001 寄主植物 Host Plant 1, 56 406.13 <0.001 物种×寄主植物 S×HP 1, 56 <0.01 0.960 注:df:自由度(分子自由度df,分母自由度df)。F值:每个方差来源计算的 F 统计量。S×HP:代表斑潜蝇物种和寄主植物之间的交互作用。P值小于0.05表示存在显著的效应或交互作用。 Note: df: Degrees of freedom(numerator df, denominator df). F-value: The F-statistic calculated for each source of variation. S×HP: The interaction effect between Liriomyza species and host plant. P-value less than 0.05 indicates a significant effect or interaction. -
双因素方差分析结果显示,斑潜蝇种类与寄主植物对孵化率、化蛹率及羽化率均无显著的交互作用(P>0.05)(表2)。三叶草斑潜蝇和美洲斑潜蝇分别在豇豆和西瓜两种不同寄主植物上的孵化率、化蛹率、羽化率均在85%以上,无显著性差异(表3)。
表 3 两种斑潜蝇在不同寄主植物上的孵化率、化蛹率、羽化率
Table 3. Hatching, pupation, and emergence rates of two Liriomyza species on different host plants
发育指标
Developmental indices三叶草斑潜蝇 L. trifolii 美洲斑潜蝇 L. sativae 豇豆 V. unguiculata 西瓜 C. lanatus 豇豆 V. unguiculata 西瓜 C. lanatus 孵化率 Hatching rate/% 93.3 ± 2.0 85.5 ± 2.2 92.2 ± 1.1 90.0 ± 1.9 化蛹率 Pupation rate/% 92.0 ± 1.2 87.8 ± 1.1 90.9 ± 3.9 92.2 ± 1.1 羽化率 Emergence rate/% 91.4 ± 2.5 89.7 ± 1.0 90.0 ± 2.2 90.4 ± 2.4 -
针对发育历期的分析结果显示,斑潜蝇种类与寄主植物在卵期、幼虫期、蛹期及总发育历期上均存在显著或极显著的交互作用(表2),表明两种斑潜蝇对寄主植物的适应策略存在差异。斑潜蝇种类与寄主植物对卵期存在极显著交互作用(F1,356=36.48,P<0.001)。简单效应分析发现,对于三叶草斑潜蝇其在豇豆上的卵期显著长于西瓜,且差值较大,对寄主变化较为敏感,在豇豆上历期最长,为4±0.04 d;而对于两种寄主植物的分析表明,三叶草斑潜蝇卵期均显著长于美洲斑潜蝇,但在豇豆上两种斑潜蝇的卵期差别更大而西瓜上差别较小,且美洲斑潜蝇在西瓜上历期最短,为3.1±0.04 d。幼虫期表现与卵期相似,交互作用极显著(F1,331=17.08,P<0.001)。在豇豆上,两种斑潜蝇的幼虫历期无显著差异;但在西瓜上,美洲斑潜蝇表现出显著的发育优势,历期缩短至3.6±0.04 d,显著短于三叶草斑潜蝇。蛹期交互作用极显著(F1,300=128.19,P<0.001),两种斑潜蝇表现出与卵期和幼虫期相反的趋势,西瓜上的历期均显著长于豇豆。对于寄主植物的分析表明,在西瓜上,三叶草斑潜蝇的蛹期较美洲斑潜蝇显著增长,为8.9±0.06 d;而在豇豆上,三叶草斑潜蝇具有明显优势,其历期最短,为7.4±0.04 d。鉴于卵期和蛹期的相反表现,因此总发育历期的差值相对较小,交互作用显著(F1,291=4.48,P=0.035)。对于三叶草斑潜蝇,其在西瓜上的发育历期显著长于豇豆,但美洲斑潜蝇则在两种寄主植物上无明显差异;对寄主植物的分析发现,在西瓜上三叶草斑潜蝇的总发育历期显著长于美洲斑潜蝇,而在豇豆上两种斑潜蝇无显著差异。以上结果显示,相较于三叶草斑潜蝇,美洲斑潜蝇在西瓜上具有更高的适合度。
表 4 两种斑潜蝇在不同寄主植物上发育历期分析
Table 4. Two-way ANOVA of the effects of two Liriomyza species and host plant on developmental duration
发育时间
Developmental time三叶草斑潜蝇 L. trifolii 美洲斑潜蝇 L. sativae 豇豆 V. unguiculata 西瓜 C. lanatus 豇豆 V. unguiculata 西瓜 C. lanatus 卵期 Egg stage 4.0 ± 0.04a A 3.2 ± 0.04b A 3.4 ± 0.04a B 3.1 ± 0.04b B 幼虫期 Larval stage 4.1 ± 0.04a A 3.9 ± 0.06b A 4.2 ± 0.05a A 3.6 ± 0.04b B 蛹期 Pupal stage 7.4 ± 0.04b B 8.9 ± 0.06a A 8.1 ± 0.04b A 8.6 ± 0.05a B 发育历期 Developmental duration 15.1 ± 0.29b A 16.0 ± 0.17a A 15.1 ± 0.31a A 15.2 ± 0.08a B 注:小写字母表示在同一昆虫物种内,比较不同寄主植物的简单效应分析结果(P<0.05);大写字母表示在同一寄主植物内,比较不同昆虫物种的简单效应分析结果(P<0.05);所有比较基于同一发育阶段进行。下同。 Note: Lowercase letters indicate comparison of the results of simple effect analysis of different host plants within the same insect species (P < 0.05). Uppercase letters indicate comparison of the results of simple effect analysis of different insect species within the same host plant (P < 0.05). All comparisons are based on the same developmental stage. Similarly hereinafter. -
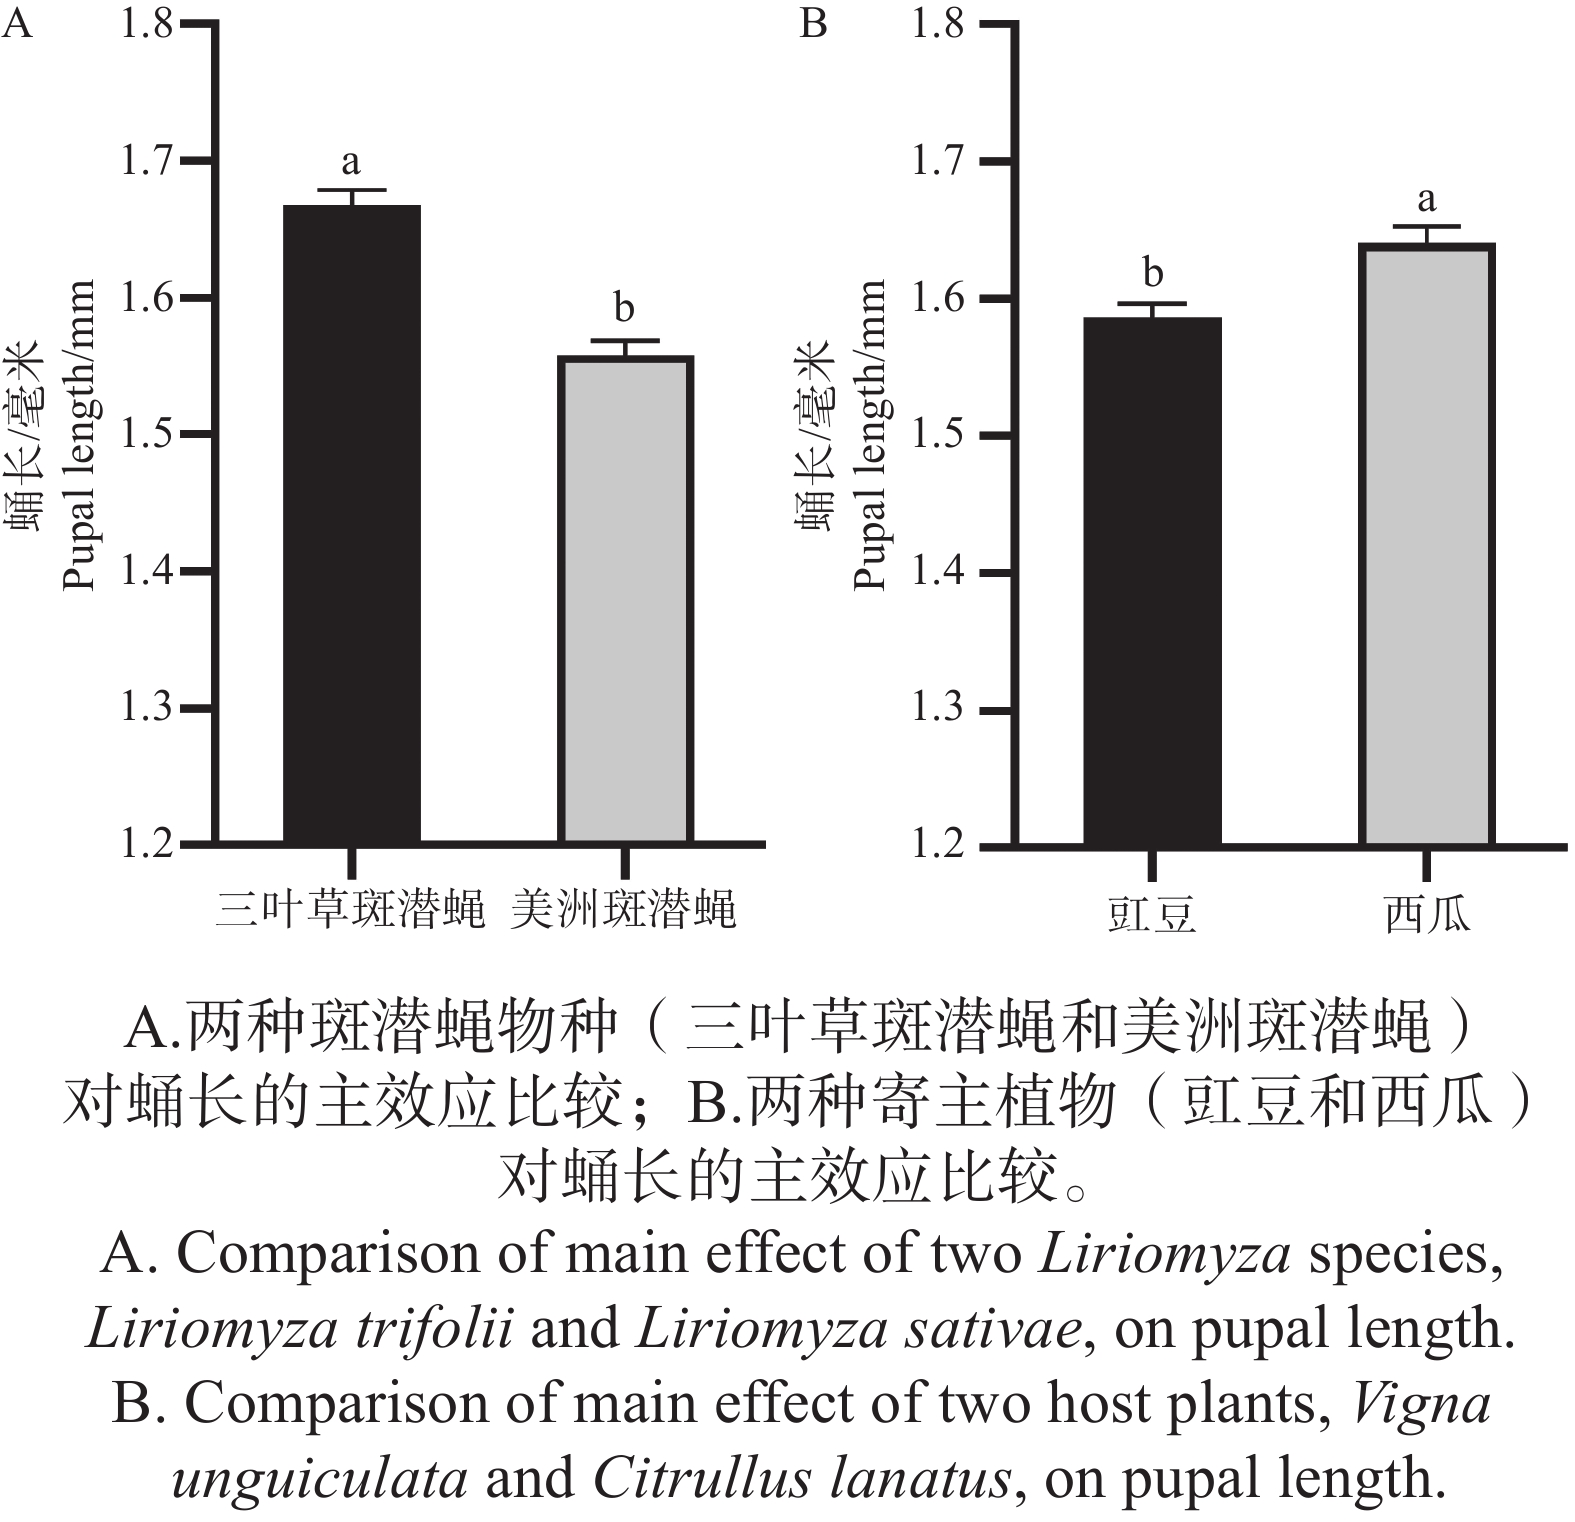
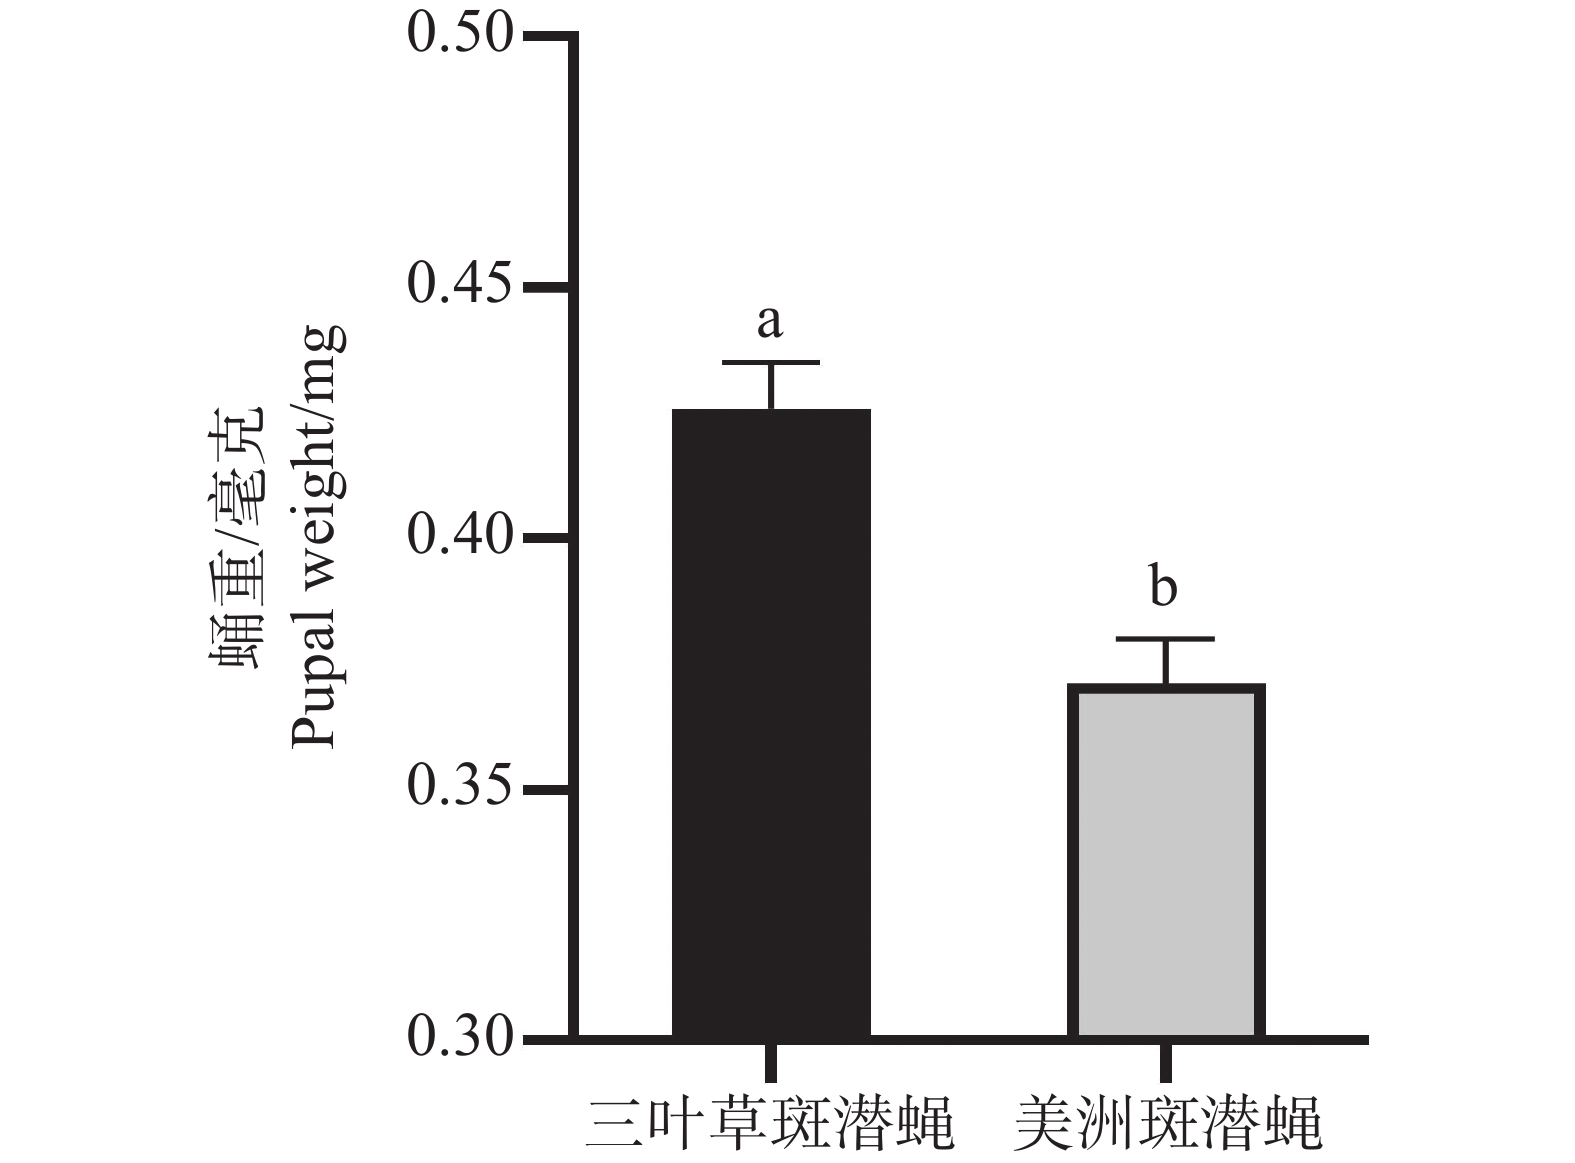
在蛹形态方面,斑潜蝇物种与寄主植物对蛹宽的交互作用显著(F1,303=6.59,P=0.011)(表2)。简单效应分析表明,对于三叶草斑潜蝇,其在不同寄主植物上的蛹宽差异并不显著,而美洲斑潜蝇则表现为在西瓜上的蛹宽显著大于豇豆;在相同寄主植物上,三叶草斑潜蝇的蛹宽均显著大于美洲斑潜蝇,且在豇豆上两种斑潜蝇的蛹宽差异更大(图1)。在蛹长和蛹重方面,昆虫物种的主效应表现极显著,体现为三叶草斑潜蝇蛹长和蛹重显著高于美洲斑潜蝇,同时在寄主植物的主效应表现中,西瓜上的蛹长显著高于豇豆上(图2、图3)。结果显示出在蛹形态方面主要差异为物种间固有差异,三叶草斑潜蝇的蛹比美洲斑潜蝇的蛹大,但同时也显示出美洲斑潜蝇在西瓜上具有更高的适合度。
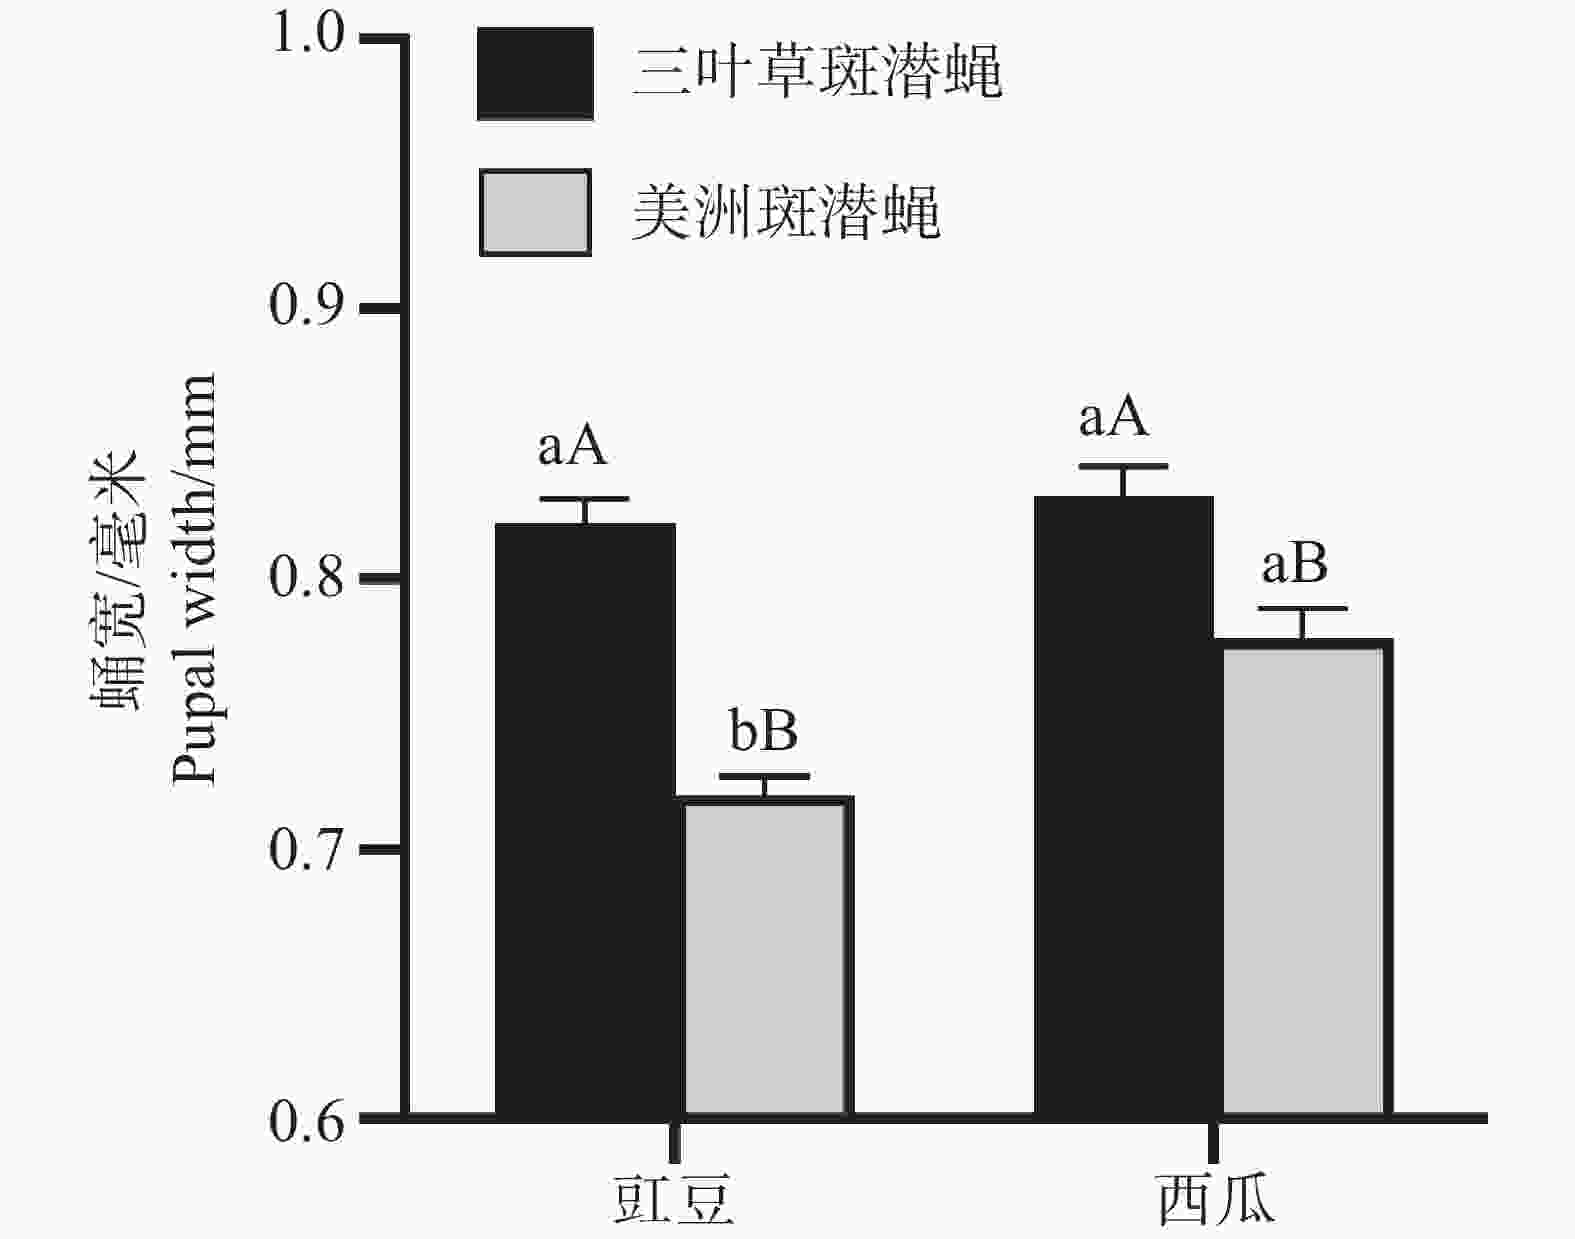
图 1 斑潜蝇物种和寄主植物对蛹宽的影响
Figure 1. Interaction Effect of Liriomyza Species and Host Plants on Pupal Width
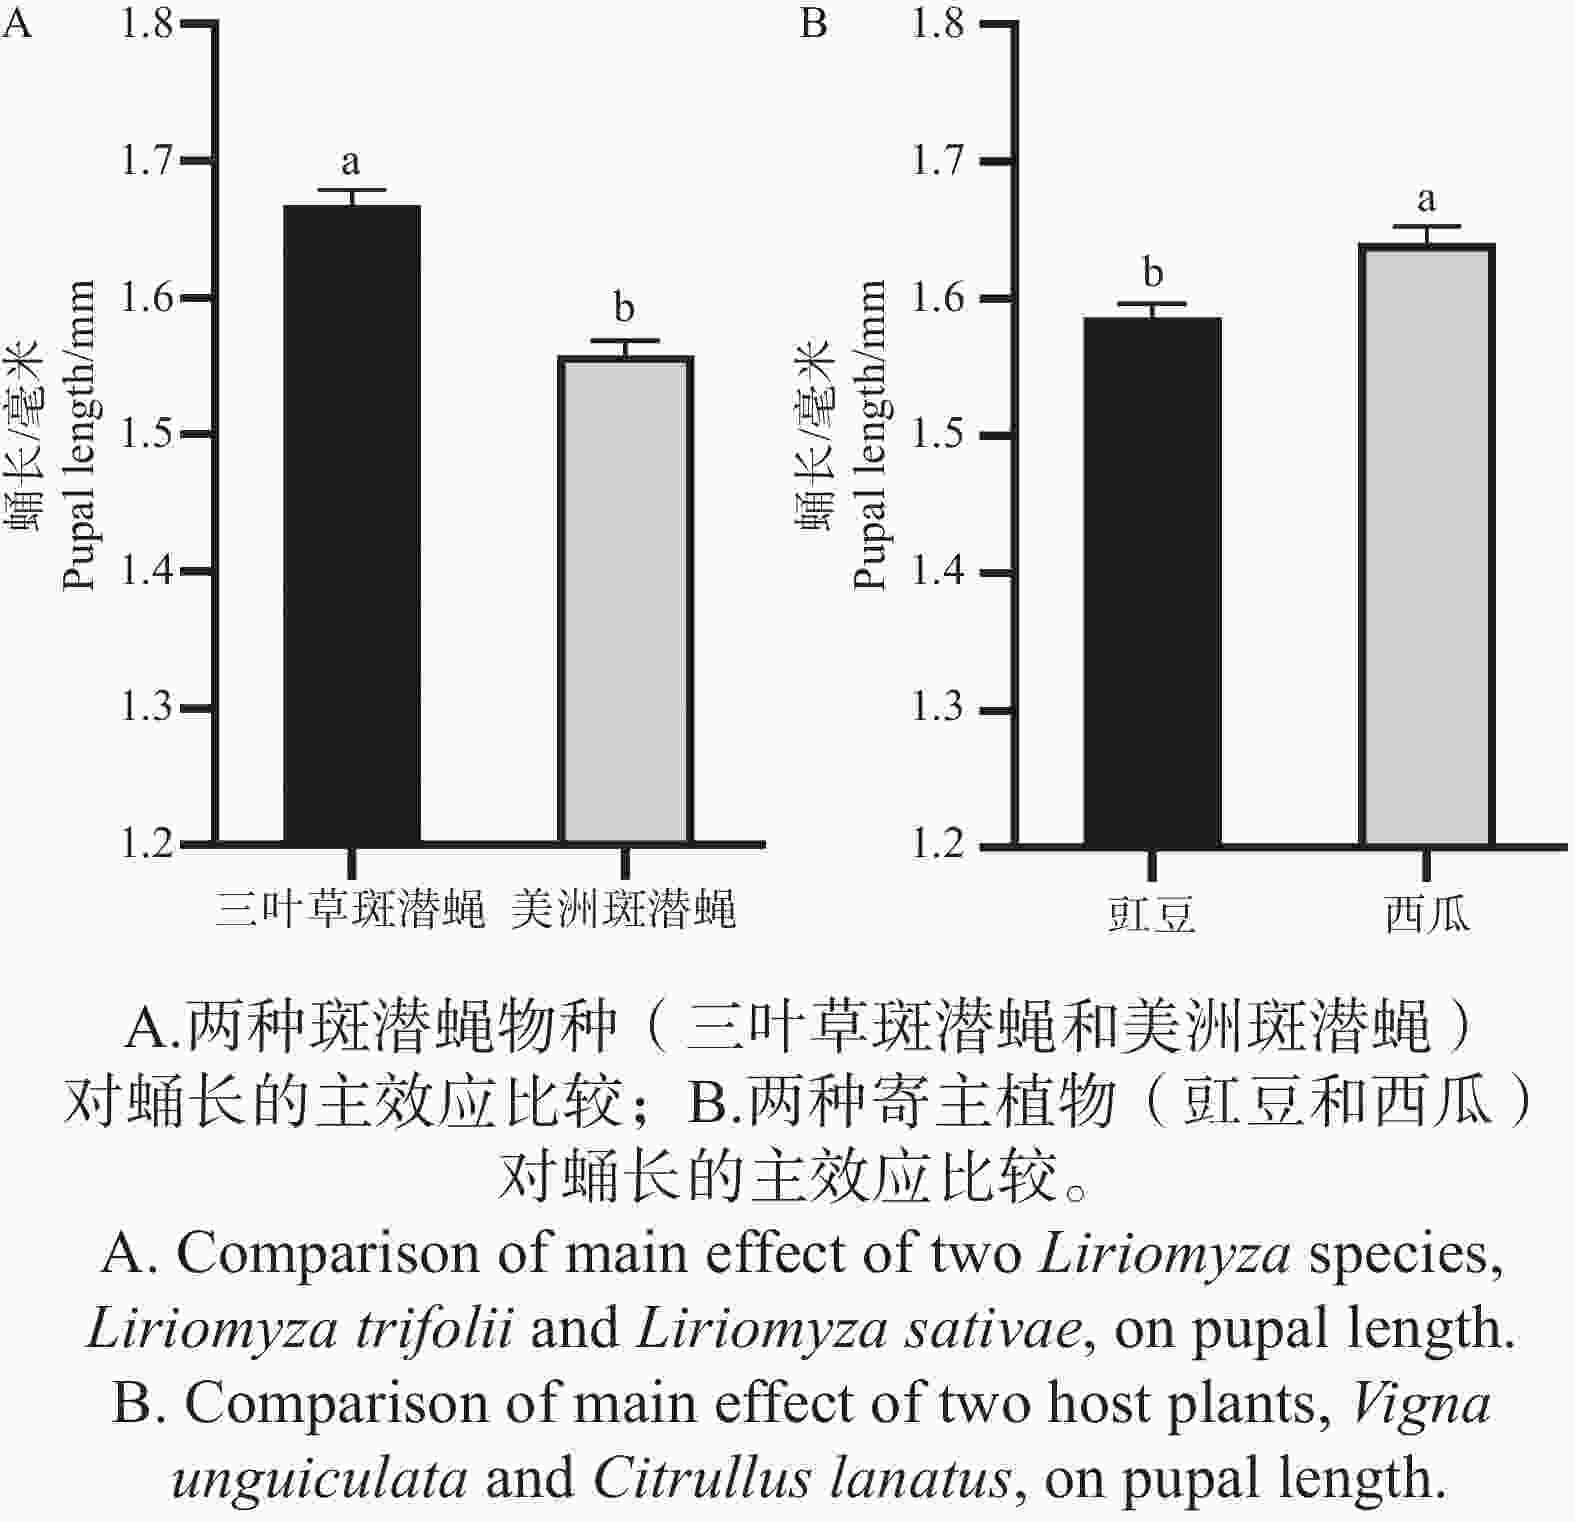
图 2 斑潜蝇物种和寄主植物对蛹长的影响
Figure 2. Effect of Liriomyza species and host plants on pupal length
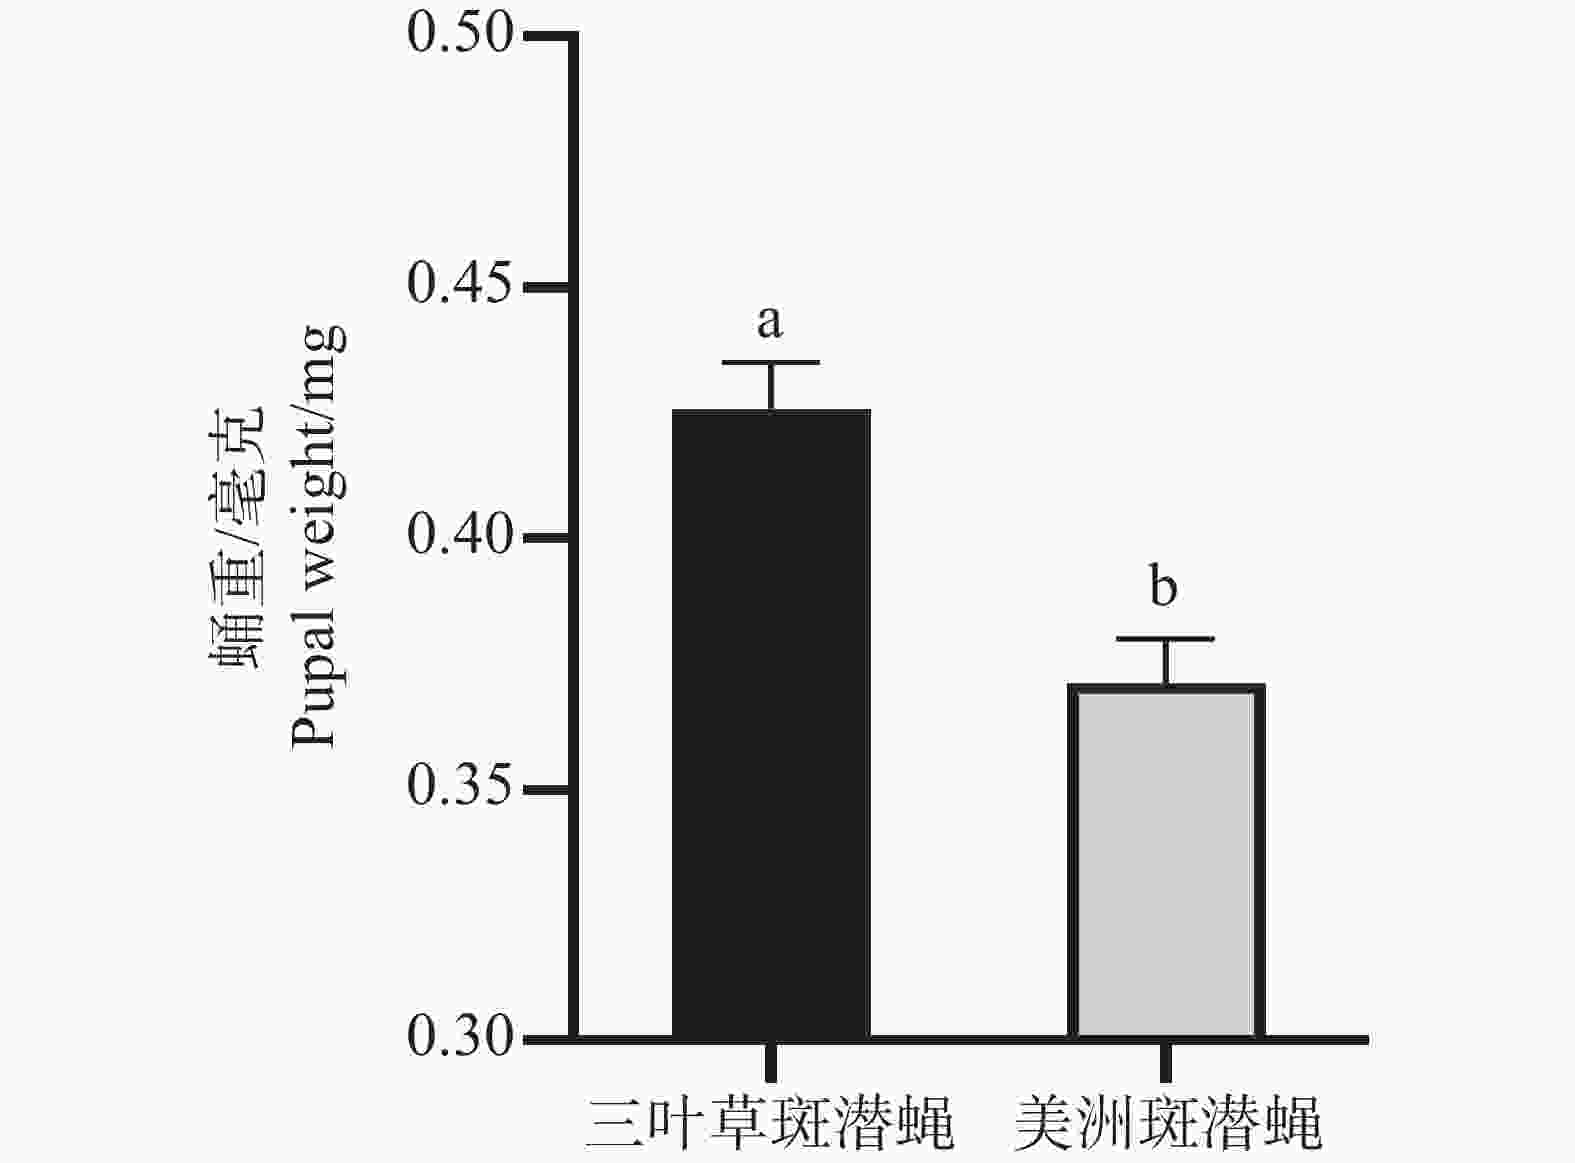
图 3 斑潜蝇物种对蛹重的影响
Figure 3. Effect of Liriomyza species on pupal weight
-
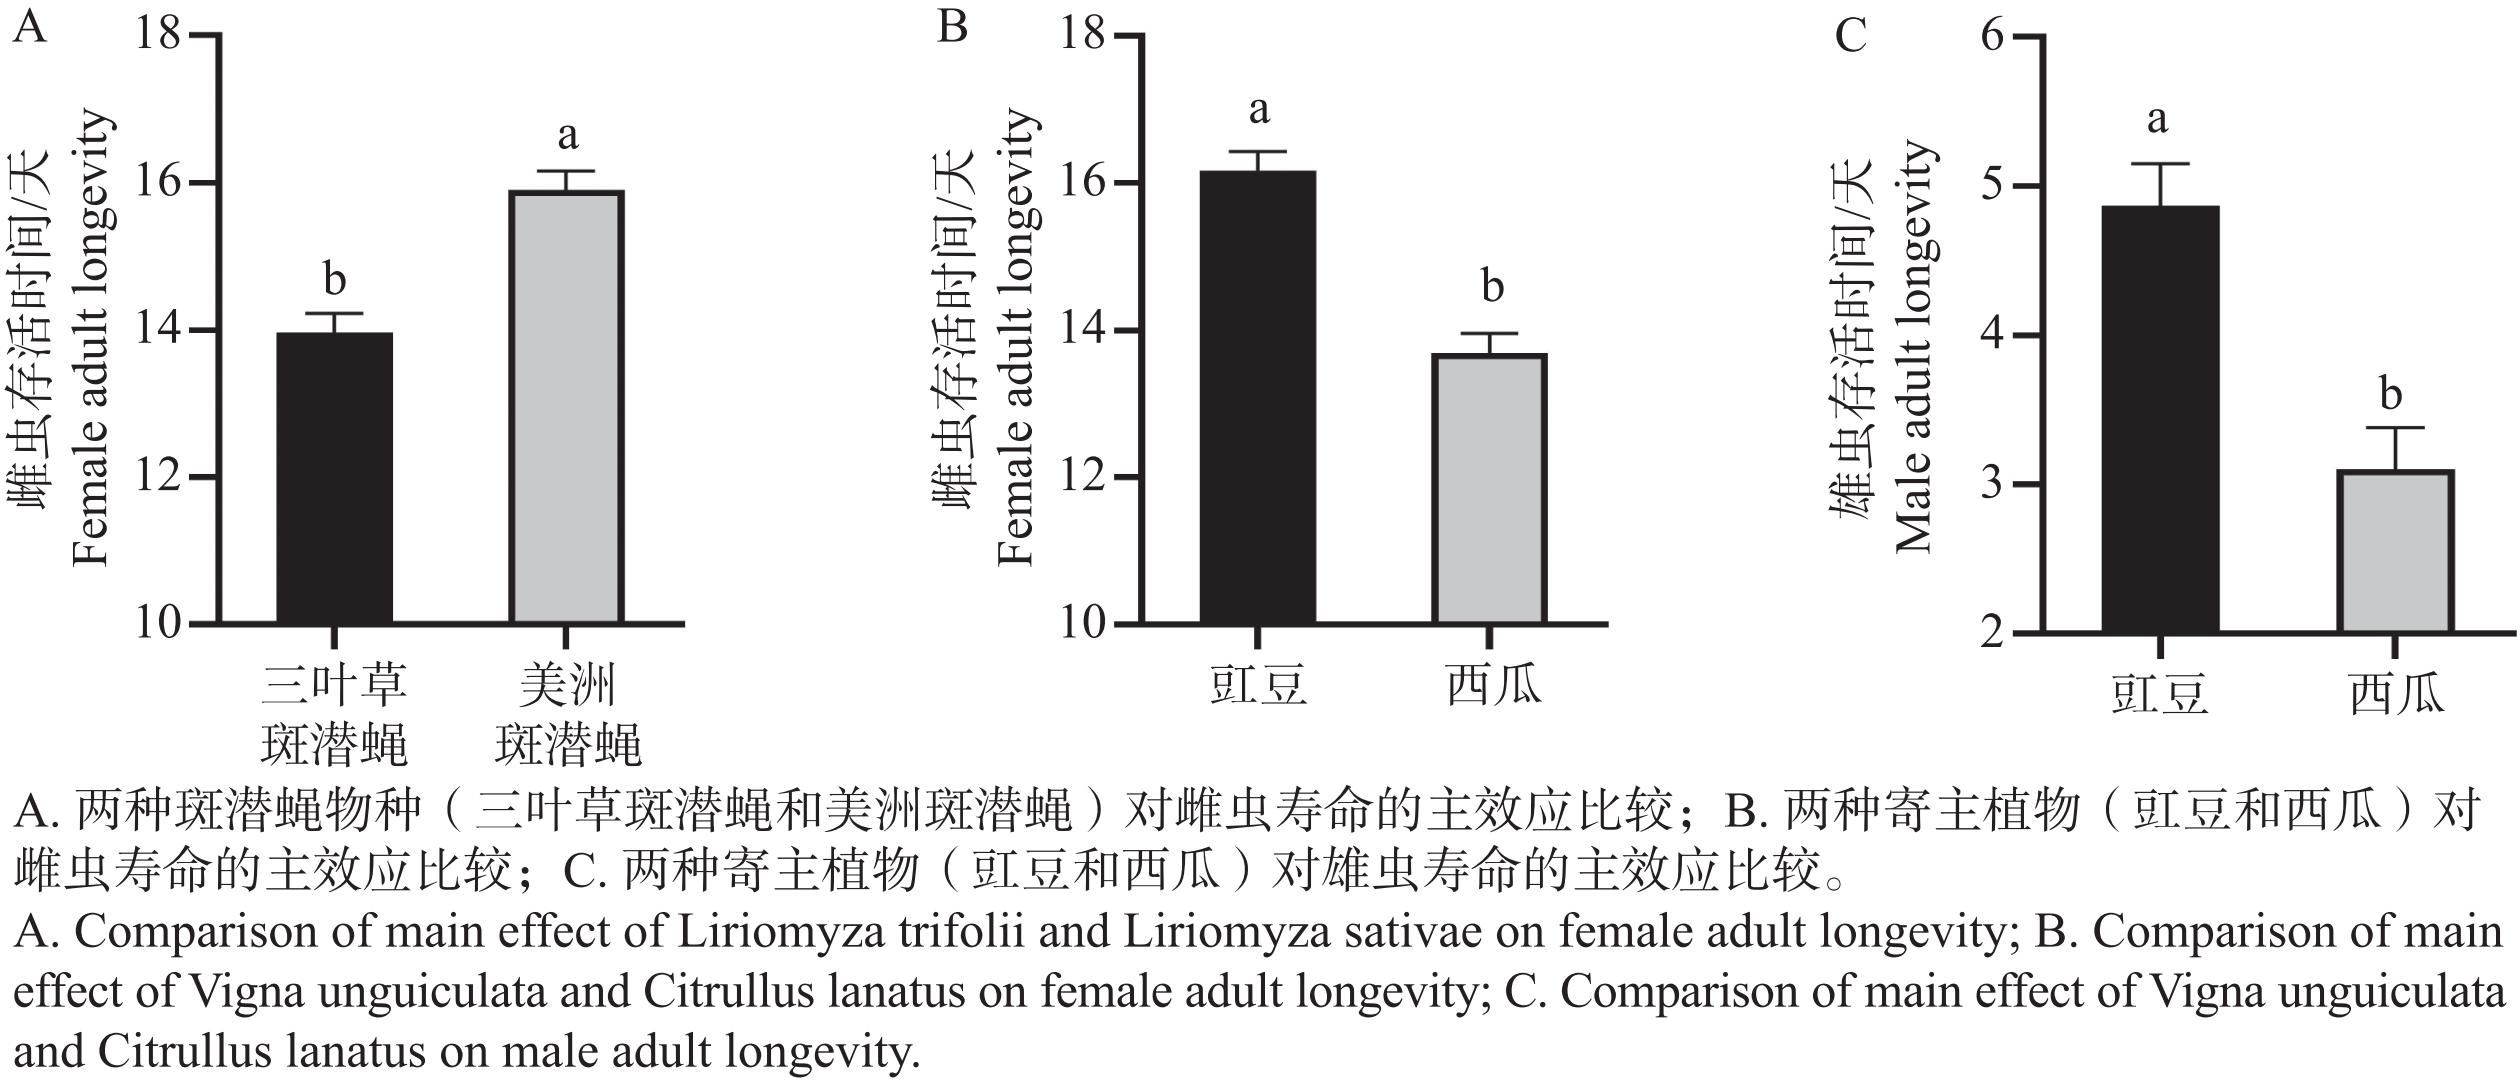
分别测定两种斑潜蝇雌雄成虫在两种不同寄主植物上的寿命,双因素方差分析显示交互作用均不显著,因此我们进而关注主效应,结果发现,斑潜蝇物种和寄主植物的主效应对雌虫寿命均显著,而雄虫寿命仅寄主植物的主效应显著(表2)。分析显示对于斑潜蝇物种,美洲斑潜蝇的雌虫寿命显著长于三叶草斑潜蝇(图4-A),体现出美洲斑潜蝇更强的适应能力。而对于寄主植物,在豇豆上的斑潜蝇雌虫寿命显著长于西瓜(图4-B),对雄虫寿命的分析也表现出相同趋势(图4-C),显示出豇豆对两种斑潜蝇成虫更优的适合度。
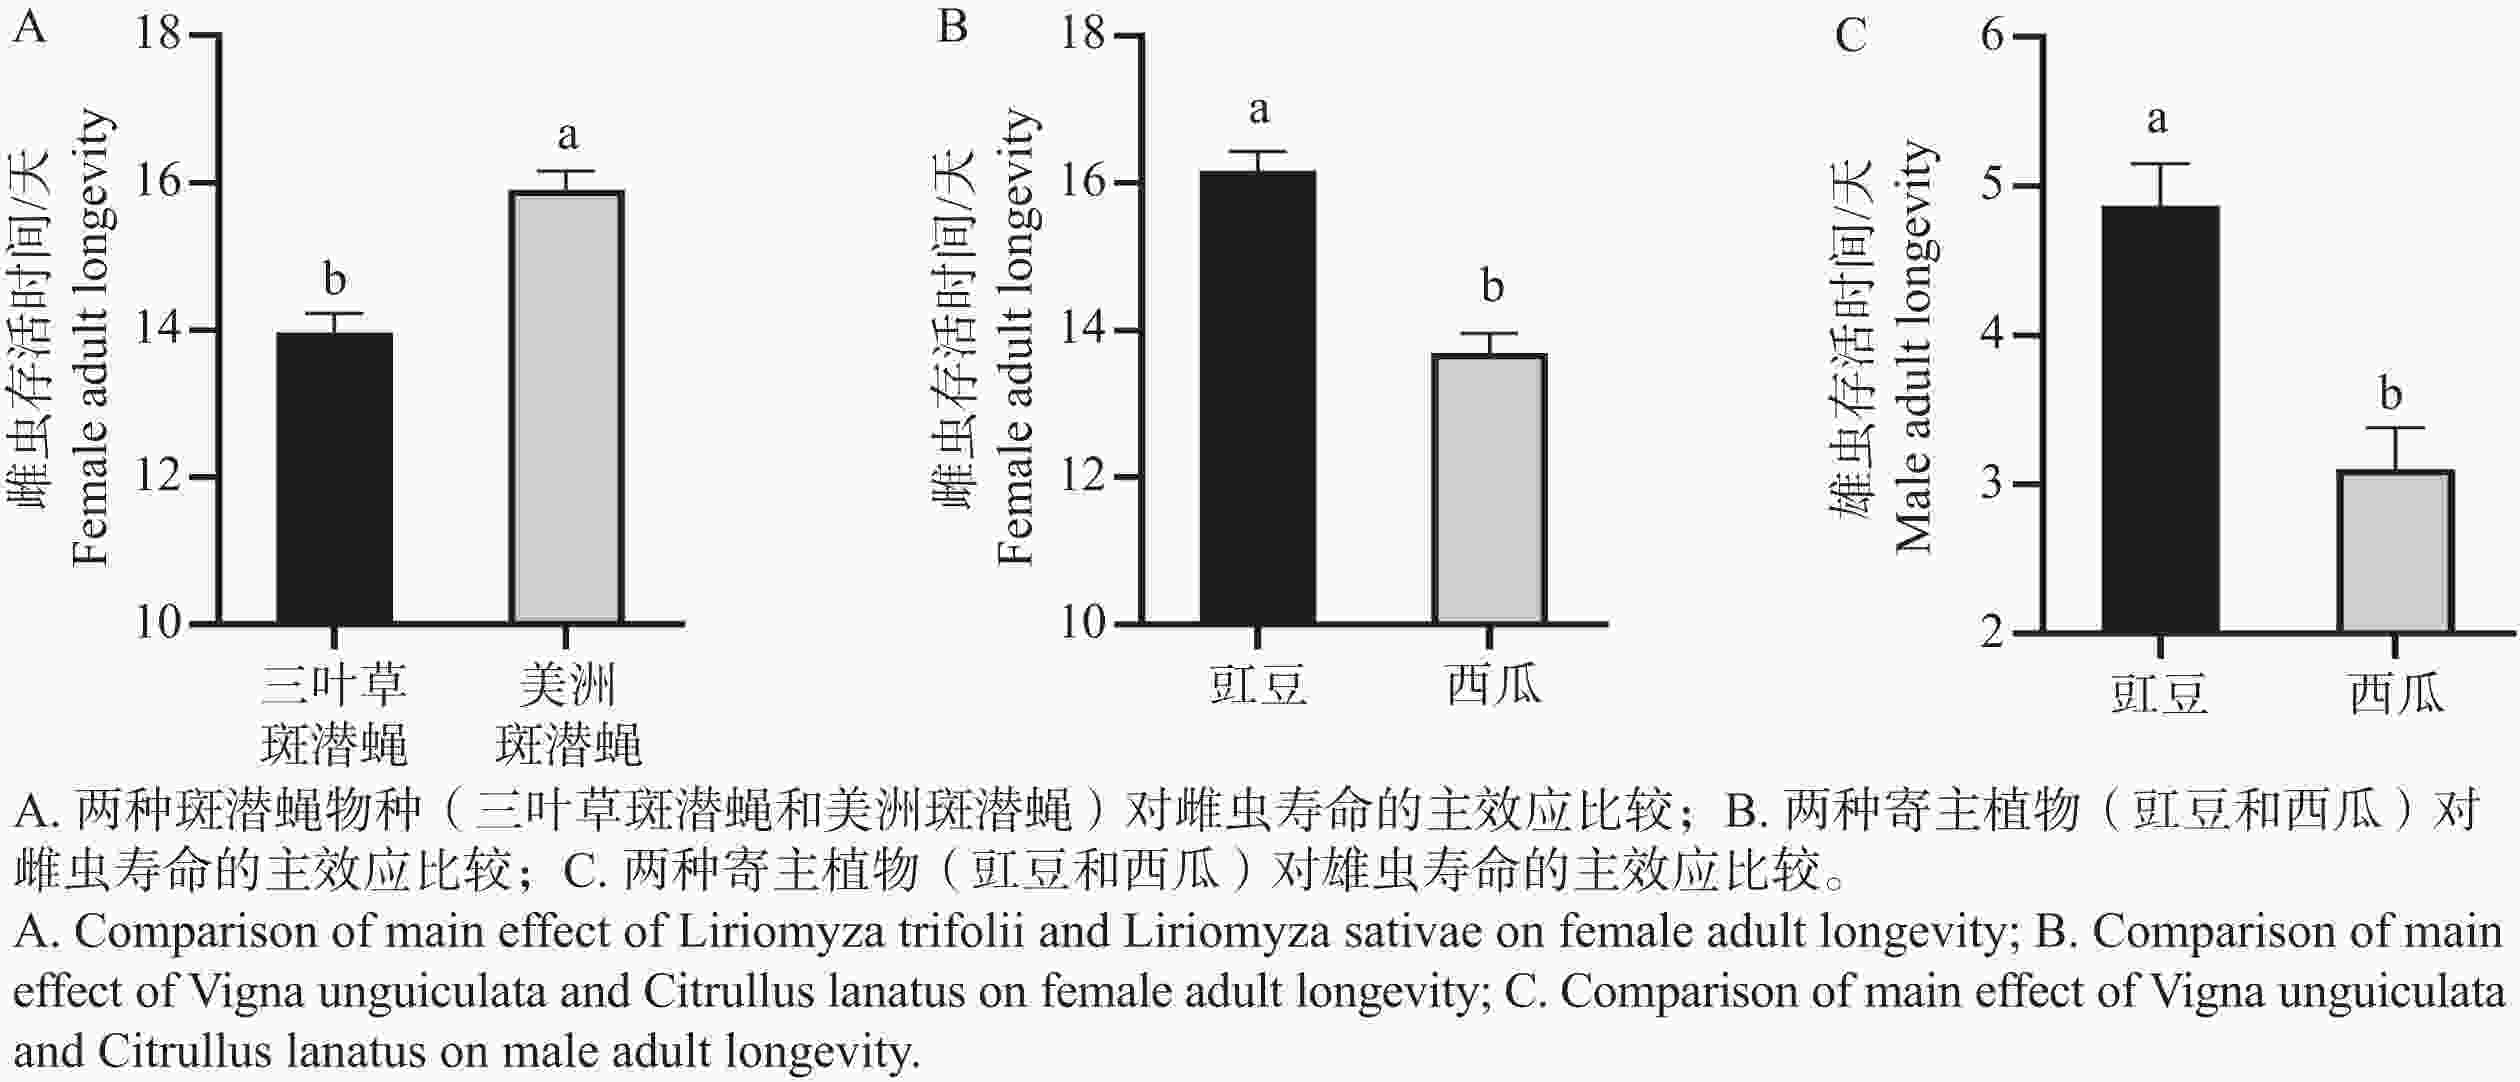
图 4 斑潜蝇物种和寄主植物对成虫寿命的影响
Figure 4. Effect of Liriomyza species and host plants on pupal length
-
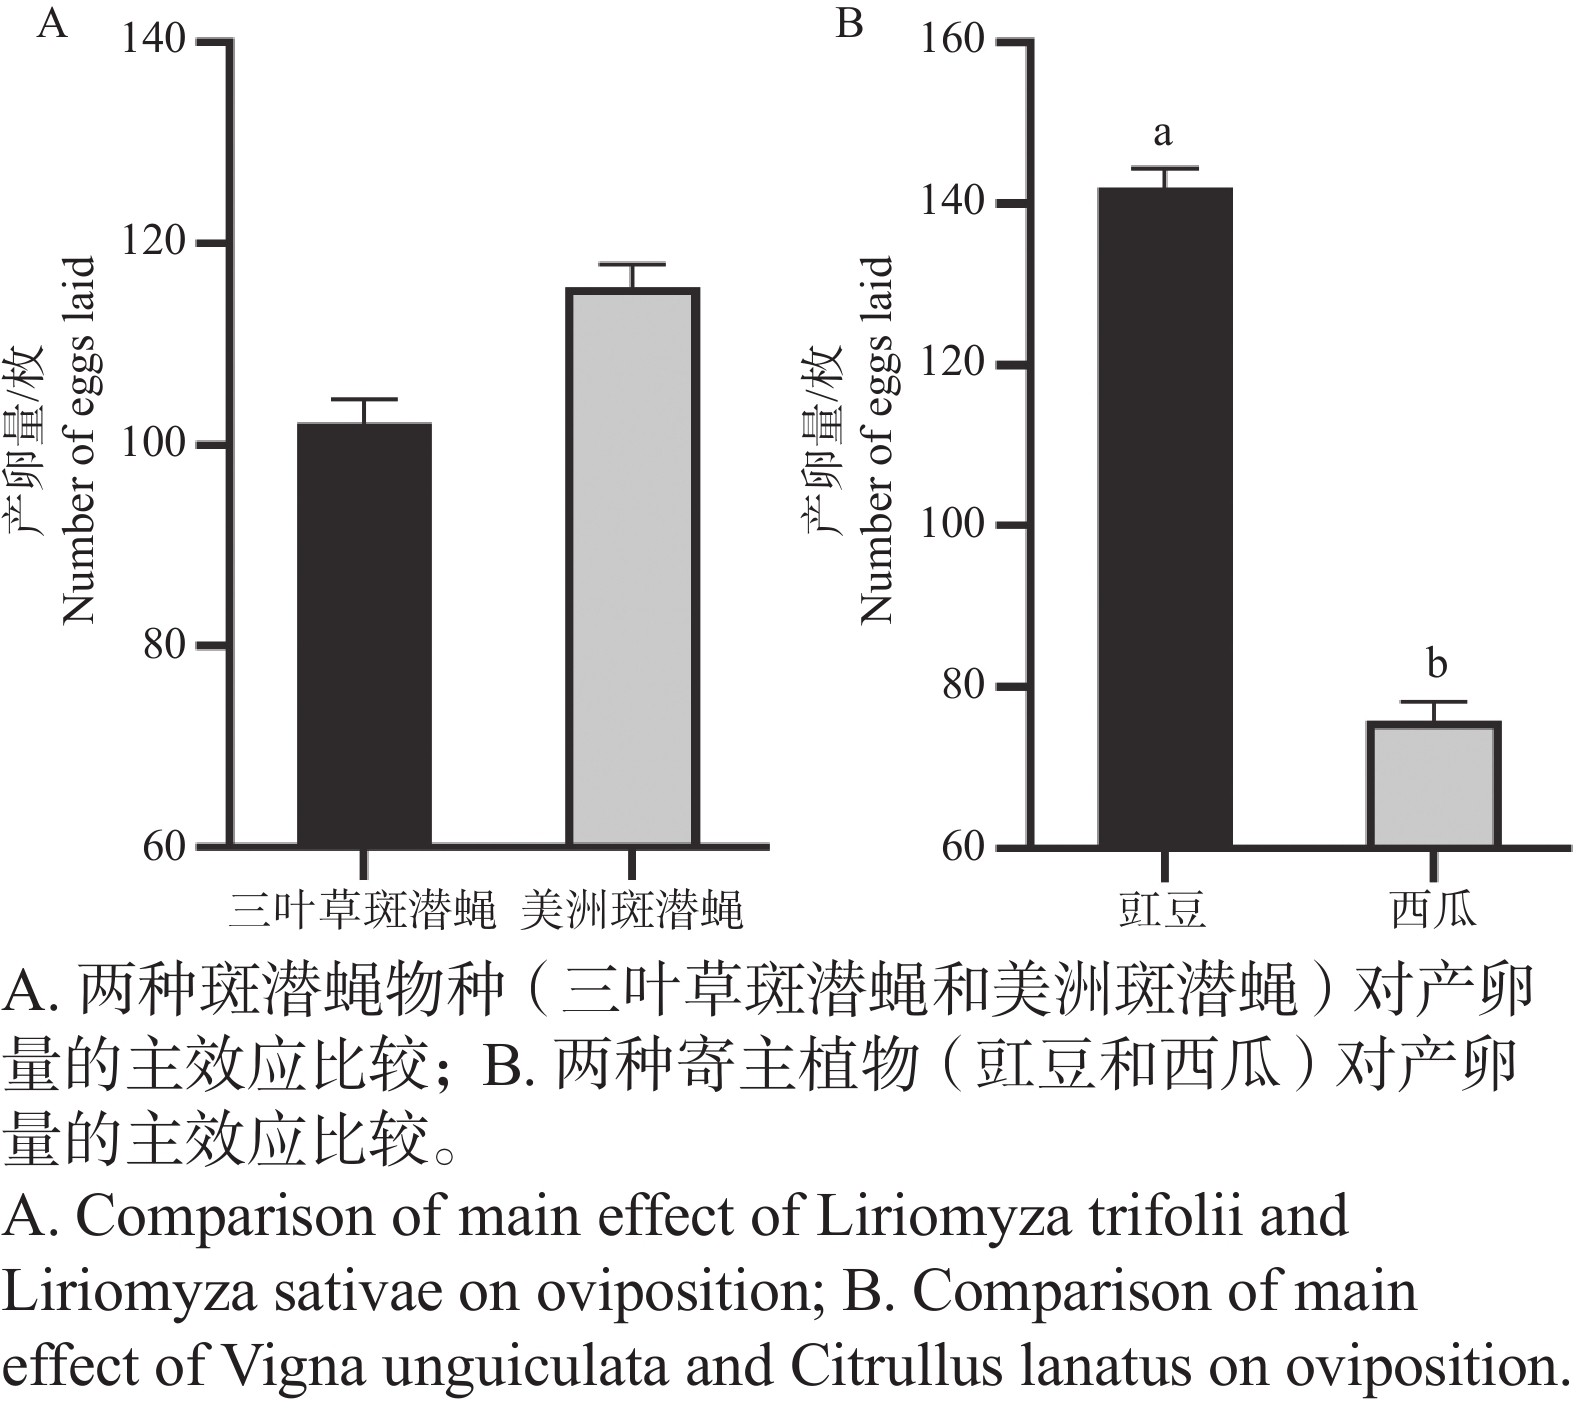
针对产卵量的双因素方差分析结果显示,斑潜蝇物种与寄主植物之间无显著交互作用(F1,56<0.01,P=0.960),但受到极显著的主效应影响(表2)。在不同斑潜蝇物种的主效应分析中,美洲斑潜蝇的产卵量显著高于三叶草斑潜蝇,显示出美洲斑潜蝇更强的繁殖力(图5-A)。而在不同寄主植物的主效应分析中,斑潜蝇在豇豆上的产卵量显著高于西瓜,表明斑潜蝇更倾向于选择豇豆进行繁殖(图5-B)。
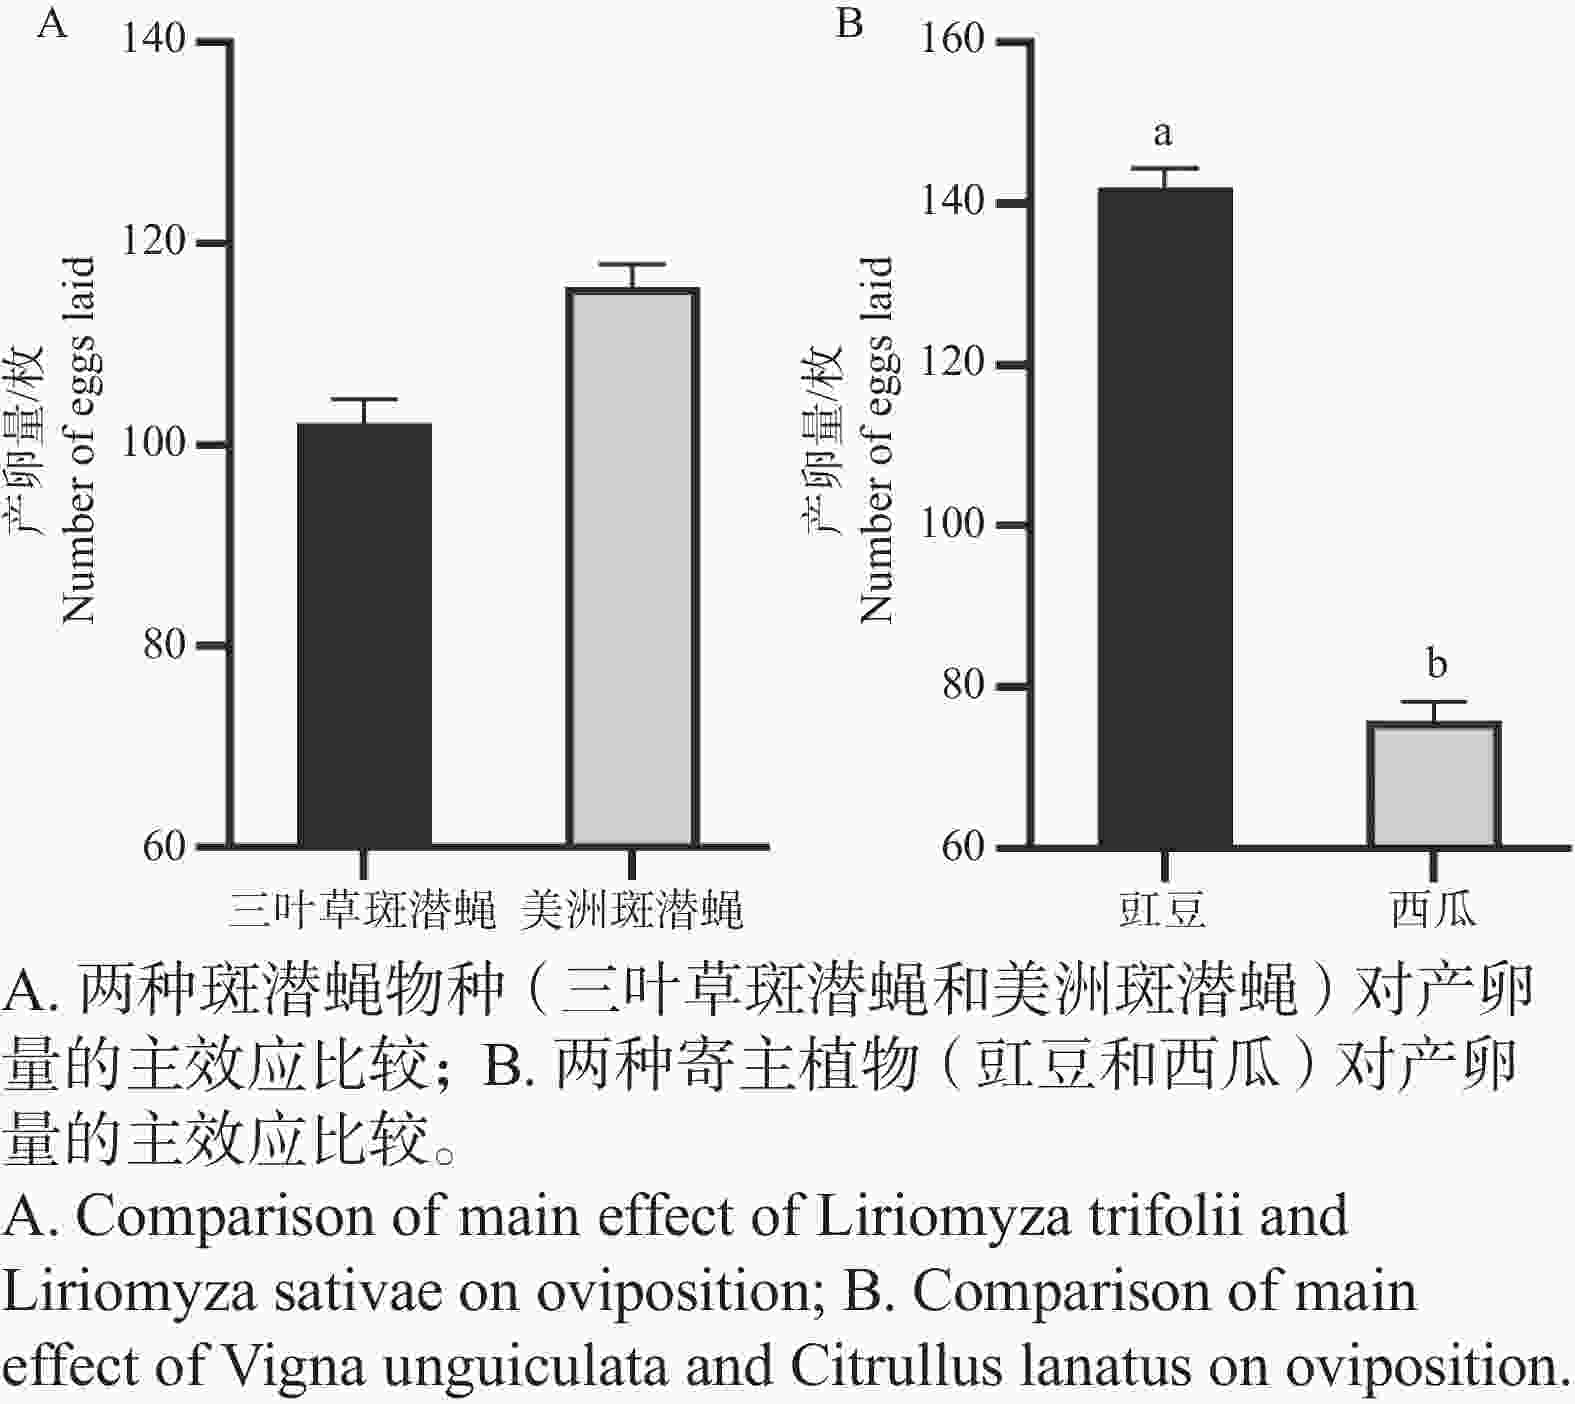
图 5 斑潜蝇物种和寄主植物对产卵量的影响
Figure 5. Main effects of Liriomyza species and host plants on oviposition
-
本研究系统调查了海南省主要地区斑潜蝇的寄主植物种类及其分布情况。结果表明,两种斑潜蝇在海南广泛分布且主要危害豆科和葫芦科植物。其中,豇豆为两种斑潜蝇最常见的寄主植物,在多个区域均有发生,表明其在海南地区斑潜蝇种群维持中起着关键作用;而葫芦科植物上,美洲斑潜蝇的发生要显著高于三叶草斑潜蝇。这与柳浩等[22]的结论一致,三叶草斑潜蝇在豆科植物豇豆上危害严重,在葫芦科植物冬瓜、丝瓜、黄瓜上的危害呈中等水平。田间调查结果进一步显示,两种斑潜蝇在不同寄主植物上的寄生特性存在明显差异,美洲斑潜蝇的寄主范围更广,不仅取食豆科植物,还取食多种葫芦科及茄科作物;而三叶草斑潜蝇则主要集中在豆科植物上,在海南地区的寄主选择相对狭窄。在肯尼亚地区的一项斑潜蝇调查发现,美洲斑潜蝇的寄主种类比三叶草斑潜蝇多,且两者寄主均集中在豆科和茄科作物[23],王禹程等[24]调查了江苏地区两种斑潜蝇的发生及分布情况,发现其主要在豆科植物上危害,原先嗜食的茄科作物危害等级整体减弱,而葫芦科作物上原本占优势的三叶草斑潜蝇也逐渐被美洲斑潜蝇取代。该结果与海南的情况较为类似,在海南地区田间实际调查中,茄科作物上斑潜蝇整体危害较轻,葫芦科作物上主要为美洲斑潜蝇为害。
三叶草斑潜蝇和美洲斑潜蝇的卵和幼虫的发育历期在西瓜上均显著短于豇豆,且以西瓜为寄主的美洲斑潜蝇历期要显著短于三叶草斑潜蝇;同时,在西瓜上的美洲斑潜蝇蛹长和蛹宽也显著大于豇豆寄主。然而,两种斑潜蝇蛹的历期在豇豆上均显著短于西瓜,并进而影响到整个发育历期的总时长,且三叶草斑潜蝇对西瓜的利用程度表现出明显劣势。这可能是由于西瓜在为斑潜蝇幼虫提供充足营养物质的同时也有远高于豇豆的葫芦素等抗虫次生代谢物质,导致其虽然在幼虫期所需发育时间减少,但在蛹期需要消耗更多时间和能量弥补幼虫期所受到的影响,而美洲斑潜蝇对于西瓜的利用要优于三叶草斑潜蝇。在Dmitriew[25]的研究中认为某些昆虫在幼虫期缩短发育所需时间的确会提高世代更新速率,但是通常也伴随着更高的解毒代谢成本和免疫修复能力的降低,从而导致幼虫期显著缩短而蛹期延长的现象。庞保平等[26]测定了美洲斑潜蝇在葫芦科植物黄瓜以及豆科植物豇豆、菜豆等寄主植物上的生物学数据,结果表明美洲斑潜蝇在黄瓜上的蛹期显著长于其他寄主植物,在菜豆上的发育历期最短。在Araujo等[27]的研究当中同样指出美洲斑潜蝇取食葫芦科植物的蛹期相较于取食豆科植物有所延长,因此,寄主植物对斑潜蝇蛹期发育的影响可能是其影响斑潜蝇生长发育的主要因素。斑潜蝇在葫芦科植物上更长的蛹期窗口期也为针对蛹期防治提供了更多可能。
繁殖方面,两种斑潜蝇雌雄成虫寿命以及雌虫产卵量均表现为豇豆显著优于西瓜,表明豇豆是斑潜蝇更适宜寄主。在两种斑潜蝇对雌虫寿命及产卵量的主效应比较分析中显示,美洲斑潜蝇雌虫寿命及产卵量均显著高于三叶草斑潜蝇,显示出美洲斑潜蝇的繁殖能力优于三叶草斑潜蝇。Tokumaru和Abe[28]在对比美洲斑潜蝇和三叶草斑潜蝇在不同寄主植物上的发育和选择后同样得出美洲斑潜蝇总繁殖力高于三叶草斑潜蝇。
以上研究结果表明,豇豆和西瓜对两种斑潜蝇生长发育及繁殖具有显著差异的影响,同时两种斑潜蝇对不同寄主植物的适应能力也存在明显差异。相较而言,西瓜对两种斑潜蝇的发育和繁殖更为不利。研究认为,葫芦科植物对美洲斑潜蝇的抗虫效果优于豆科植物,且同属不同品种植物的抗虫性也存在较大差异[29],这可能与葫芦科植物含有葫芦素、单宁等对昆虫具有毒害作用的次生代谢物质有关[30]。然而,美洲斑潜蝇却能更好的适应并抵消这种不利影响。王禹程等[24]同样认为,相比三叶草斑潜蝇,美洲斑潜蝇在葫芦科植物上的优势逐渐增强。
-
本研究通过比较海南地区三叶草斑潜蝇和美洲斑潜蝇在豇豆和西瓜两种寄主植物上的生物学特性差异,表明寄主植物显著影响了这两种近缘斑潜蝇的生长发育及繁殖能力,结果显示,豇豆是两种斑潜蝇的更适宜寄主,而在西瓜上,美洲斑潜蝇能够更好的适应并加以利用。这些发现为理解斑潜蝇的寄主适应性及制定针对性防治措施提供了重要依据。
不同寄主植物对海南两种入侵斑潜蝇生长发育和繁殖的影响
DOI: 10.15886/j.cnki.rdswxb.20250162
 CSTR: 32425.14.j.cnki.rdswxb.20250162
Effects of different host plants on the development and reproduction of two invasive Liriomyza species in Hainan
-
摘要: 为明确海南地区三叶草斑潜蝇和美洲斑潜蝇的寄主适应性差异,本研究结合田间调查与室内饲养,系统比较了两种斑潜蝇在不同寄主植物(豇豆和西瓜)上的生物学特性。田间调查显示,在海南三叶草斑潜蝇主要为害豆科植物,而美洲斑潜蝇广布于豆科和葫芦科植物,寄主范围更广。室内结果表明,两者在两种寄主上的各阶段存活率均超85%且无显著差异。发育历期方面,西瓜上的卵和幼虫期显著短于豇豆,但蛹期长于豇豆,且美洲斑潜蝇在西瓜上的优势更明显。蛹形态方面,三叶草斑潜蝇蛹长、蛹宽和蛹重显著大于美洲斑潜蝇,其主要差异为物种间固有,但美洲斑潜蝇在西瓜上具有更高的适合度。繁殖方面,两者在豇豆上的雌虫寿命和产卵量均显著优于西瓜,其中美洲斑潜蝇在豇豆上的表现显著优于三叶草斑潜蝇。研究表明,寄主植物显著影响两者的发育与繁殖,豇豆较西瓜更适生,且美洲斑潜蝇具有更强的繁殖潜能与寄主适应性。本研究结果为阐明两种斑潜蝇在海南地区的生态竞争关系及制定差异化综合防控策略提供了科学依据。Abstract: To clarify the difference in host adaptability between Liriomyza trifolii and Liriomyza sativae in Hainan, field surveys and laboratory rearing were conducted to compare the biological characteristics of two Liriomyza species on different host plants (Vigna unguiculata and Citrullus lanatus). Field surveys in Hainan showed that L. trifolii mainly infested Fabaceae plants, whereas L. sativae occurred on both Fabaceae and Cucurbitaceae crops, reflecting a broader host range. Laboratory results indicated that the survival rates of both the Liriomyza species exceeded 85% with no significant difference observed across all developmental stages on the two hosts. In terms of developmental duration, the egg and larval stages of the two species were significantly shorter on C. lanatus than on V. unguiculata, while the pupal stage was longer on C. lanatus. L. trifolii was greater in pupal length, width, and weight than L. sativae, the difference of which was primarily attributed to inherent interspecific variation. However, L. sativae exhibited higher adaptability on C. lanatus. In terms of reproduction, both the species had higher female longevity and fecundity on V. unguiculata, and L. sativae showed significantly higher reproductive performance than L. trifolii. All these results demonstrates that host plants strongly affected the development and reproduction of the two Liriomyza species, with V. unguiculata being more suitable than C. lanatus. Additionally, L. sativae exhibits superior reproductive potential and host adaptability. These findings provide a scientific basis for elucidating the ecological competition between the two Liriomyza species in Hainan and for developing targeted integrated management strategies.
-
Key words:
- Liriomyza trifolii /
- Liriomyza sativae /
- tropical region /
- host adaptability /
- interspecific competition
-
图 2 斑潜蝇物种和寄主植物对蛹长的影响
Fig. 2 Effect of Liriomyza species and host plants on pupal length
图 4 斑潜蝇物种和寄主植物对成虫寿命的影响
Fig. 4 Effect of Liriomyza species and host plants on pupal length
图 5 斑潜蝇物种和寄主植物对产卵量的影响
Fig. 5 Main effects of Liriomyza species and host plants on oviposition
表 1 海南地区两种斑潜蝇田间种群及其寄主植物分布
Table 1 Field populations and host plant distribution of two Liriomyza species in Hainan
调查地点
Location调查时间
Date寄主植物
Host Plant三叶草斑潜蝇
L. trifolii美洲斑潜蝇
L. sativae三亚 2025-02-14 豇豆 豇豆、葫芦、南瓜 乐东 2025-02-23 豇豆 豇豆、黄瓜、西瓜 陵水 2025-03-18 − 冬瓜、圣女果 五指山 2025-04-04 豇豆、菜豆 豇豆、丝瓜、西瓜、南瓜 儋州 2025-05-17 菜豆、西瓜 菜豆、西瓜 海口 2025-06-21 豇豆 豇豆 澄迈 2025-06-21 豇豆 菜豆 定安 2025-07-11 − 豇豆  下载: 导出CSV
表 2 斑潜蝇种类和寄主植物对各生物学参数影响的双因素方差分析
Table 2 Two-way ANOVA of the effects of Liriomyza species and host plants on various biological parameters
方差来源 Source of variation 自由度 df F值 F-value P值 P-value 孵化率 Hatching rate 物种 Species 1, 8 0.84 0.386 寄主植物 Host Plant 1, 8 7.38 0.226 物种×寄主植物 S×HP 1, 8 2.30 0.168 化蛹率 Pupation rate 物种 Species 1, 8 0.57 0.471 寄主植物 Host Plant 1, 8 0.46 0.518 物种×寄主植物 S×HP 1, 8 1.57 0.245 羽化率 Emergence rate 物种 Species 1, 8 0.02 0.883 寄主植物 Host Plant 1, 8 0.10 0.763 物种×寄主植物 S×HP 1, 8 0.25 0.628 卵期 Egg stage 物种 Species 1, 356 80.44 <0.001 寄主植物 Host Plant 1, 356 155.71 <0.001 物种×寄主植物 S×HP 1, 356 36.48 <0.001 幼虫期 Larval stage 物种 Species 1, 331 13.60 <0.001 寄主植物 Host Plant 1, 331 72.61 <0.001 物种×寄主植物 S×HP 1, 331 17.08 <0.001 蛹期 Pupal stage 物种 Species 1, 300 13.27 <0.001 寄主植物 Host Plant 1, 300 525.23 <0.001 物种×寄主植物 S×HP 1, 300 128.19 <0.001 总发育历期 Total developmental duration 物种 Species 1, 291 1.84 0.176 寄主植物 Host Plant 1, 291 3.84 0.051 物种×寄主植物 S×HP 1, 291 4.48 0.035 蛹长 Pupal length 物种 Species 1, 300 47.66 <0.001 寄主植物 Host Plant 1, 300 11.92 0.001 物种×寄主植物 S×HP 1, 300 3.37 0.068 蛹宽 Pupal width 物种 Species 1, 303 65.14 <0.001 寄主植物 Host Plant 1, 303 12.47 <0.001 物种×寄主植物 S×HP 1, 303 6.59 0.011 蛹重 Pupal weight 物种 Species 1, 36 18.86 <0.001 寄主植物 Host Plant 1, 36 3.90 0.056 物种×寄主植物 S×HP 1, 36 0.62 0.435 雌虫寿命 Female adult longevity 物种 Species 1, 56 27.04 <0.001 寄主植物 Host Plant 1, 56 44.01 <0.001 物种×寄主植物 S×HP 1, 56 0.13 0.721 雄虫寿命 Male adult longevity 物种 Species 1, 56 0.01 0.935 寄主植物 Host Plant 1, 56 19.09 <0.001 物种×寄主植物 S×HP 1, 56 1.15 0.288 产卵量 Number of eggs laid 物种 Species 1, 56 16.74 <0.001 寄主植物 Host Plant 1, 56 406.13 <0.001 物种×寄主植物 S×HP 1, 56 <0.01 0.960 注:df:自由度(分子自由度df,分母自由度df)。F值:每个方差来源计算的 F 统计量。S×HP:代表斑潜蝇物种和寄主植物之间的交互作用。P值小于0.05表示存在显著的效应或交互作用。 Note: df: Degrees of freedom(numerator df, denominator df). F-value: The F-statistic calculated for each source of variation. S×HP: The interaction effect between Liriomyza species and host plant. P-value less than 0.05 indicates a significant effect or interaction.
下载: 导出CSV
表 3 两种斑潜蝇在不同寄主植物上的孵化率、化蛹率、羽化率
Table 3 Hatching, pupation, and emergence rates of two Liriomyza species on different host plants
发育指标
Developmental indices三叶草斑潜蝇 L. trifolii 美洲斑潜蝇 L. sativae 豇豆 V. unguiculata 西瓜 C. lanatus 豇豆 V. unguiculata 西瓜 C. lanatus 孵化率 Hatching rate/% 93.3 ± 2.0 85.5 ± 2.2 92.2 ± 1.1 90.0 ± 1.9 化蛹率 Pupation rate/% 92.0 ± 1.2 87.8 ± 1.1 90.9 ± 3.9 92.2 ± 1.1 羽化率 Emergence rate/% 91.4 ± 2.5 89.7 ± 1.0 90.0 ± 2.2 90.4 ± 2.4
下载: 导出CSV
表 4 两种斑潜蝇在不同寄主植物上发育历期分析
Table 4 Two-way ANOVA of the effects of two Liriomyza species and host plant on developmental duration
发育时间
Developmental time三叶草斑潜蝇 L. trifolii 美洲斑潜蝇 L. sativae 豇豆 V. unguiculata 西瓜 C. lanatus 豇豆 V. unguiculata 西瓜 C. lanatus 卵期 Egg stage 4.0 ± 0.04a A 3.2 ± 0.04b A 3.4 ± 0.04a B 3.1 ± 0.04b B 幼虫期 Larval stage 4.1 ± 0.04a A 3.9 ± 0.06b A 4.2 ± 0.05a A 3.6 ± 0.04b B 蛹期 Pupal stage 7.4 ± 0.04b B 8.9 ± 0.06a A 8.1 ± 0.04b A 8.6 ± 0.05a B 发育历期 Developmental duration 15.1 ± 0.29b A 16.0 ± 0.17a A 15.1 ± 0.31a A 15.2 ± 0.08a B 注:小写字母表示在同一昆虫物种内,比较不同寄主植物的简单效应分析结果(P<0.05);大写字母表示在同一寄主植物内,比较不同昆虫物种的简单效应分析结果(P<0.05);所有比较基于同一发育阶段进行。下同。 Note: Lowercase letters indicate comparison of the results of simple effect analysis of different host plants within the same insect species (P < 0.05). Uppercase letters indicate comparison of the results of simple effect analysis of different insect species within the same host plant (P < 0.05). All comparisons are based on the same developmental stage. Similarly hereinafter.
下载: 导出CSV
-
[1] Parrella M P. Biology of Liriomyza[J]. Annual Review of Entomology, 1987, 32: 201−224. https://doi.org/10.1146/annurev.en.32.010187.001221 doi: 10.1146/annurev.en.32.010187.001221 [2] Hespenheide H A. Bionomics of leaf-mining insects[J]. Annual Review of Entomology, 1991, 36: 535−560. https://doi.org/10.1146/annurev.en.36.010191.002535 doi: 10.1146/annurev.en.36.010191.002535 [3] 问锦曾, 王音, 雷仲仁. 美洲斑潜蝇中国新纪录[J]. 昆虫分类学报, 1996, 18(4): 311−312. [4] 汪兴鉴, 黄顶成, 李红梅, 等. 三叶草斑潜蝇的入侵、鉴定及在中国适生区分析[J]. 昆虫知识, 2006, 43(4): 540−545. https://doi.org/10.3969/j.issn.0452-8255.2006.04.026 doi: 10.3969/j.issn.0452-8255.2006.04.026 [5] 雷仲仁, 朱灿健, 张长青. 重大外来入侵害虫三叶斑潜蝇在中国的风险性分析[J]. 植物保护, 2007, 33(1): 37−41. https://doi.org/10.3969/j.issn.0529-1542.2007.01.010 doi: 10.3969/j.issn.0529-1542.2007.01.010 [6] Chang Y W, Chen J Y, Lu M X, et al. Cloning and expression of genes encoding heat shock proteins in Liriomyza trifolii and comparison with two congener leafminer species[J]. PLoS One, 2017, 12(7): e0181355. https://doi.org/10.1371/journal.pone.0181355 doi: 10.1371/journal.pone.0181355 [7] 邢振龙. 三叶斑潜蝇在我国的入侵扩散及其与美洲斑潜蝇的竞争取代[D]. 北京: 中国农业大学, 2018. [8] Kang L, Chen B, Wei J N, et al. Roles of thermal adaptation and chemical ecology in Liriomyza distribution and control[J]. Annual Review of Entomology, 2009, 54: 127−145. https://doi.org/10.1146/annurev.ento.54.110807.090507 doi: 10.1146/annurev.ento.54.110807.090507 [9] 罗丰, 肖春雷, 刘勇, 等. 3种外来斑潜蝇入侵机理研究进展[J]. 中国农学通报, 2013, 29(24): 167−171. https://doi.org/10.3969/j.issn.1000-6850.2013.24.031 doi: 10.3969/j.issn.1000-6850.2013.24.031 [10] 万综. 重大外来有害生物: 三叶斑潜蝇[J]. 福建农业, 2009(11): 17. [11] 王爽, 许如意, 刘勇, 等. 海南豇豆主要病虫害的发生及防治技术[J]. 长江蔬菜, 2016(19): 52−54. https://doi.org/10.3865/j.issn.1001-3547.2016.19.025 doi: 10.3865/j.issn.1001-3547.2016.19.025 [12] Spencer K A. Agromyzidae (Diptera) of Economic Importance[M]. Dordrecht: Springer, 1973: 1−418. https://doi.org/10.1007/978-94-017-0683-4 [13] 田帅. 美洲斑潜蝇发生规律与防治[J]. 吉林蔬菜, 2018(10): 29−30. https://doi.org/10.16627/j.cnki.cn22-1215/s.2018.10.022 doi: 10.16627/j.cnki.cn22-1215/s.2018.10.022 [14] 张学利. 美洲斑潜蝇的发生特点及防治[J]. 现代农业, 2020(1): 50. https://doi.org/10.14070/j.cnki.15-1098.2020.01.031 doi: 10.14070/j.cnki.15-1098.2020.01.031 [15] 朱新利, 谢宗远, 程乐庆, 等. 豫东地区设施黄瓜美洲斑潜蝇的发生及综合防治技术[J]. 特种经济动植物, 2024, 27(12): 114−116. https://doi.org/10.3969/j.issn.1001-4713.2024.12.038 doi: 10.3969/j.issn.1001-4713.2024.12.038 [16] 吕延超, 廖道龙, 陈贻诵, 等. 海南蔬菜产业发展现状及其对策[J]. 特种经济动植物, 2020, 23(10): 44−47. https://doi.org/10.3969/j.issn.1001-4713.2020.10.023 doi: 10.3969/j.issn.1001-4713.2020.10.023 [17] 成善汉, 汪志伟, 朱国鹏. 海南省蔬菜产业发展现状及对策[J]. 中国蔬菜, 2019(6): 16−20. https://doi.org/10.19928/j.cnki.1000-6346.2019.06.004 doi: 10.19928/j.cnki.1000-6346.2019.06.004 [18] 海南省统计局, 国家统计局海南调查总队. 海南统计年鉴2024[M]. 北京: 中国统计出版社, 2024. [19] SHIAO S F. Morphological diagnosis of six Liriomyza species (Diptera: Agromyzidae) of quarantine importance in Taiwan[J]. Applied Entomology and Zoology, 2004, 39(1): 27−39. https://doi.org/10.1303/aez.2004.27 doi: 10.1303/aez.2004.27 [20] 陈景芸. 五种斑潜蝇形态特征比较研究及重要种的遗传结构分析[D]. 扬州: 扬州大学, 2019. https://doi.org/10.27441/d.cnki.gyzdu.2019.001936 [21] Nakamura S, Masuda T, Mochizuki A, et al. Primer design for identifying economically important Liriomyza species (Diptera: Agromyzidae) by multiplex PCR[J]. Molecular Ecology Resources, 2013, 13(1): 96−102. https://doi.org/10.1111/1755-0998.12025 doi: 10.1111/1755-0998.12025 [22] 柳浩, 刘春燕, 李宁东, 等. 中山市三叶斑潜蝇寄主种类及危害情况[J]. 广东农业科学, 2021, 39(7): 92−96. https://doi.org/10.3969/j.issn.1004-874X.2012.07.033 doi: 10.3969/j.issn.1004-874X.2012.07.033 [23] Foba C N, Salifu D, Lagat Z O, et al. Species composition, distribution, and seasonal abundance of Liriomyza leafminers (Diptera: Agromyzidae) under different vegetable production systems and agroecological zones in Kenya[J]. Environmental Entomology, 2015, 44(2): 223−232. https://doi.org/10.1093/ee/nvu065 doi: 10.1093/ee/nvu065 [24] 王禹程, 常亚文, 袁嘉雯, 等. 江苏地区2种入侵性斑潜蝇的发生分布及耐药性[J]. 扬州大学学报(农业与生命科学版), 2024, 45(1): 123−132. https://doi.org/10.16872/j.cnki.1671-4652.2024.01.016 doi: 10.16872/j.cnki.1671-4652.2024.01.016 [25] Dmitriew C M. The evolution of growth trajectories: what limits growth rate?[J]. Biological Reviews, 2011, 86(1): 97−116. https://doi.org/10.1111/j.1469-185X.2010.00136.x doi: 10.1111/j.1469-185X.2010.00136.x [26] 庞保平, 程家安, 黄恩友, 等. 不同寄主植物对美洲斑潜蝇种群参数的影响[J]. 植物保护, 2005, 32(2): 26−28. https://doi.org/10.3969/j.issn.0529-1542.2005.02.006 doi: 10.3969/j.issn.0529-1542.2005.02.006 [27] Araujo E L, Nogueira C H F, Menezes Netto A C, et al. Biological aspects of the leafminer Liriomyza sativae (Diptera: Agromyzidae) on melon (Cucumis melo L.)[J]. Ciência Rural, 2013, 43(4): 579−582. https://doi.org/10.1590/S0103-84782013000400003 doi: 10.1590/S0103-84782013000400003 [28] Tokumaru S, Abe Y. Effects of host plants on the development and host preference of Liriomyza sativae, L. trifolii, and L. bryoniae (Diptera: Agromyzidae)[J]. Japanese Journal of Applied Entomology and Zoology, 2005, 49(3): 135−142. https://doi.org/10.1303/jjaez.2005.135 doi: 10.1303/jjaez.2005.135 [29] 彭发青, 邓望喜. 美洲斑潜蝇寄主植物抗虫性初步研究[J]. 植物检疫, 2001, 15(1): 17−21. https://doi.org/10.3969/j.issn.1005-2755.2001.01.005 doi: 10.3969/j.issn.1005-2755.2001.01.005 [30] 成卫宁. 美洲斑潜蝇寄主植物抗虫机制初步研究[D]. 咸阳: 西北农林科技大学, 2004. -

 点击查看大图
计量
- 文章访问数: 2
- HTML全文浏览量: 3
- 被引次数: 0
