
 cstr:

-
达卡气单胞菌(Aeromonas dhakensis)是气单胞菌属中一个重要的革兰氏阴性杆菌,广泛分布于水生环境,可感染人类、鱼类及其他水生动物[1]。该菌于2002年首次从孟加拉国达卡地区腹泻儿童中被分离并描述,此后在全球范围内(尤其是沿海地区)被广泛报道[2]。由于商业表型鉴定方法(如API 20E、Vitek等)易将其误鉴为嗜水气单胞菌(Aeromonas hydrophila)、维氏气单胞菌(Aeromonas veronii)或豚鼠气单胞菌(Aeromonas caviae),其准确鉴定依赖于管家基因序列分析,如rpoD和gyrB(必要时辅以rpoB)测序[3]。
达卡气单胞菌对水产养殖动物具有显著致病性,是近年来备受关注的重要病原。笔者团队(疾病诊断与检测技术科研团队)从海南患病暹罗鳄体内分离出多株达卡气单胞菌,证实其携带气溶素、肠毒素等多种毒力基因,是导致鳄鱼死亡的重要病原菌之一[4]。随后,团队又从从牛蛙中分离到达卡气单胞菌,并对其毒力特性进行了系统分析[5]。近年来,随着水产养殖密度增加和气候变暖,由达卡气单胞菌引起的病害日益增多,达卡气单胞菌已成为热带及亚热带地区水产养殖业的重要威胁,然而,目前对该菌致病机制的了解仍十分有限[2]。
细菌致病性依赖多种毒力因子的协同作用。鞭毛是细菌的重要运动器官,也是介导宿主定植、生物被膜形成和免疫逃逸的关键结构[6]。鞭毛合成受双组分系统精密调控,其中FlrB/FlrC双组分系统是核心调控模块[7]:FlrB作为组氨酸激酶感知信号后发生自磷酸化,将磷酸基团传递给响应调节蛋白FlrC,磷酸化的FlrC激活鞭毛基因转录,完成鞭毛组装[8]。这一调控模式在弧菌属和气单胞菌属中高度保守。在霍乱弧菌中,FlrB/FlrC直接控制鞭毛蛋白及附属蛋白的表达,缺失任一基因均导致鞭毛合成障碍和运动性丧失[8];在溶藻弧菌中,flrB缺失同时降低运动能力和生物被膜形成[9];在维氏气单胞菌中,flrB促进生物被膜形成但不影响生长[10]。上述结果表明,FlrB/FlrC在气单胞菌属中是调控运动性及生物被膜形成的重要节点,但其功能在不同物种中存在差异,这值得我们关注。
目前,关于达卡气单胞菌毒力调控的研究已有一些报道。UvrY被鉴定为调控多种毒力因子(包括溶血素Ahh1)表达的关键因子[11];多粘菌素抗性相关基因arnA和ugd被证实参与鞭毛运动、生物被膜形成及毒力调控[7];KdpE响应调节子也被发现对该菌的致病性具有贡献[12]。然而,FlrB/FlrC在达卡气单胞菌中的功能尚无报道。
笔者团队前期从海南患病鳄鱼中分离出一株高毒达卡气单胞菌菌株C4-1,并完成了全基因组测序。在斑马鱼感染模型中,该野生株的半数致死量(LD50)为6.03×10⁵ CFU/fish,表现出较强的致病性[13]。基因组注释结果显示,flrB与flrC在C4-1基因组中相邻排列,编码产物分别含有组氨酸激酶和响应调节蛋白的典型结构域。值得注意的是,FlrB/FlrC在不同物种中的功能存在差异:在霍乱弧菌中,FlrC的磷酸化严格依赖FlrB,缺失任一基因均导致运动性丧失[8];而在嗜水气单胞菌中,ΔflrB和ΔflrC的泳动能力均无显著变化[14]。那么,在达卡气单胞菌C4-1中,FlrB/FlrC是否具有不同于其他物种的调控模式?FlrC是否可能不严格依赖FlrB的磷酸化激活?基于此,本研究提出科学假说:达卡气单胞菌C4-1中FlrC可能存在FlrB非依赖的激活途径,FlrB/FlrC双组分系统可能具有物种特异性的调控模式。本研究拟通过同源重组技术构建flrB、flrC单基因及flrBC双基因敲除株,系统评价各敲除株在生长、运动性、生物被膜形成、胞外多糖分泌及胞外毒力因子(溶血素、胞外蛋白酶)分泌等方面的表型变化,以期阐明flrBC在达卡气单胞菌中的生物学功能,为解析该菌致病调控网络提供实验依据。
-
达卡气单胞菌C4-1菌株、大肠杆菌WM3064、pRE112质粒均为本实验室自存。基因组提取试剂盒、质粒提取试剂盒、产物纯化回收试剂盒、无缝克隆试剂盒、2×PCR MIX 购自诺维赞生物科技有限公司; 二氨基庚二酸(水溶,母液浓度50 g·L−1,工作浓度50 μg·mL−1,−20℃保存)、氯霉素(乙醇溶,母液浓度25 g·L−1,工作浓度25 μg·mL−1,−20℃保存)、LB培养基(1% 蛋白胨、1% NaCL、0.5% 酵母提取物)购自索莱宝有限公司;PBS 缓冲液、结晶紫染料等均为国产分析纯,购自海南赞纳生物科技有限责任公司。试验中使用的引物见表1,均由擎科生物技术有限公司合成。
引物
名称 Primer引物序列 Primer sequence(5'—3') 注释 Annotation P1 tttgtcatgcagctctgctcatcctctacccgcagc flrB上游同源臂 P2 ggctcattgtcataaagctgacctcaaactggc UPstream fragment of flrB P3 ttatgacaatgagccatgttgagcgtcag flrB下游同源臂 P4 tacgcaccagaaaatgtagaccacggcccgtttct Downstream fragment of flrB P5 tttgtcatgcagctcagccttctgcgcccag flrC上游同源臂 P6 gtcgatcgctacacctcccaccacagc Upstream fragment of flrC P7 ggtgtagcgatcgacctgccagcctgag flrC下游同源臂 P8 tacgcaccagaaaatggcaggtgataggcaaacaggt Downstream fragment of flrC P9 tttgtcatgcagctctgctcatcctctacccgcagc flrBC上游同源臂 P10 tcgatccgctgtcataaagctgacctcaaactggc Upstream fragment of flrBC P11 atgacagcggatcgacctgccagcctgag flrBC下游同源臂 P12 tacgcaccagaaaatggcaggtgataggcaaacaggt Downstream fragment of flrBC P13 gccatggagtccctgatgcaatac flrBC鉴定引物 P14 ctcttgctgttccagggctcga flrBC identification primer P15 attttctggtgcgtaccgggt pRE112质粒线性化引物 P16 gagctgcatgacaaagtcatcgg pRE112 plasmid linearization primers Table 1. Primer sequence for gene knockout
-
FlrB和FlrC的氨基酸序列从NCBI数据库获取。使用CLUSTALW(
https://www.genome.jp/tools-bin/clustalw )进行多序列联配,采用MEGA11软件(https://www.megasoftware.net/ )通过邻接法(Neighbor-Joining)构建各蛋白的系统发育树,替换模型为Poisson correction,Bootstrap重复抽样1000 次。 -
通过同源重组法构建ΔflrB、ΔflrC和ΔflrBC基因缺失株。以ΔflrB缺失株构建为例,以达卡气单胞菌C4-1基因组DNA为模板,用引物P1/P2和P3/P4扩增flrB上下游同源臂,将提取的pRE112质粒用引物P13/P14进行线性化后再和上下游同源臂融合片段用同源重组酶连接,然后转化至大肠杆菌WM3064。将构建成功的WM3064-pRE112-flrB作为供体菌,达卡气单胞菌C4-1作为受体菌,进行接合转移。具体操作如下:供体菌和受体菌分别培养至对数生长期(OD600=0.4~0.6,约1×108 CFU·mL−1),用PBS洗涤2次后混合均匀。将混合液加到无抗含二氨基庚二酸LB平板上,37℃过夜培养后用PBS缓冲液冲洗,适当梯度稀释后涂布于氯霉素抗性平板上。37℃过夜培养待重组子出现,用引物P13/P14进行PCR验证,验证为阳性的单交换子在含有20 %蔗糖LB培养基中连续传代筛选。PCR鉴定结果为阴性即表明ΔflrB缺失株构建成功。双敲除菌株在ΔflrC缺失株基础上敲除flrB基因,使用P9/P10和P11/P12扩增其上下游同源臂,进行上述操作。
-
挑取野生型和敲除型的单菌落接种过夜活化,以2×10⁶ CFU·mL−1起始菌量转接至200 mL新鲜LB培养基中,150 r·min−1,30℃恒温培养18 h,每1 h取菌液检测OD600值。每组样品设置3个生物学重复,统计测量数据并绘制随时间变化的生长曲线,观察其生长情况。
-
参考Feng等[15]的实验方法,将过夜培养的野生株及各敲除株菌液用PBS缓冲液(pH 7.4)洗涤3次,调整OD600=1.0,按1∶100比例接种于新鲜LB培养基中,将每孔200 μL菌液加入96孔无菌板中,30℃静置培养24 h。培养结束后,取出菌液,用PBS缓冲液轻柔洗涤孔板3次以去除浮游菌体,于60℃烘箱中热固定。待孔板干燥后,每孔加入200 μL 0.1 %结晶紫染液,室温染色30 min,用PBS缓冲液洗去多余染液,于60℃干燥。随后每孔加入200 μL 95 %乙醇溶解附着于孔壁的结晶紫,室温孵育30 min,使用酶标仪测定OD590处的吸光值,同时测定各孔浮游菌的OD600值。生物被膜形成量(SBF)按公式计算。每组样品设3个生物学重复,以无菌LB培养基为空白对照。
-
参考王红等[16]的实验方法,将过夜培养的野生株及各敲除株菌液调整至OD600=0.5,稀释至1×10⁸ CFU·mL−1。取2.5 μL菌液,群游实验将菌液点种于含0.5 %琼脂的培养基表面,游动实验将菌液穿刺接种至0.3%琼脂的培养基一半深度,每株菌设3个平行,30℃正置培养12 h~24 h。用游标卡尺测量菌落直径,比较各菌株运动能力的差异。
-
采用刚果红吸附法测定各菌株胞外多糖分泌量。将过夜培养的野生株及各敲除株菌液按1∶100体积比转接至新鲜LB培养基中,培养至OD600=1.0。取2 mL菌液于室温(约25℃)下
12000 r·min−1离心1 min,去上清,用含40 μg·mL−1刚果红的LB液体重悬菌体,于30℃振荡培养12 h。离心后将菌体及其吸附的刚果红沉淀至底部,取上清液测定OD490值。以相同含40 μg·mL−1刚果红的LB液体OD490值作为阳性对照。胞外多糖吸附率按以下公式计算,吸附率越高,表示胞外多糖分泌量越大。每株菌设3个生物学重复。 -
参考Feng等[17]的实验方法,将过夜培养的野生株及各敲除株菌液调整至OD600=0.5,稀释至1×10⁸ CFU·mL−1。每孔加入5 μL菌液,每株菌设3个平行,30℃培养48 h。培养结束后,测量溶血圈直径,比较各菌株溶血活性的差异。
-
参考Shao等[18]的实验方法,将过夜培养的野生株及各敲除株菌液调整至OD600=0.5,稀释至1×10⁸ CFU·mL−1。取2.5 μL菌液点种于蛋白酶检测培养基平板表面,每株菌设3个平行,30℃培养24 h。培养结束后,测量蛋白溶解圈直径,比较各菌株胞外蛋白酶活性的差异。
-
所有数据均采用GraphPad Prism 8.0 统计软件分析,用单因素方差分析(One way ANOVA, Tukey HSD, α = 0.05)。
-
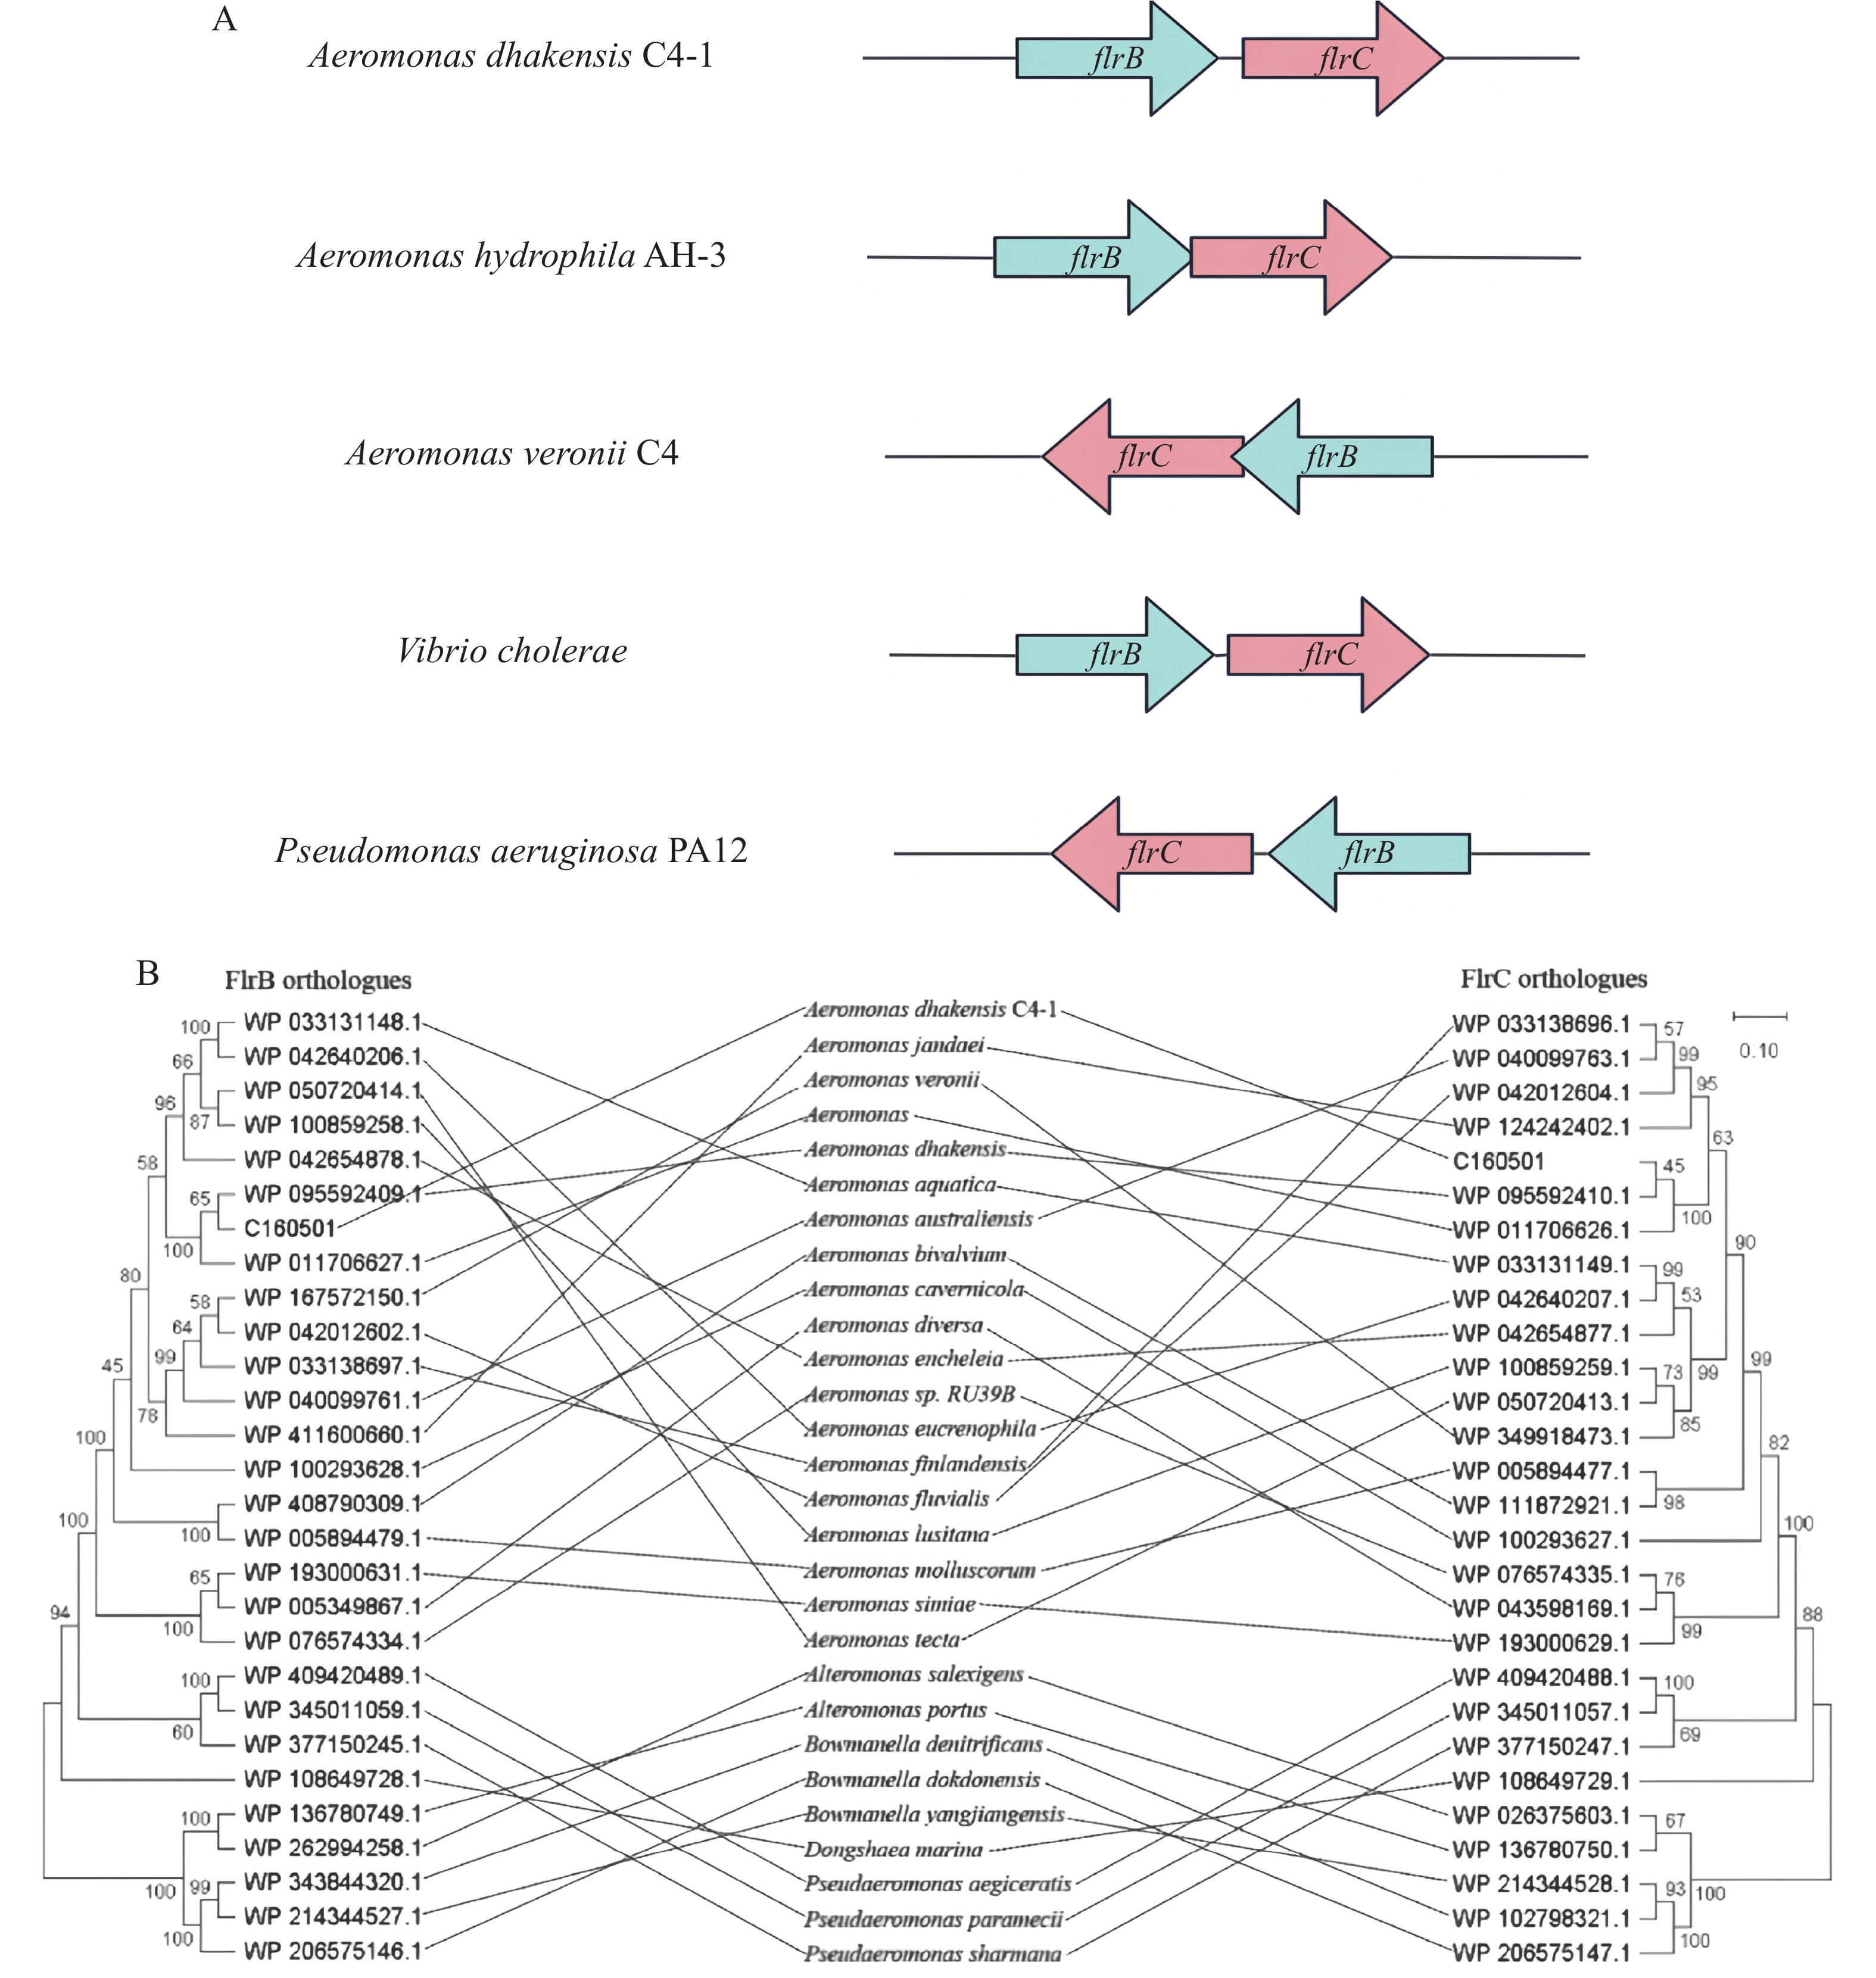
基因组序列显示,本研究所选取的代表性菌株中flrB和flrC在操纵子中直接相邻排列(图1-A)。系统发育分析表明,FlrBC是变形菌门中广泛分布的双组分系统,包括气单胞菌属、弧菌属、交替单胞菌属、鲍曼氏菌属及假单胞菌属,可能起源于共同的祖先(图1-B)。
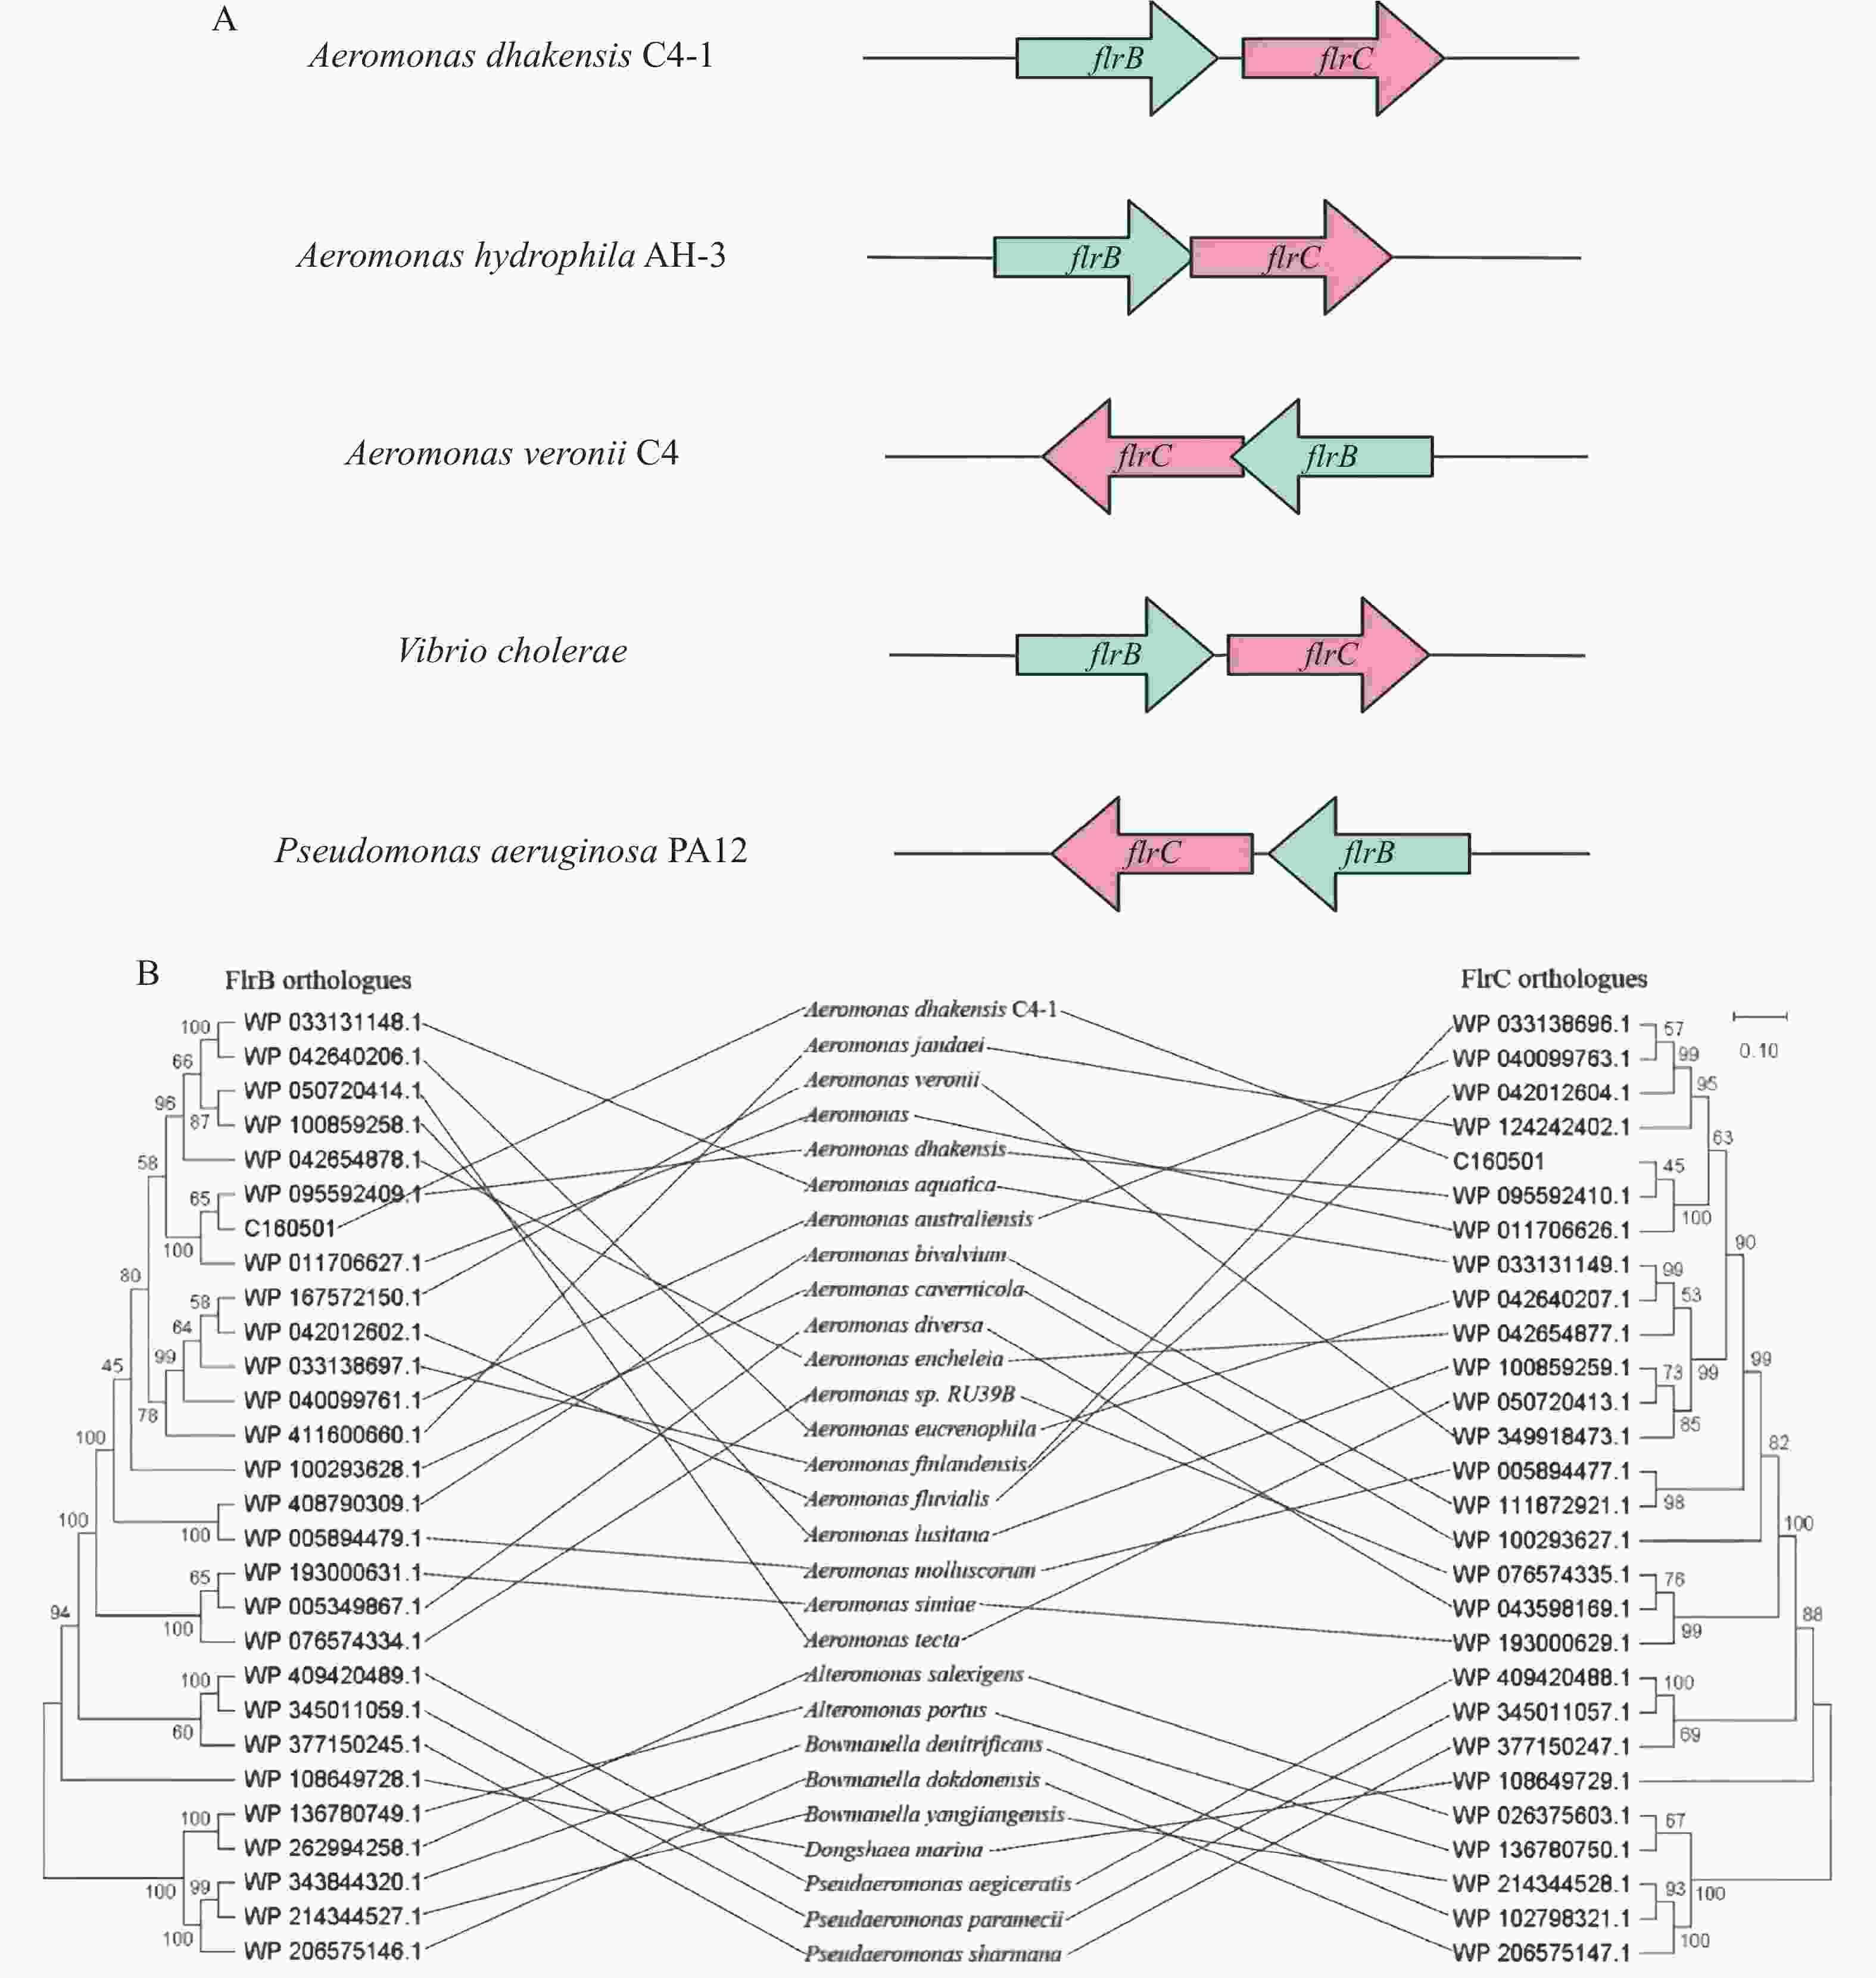
Figure 1. Genetic organization and phylogenetic tree of FlrBC two-component system
-
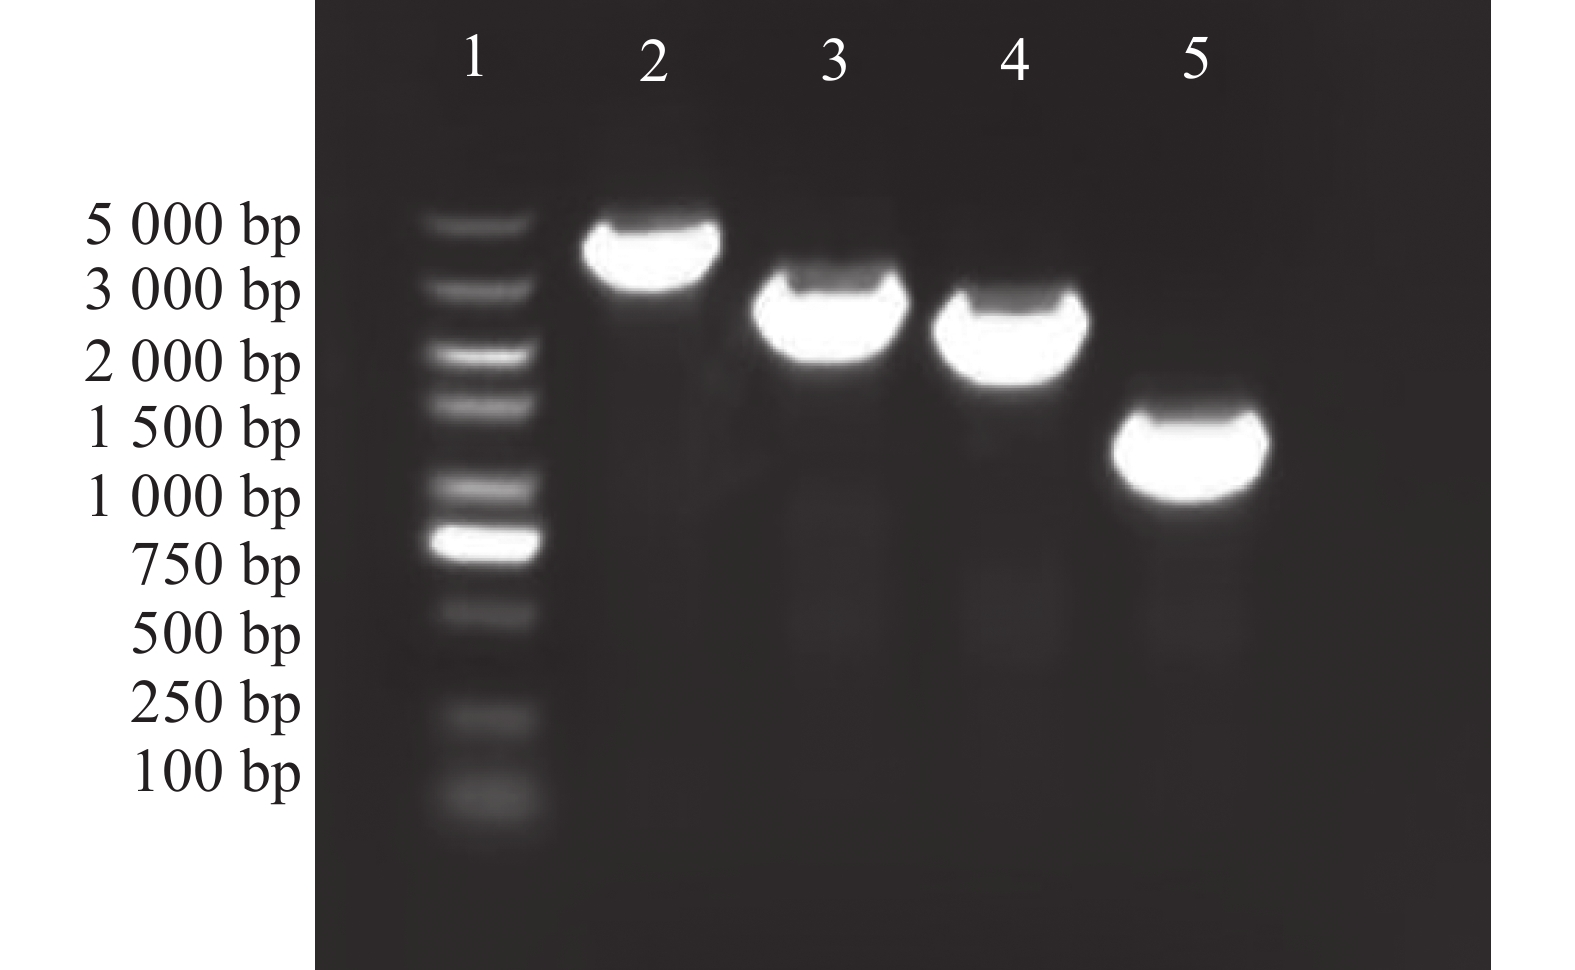
以达卡气单胞菌C4-1基因组为模板,通过flrBC基因外部引物(P13/P14)PCR扩增,野生型获得大约
3000 bp产物,ΔflrB产物为2000 bp,ΔflrC产物为1500 bp,ΔflrBC产物为500 bp,结果均与预期一致(图2)。进一步对上述PCR产物进行测序验证,测序结果确认了目标基因的缺失及同源重组序列的正确性,表明ΔflrB、ΔflrC和ΔflrBC缺失株均构建成功。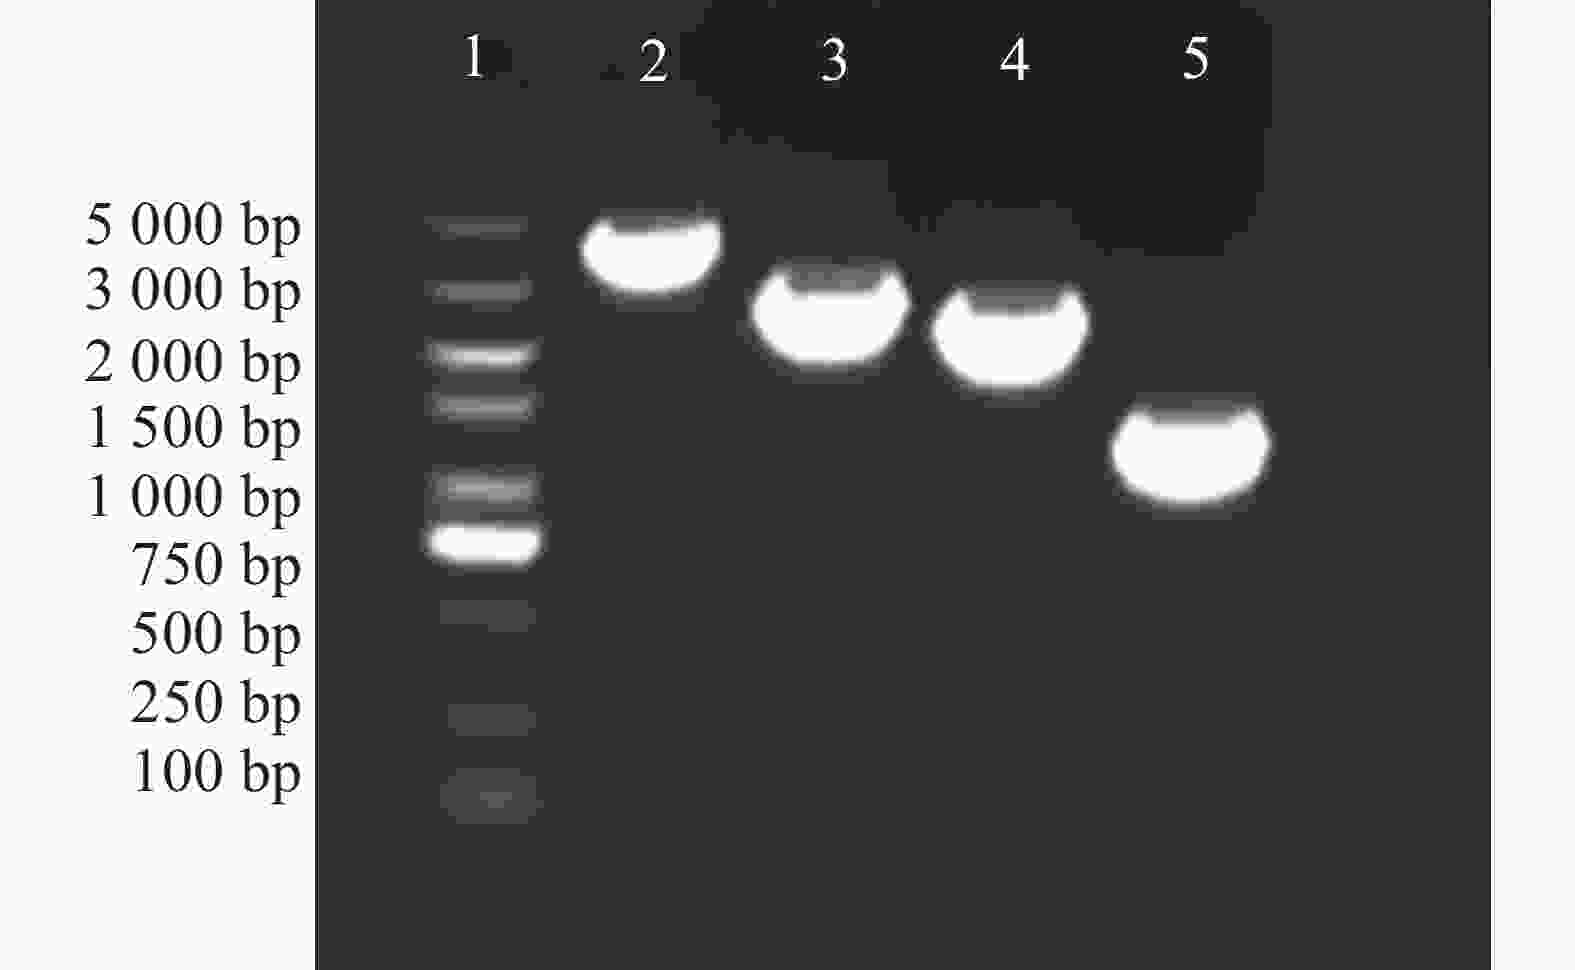
Figure 2. PCR verification of knockout mutants
-
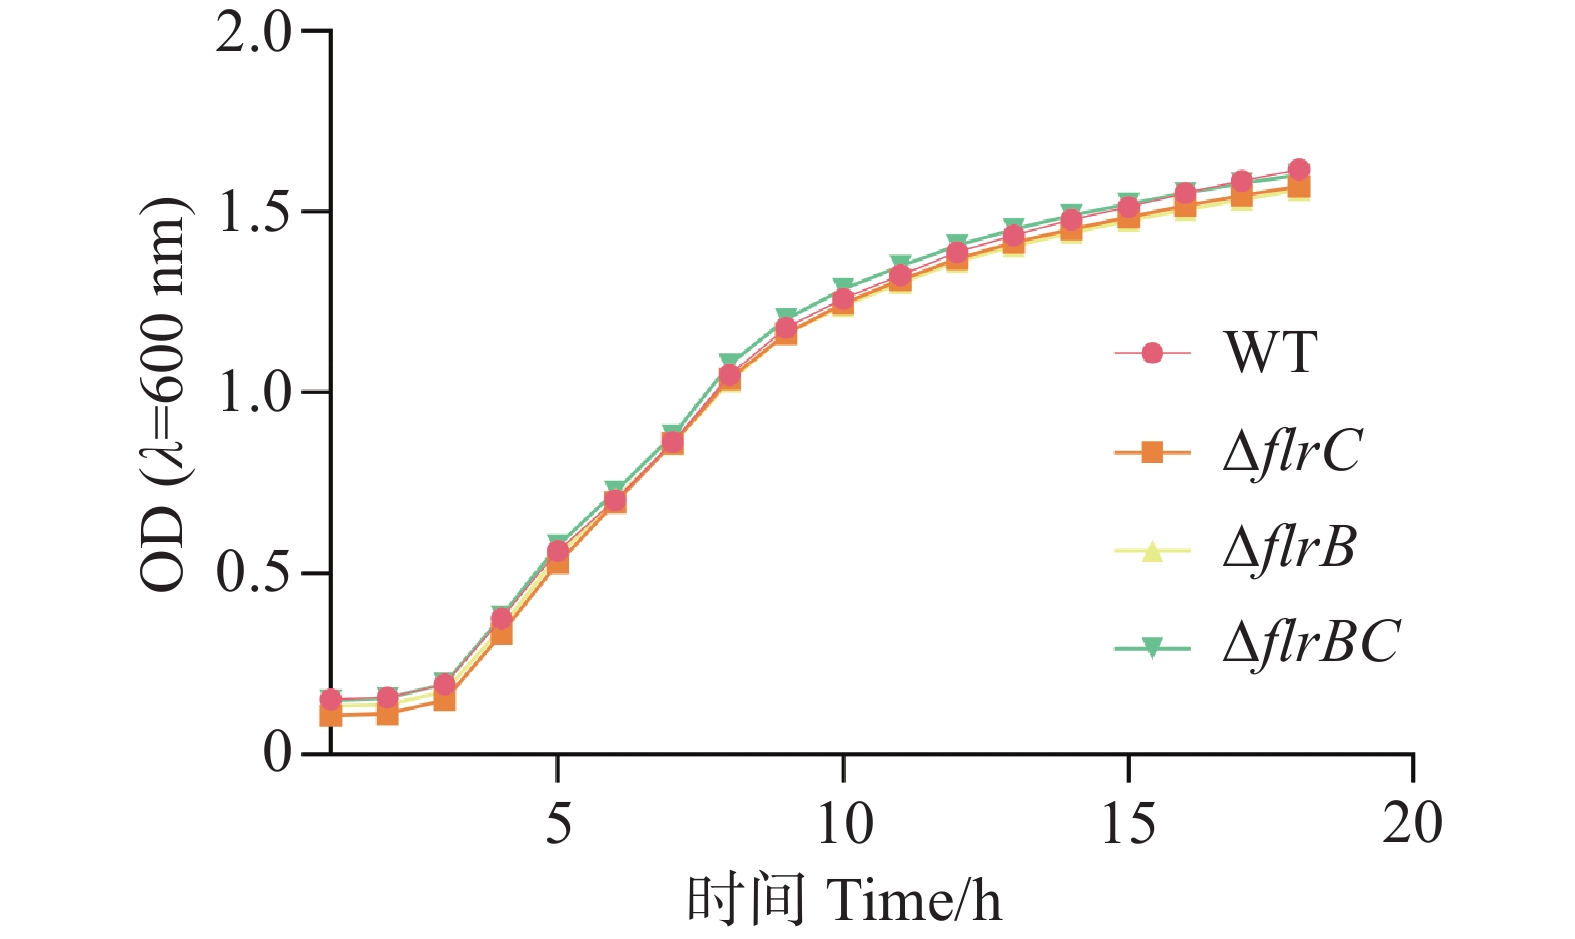
为探究flrBC基因是否影响达卡气单胞菌C4-1的生长,测定了野生型和各敲除菌株在LB培养基中的生长曲线。由图3可知,野生型菌株与△flrB、△flrC、△flrBC敲除菌株的生长速率基本一致,在各时间点OD600值均无显著差异。上述结果表明,flrB和flrC的缺失不影响达卡气单胞菌C4-1的正常生长,flrBC并非细菌基础代谢所必需的基因。
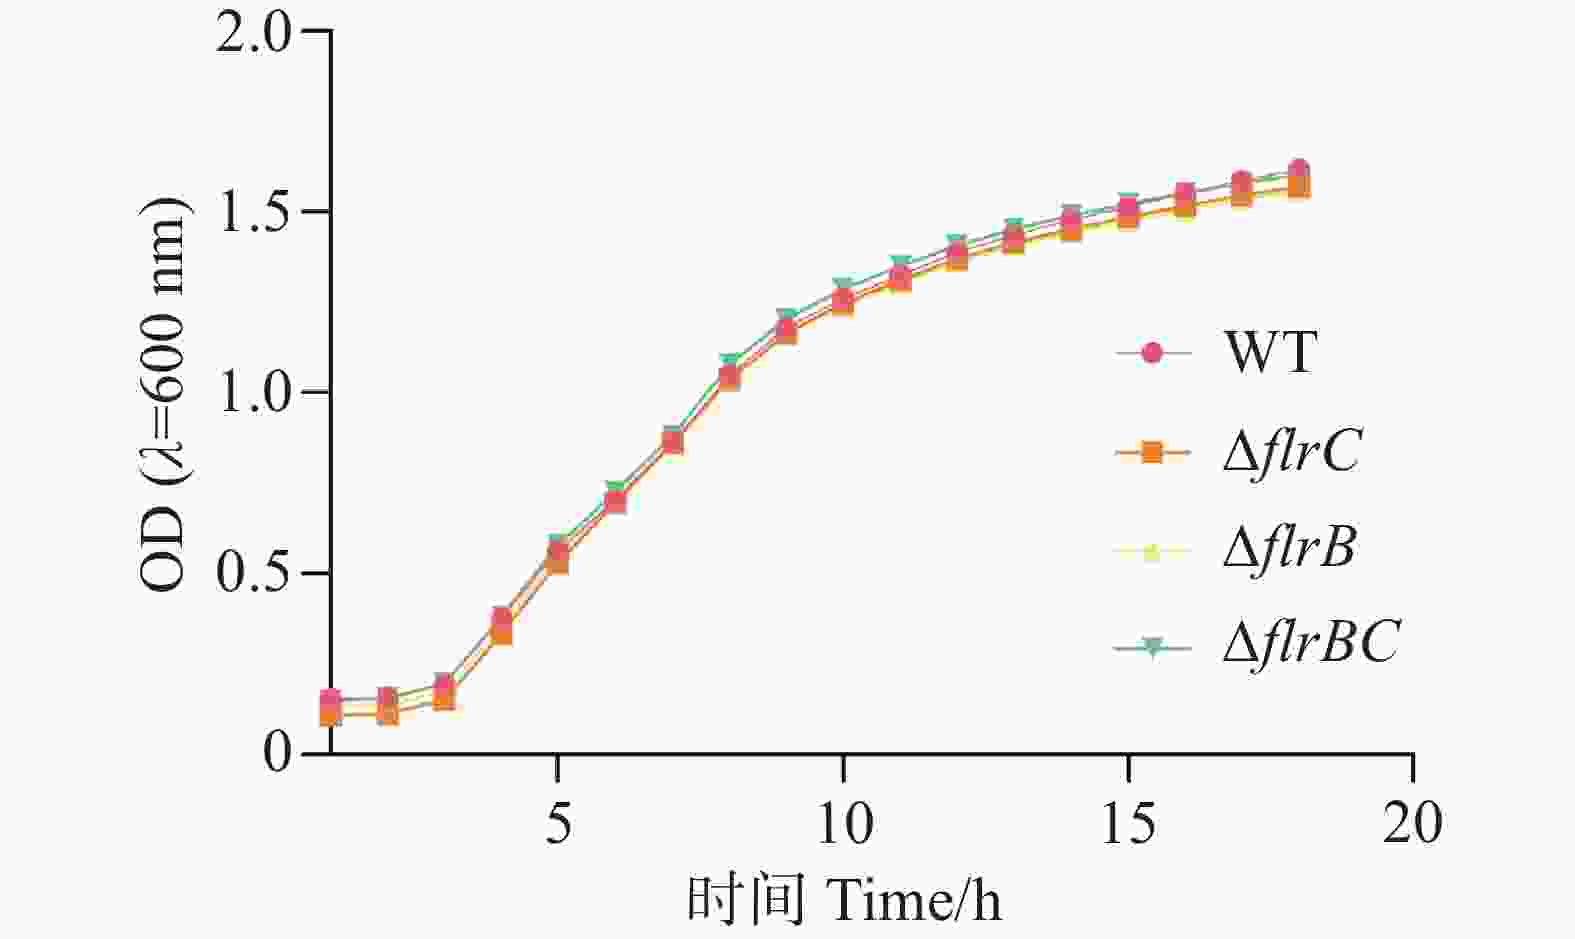
Figure 3. Growth curves of wild-type Aeromonas dhakensis and the knockout mutants
-
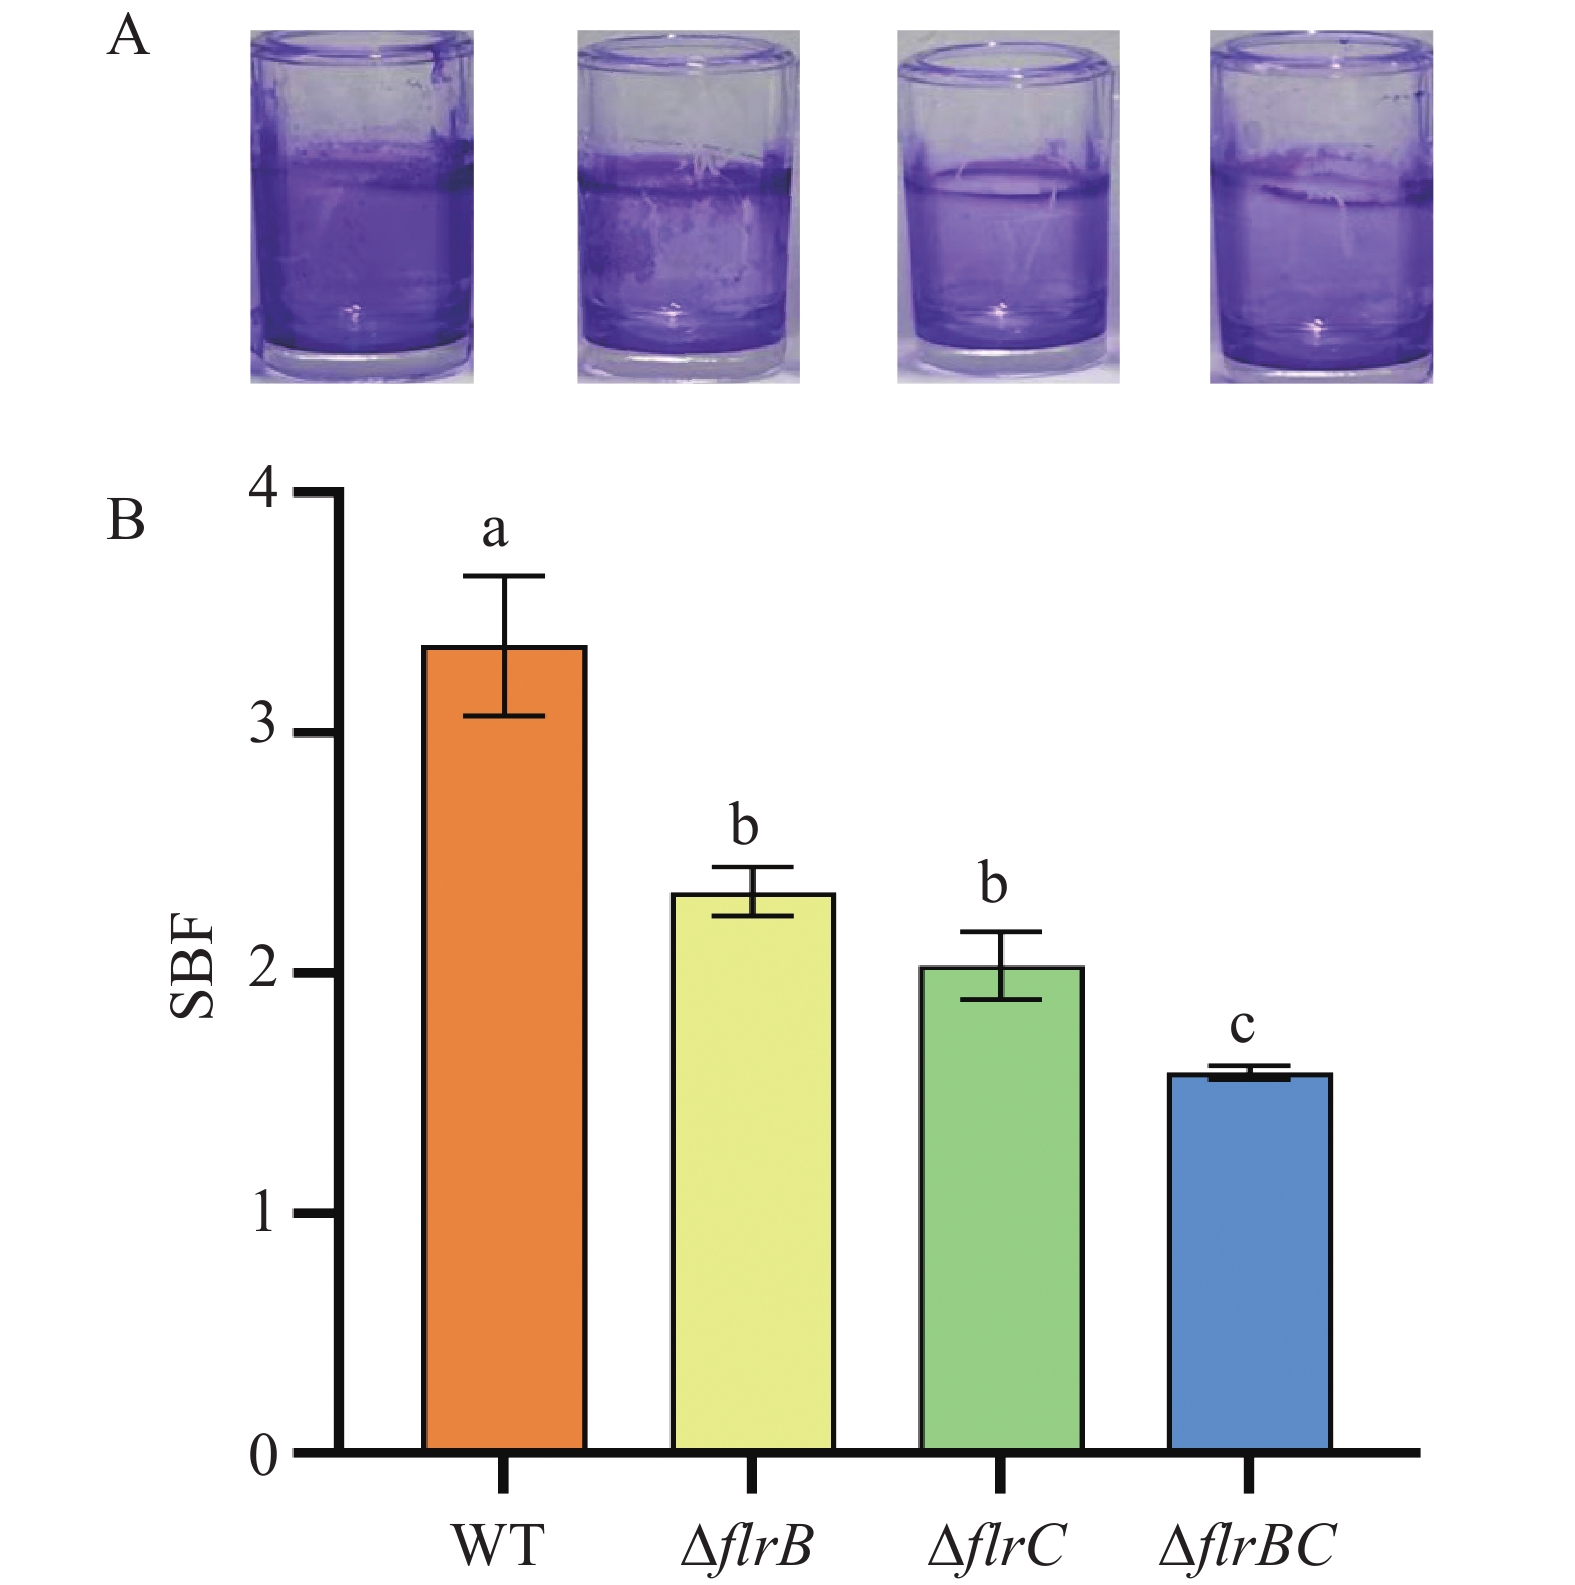
采用96孔板微量结晶紫染色法检测野生株及各敲除株的生物被膜形成能力。结晶紫染色结果显示,敲除flrB、flrC及flrBC后,附着于孔壁的生物被膜明显减少,染色后颜色较浅,而野生型菌株生物被膜形成较多,染色较深(图4-A)。定量分析表明,△flrB、△flrC和△flrBC的生物被膜形成量均显著低于野生型,其中△flrBC的下降幅度最大(图4-B)。上述结果表明,flrB和flrC均能促进达卡气单胞菌C4-1生物被膜的形成,且二者在该过程中可能存在协同效应。
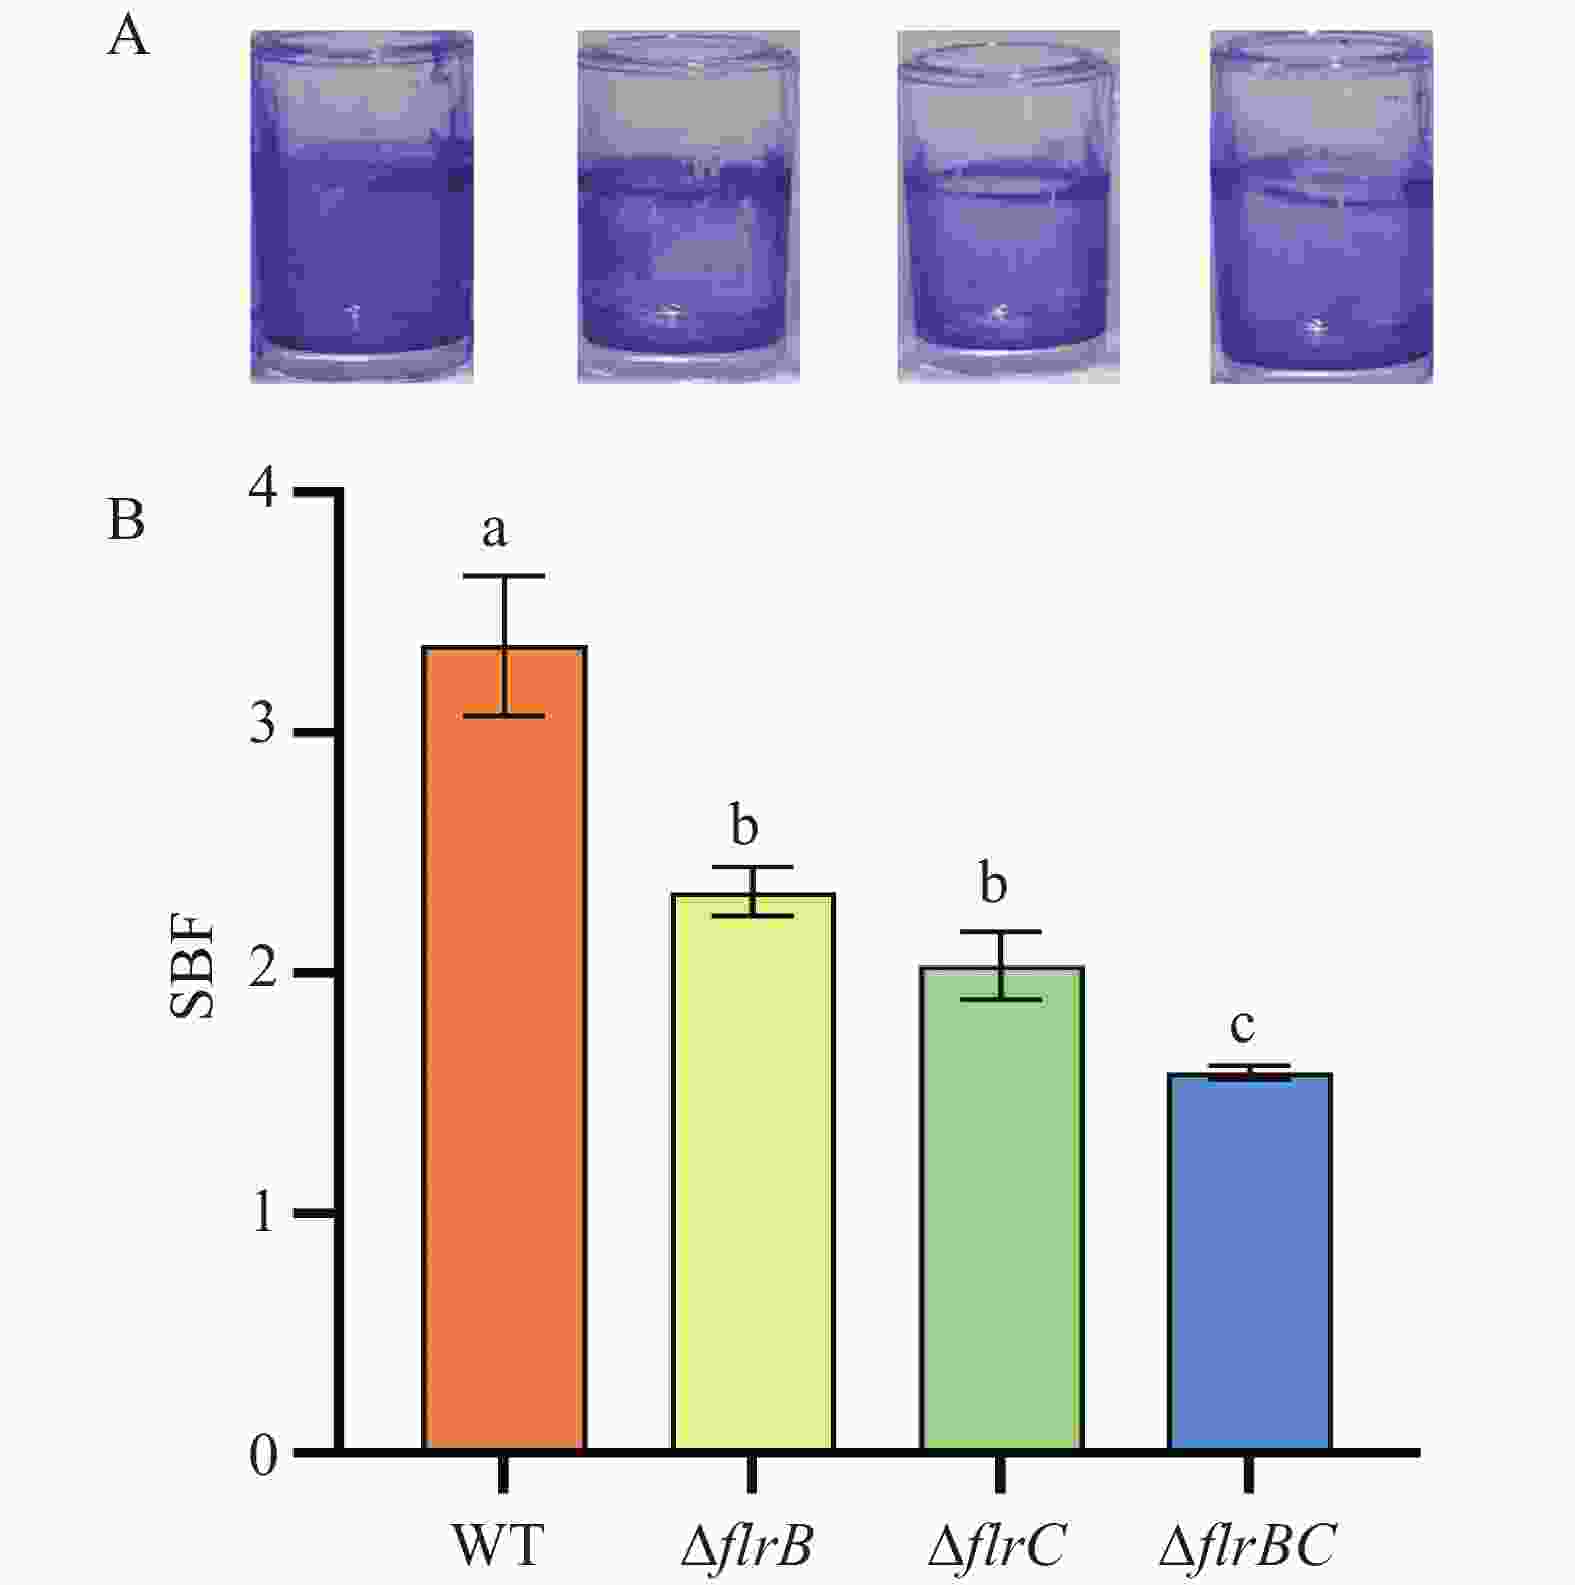
Figure 4. Biofilm formation of wild-type Aeromonas dhakensis and the knockout mutants
-
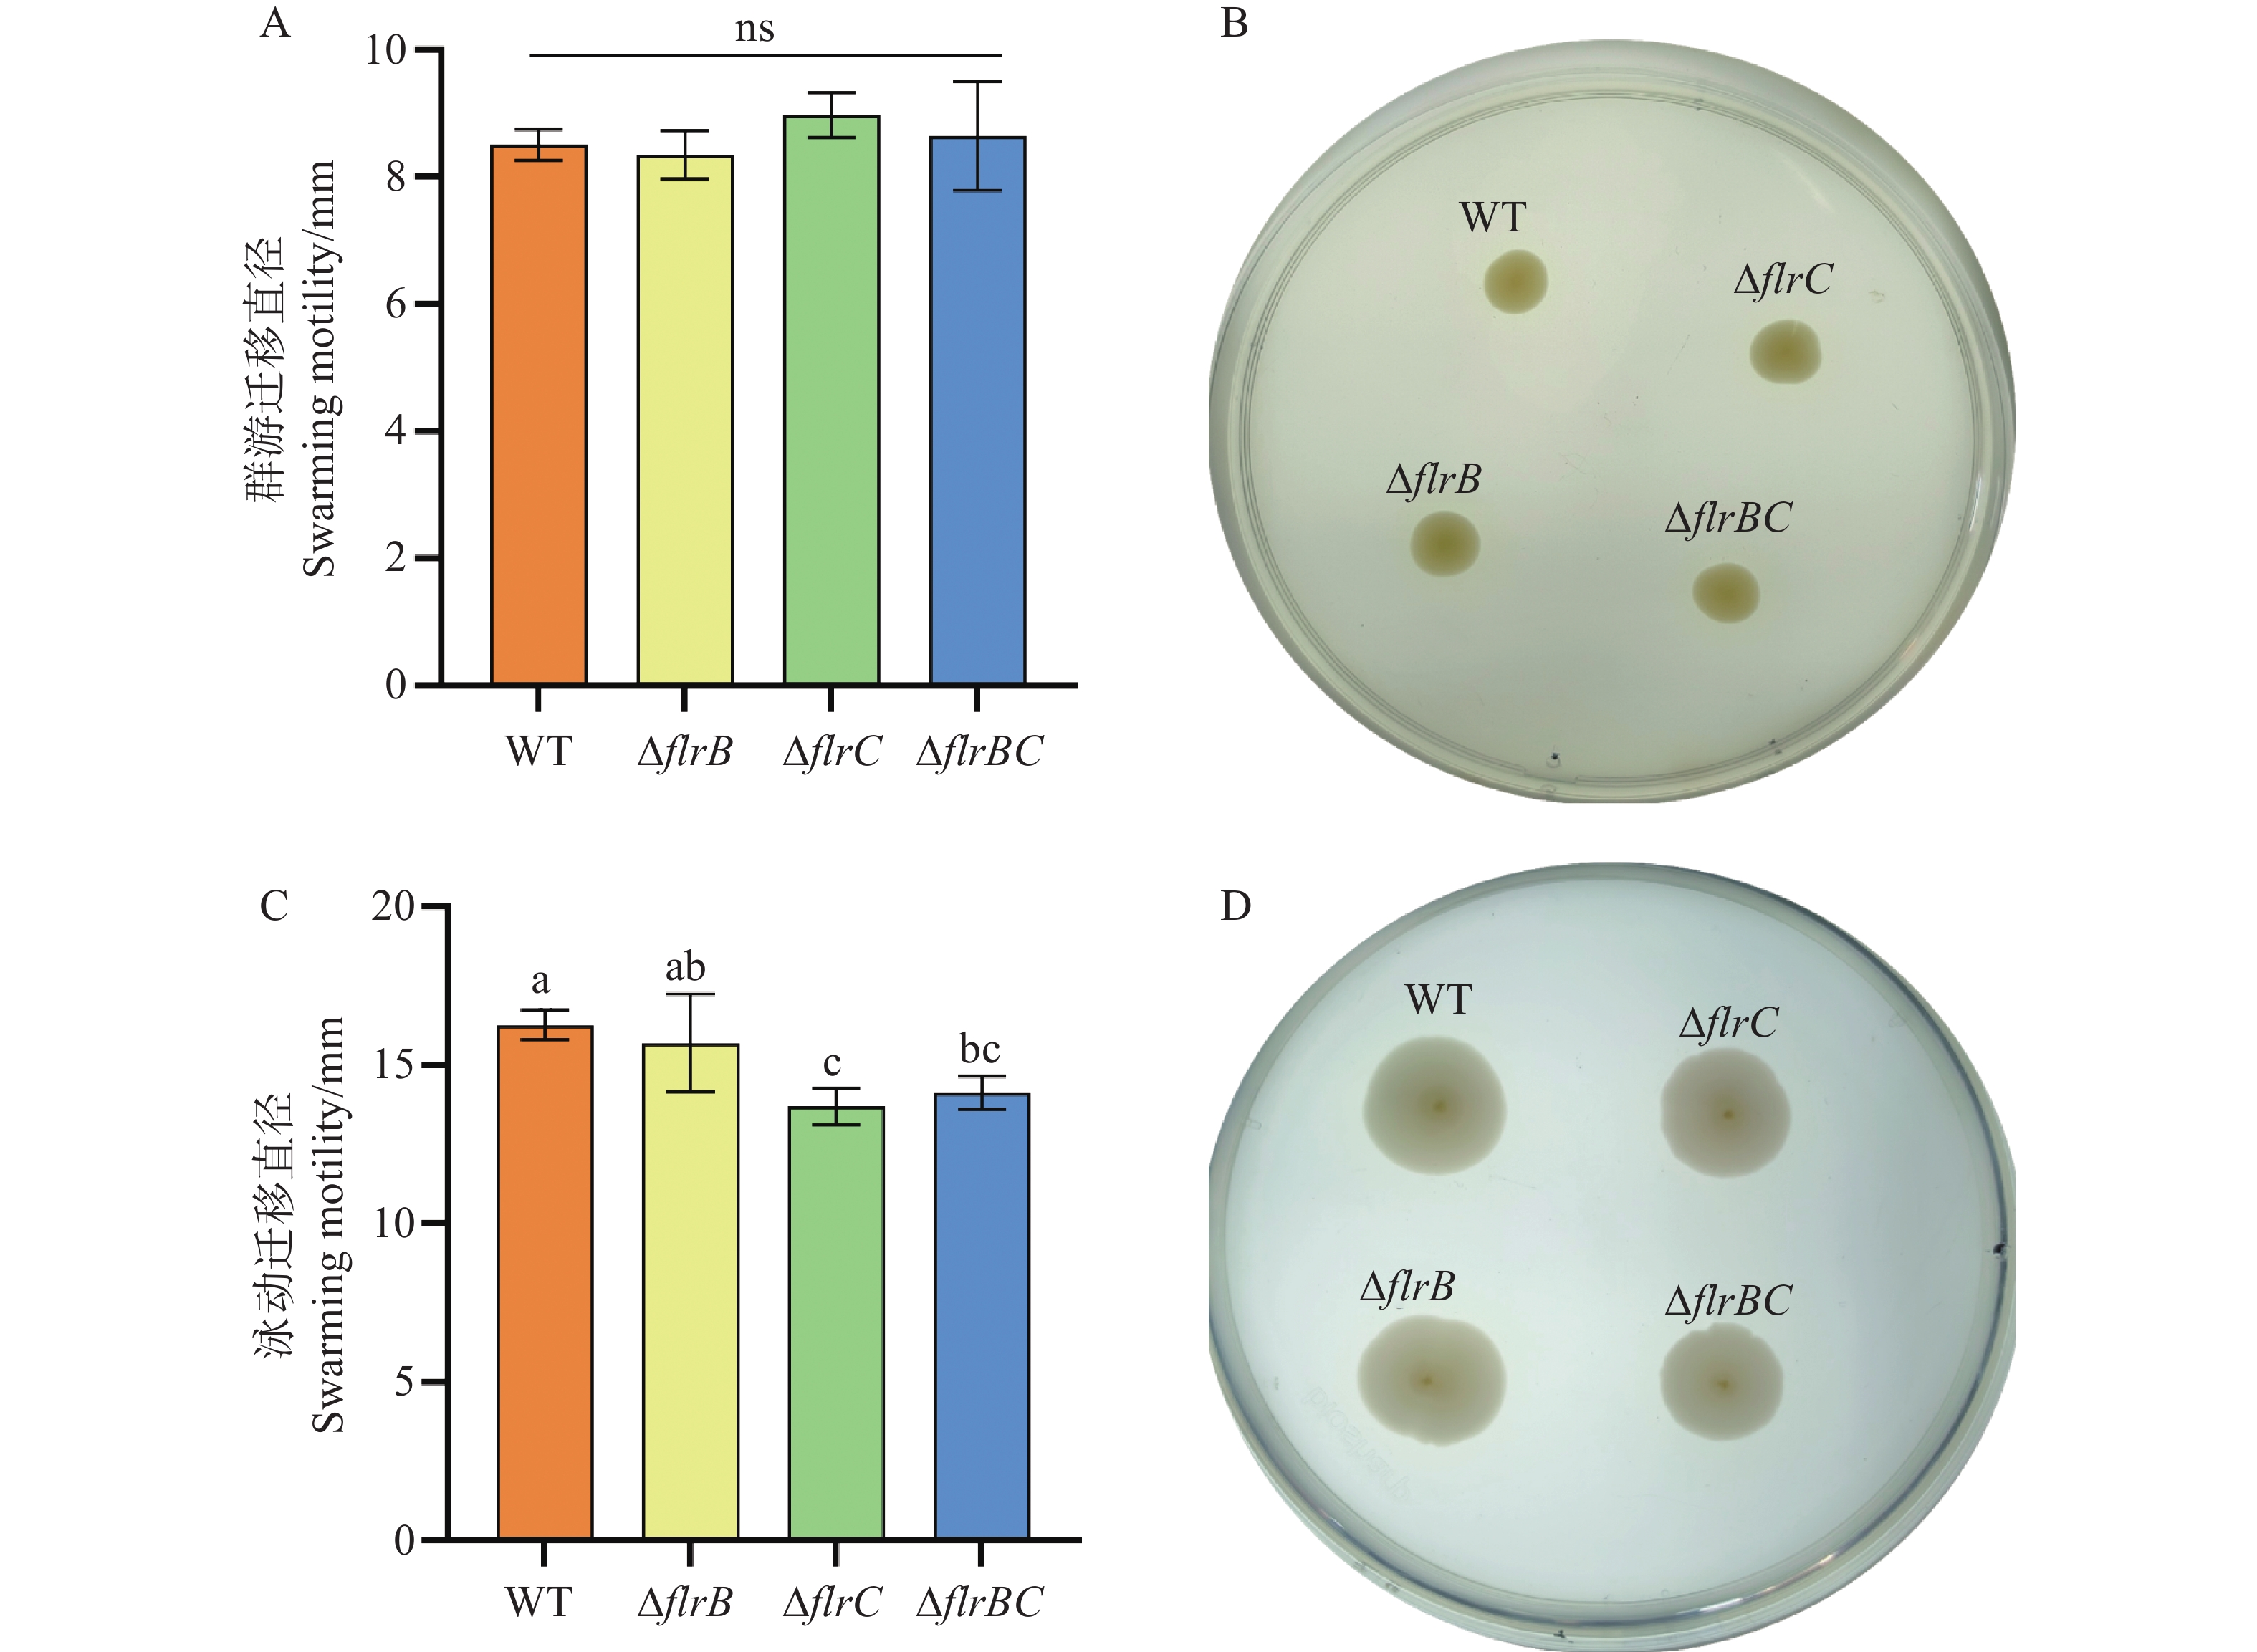
采用半固体琼脂平板法检测野生株及各敲除株的运动能力。在群游平板上,野生型及各敲除菌株的迁移直径均无显著差异(图5-A、B)。在泳动平板上,野生型菌株和ΔflrB敲除株的迁移直径相近,无显著差异;而ΔflrC和ΔflrBC敲除株的迁移直径较野生型显著减小(图5-C、D)。以上结果表明,FlrB/FlrC双组分系统不参与达卡气单胞菌C4-1群游运动性的调控,但flrC对泳动运动性具有正向调控作用。
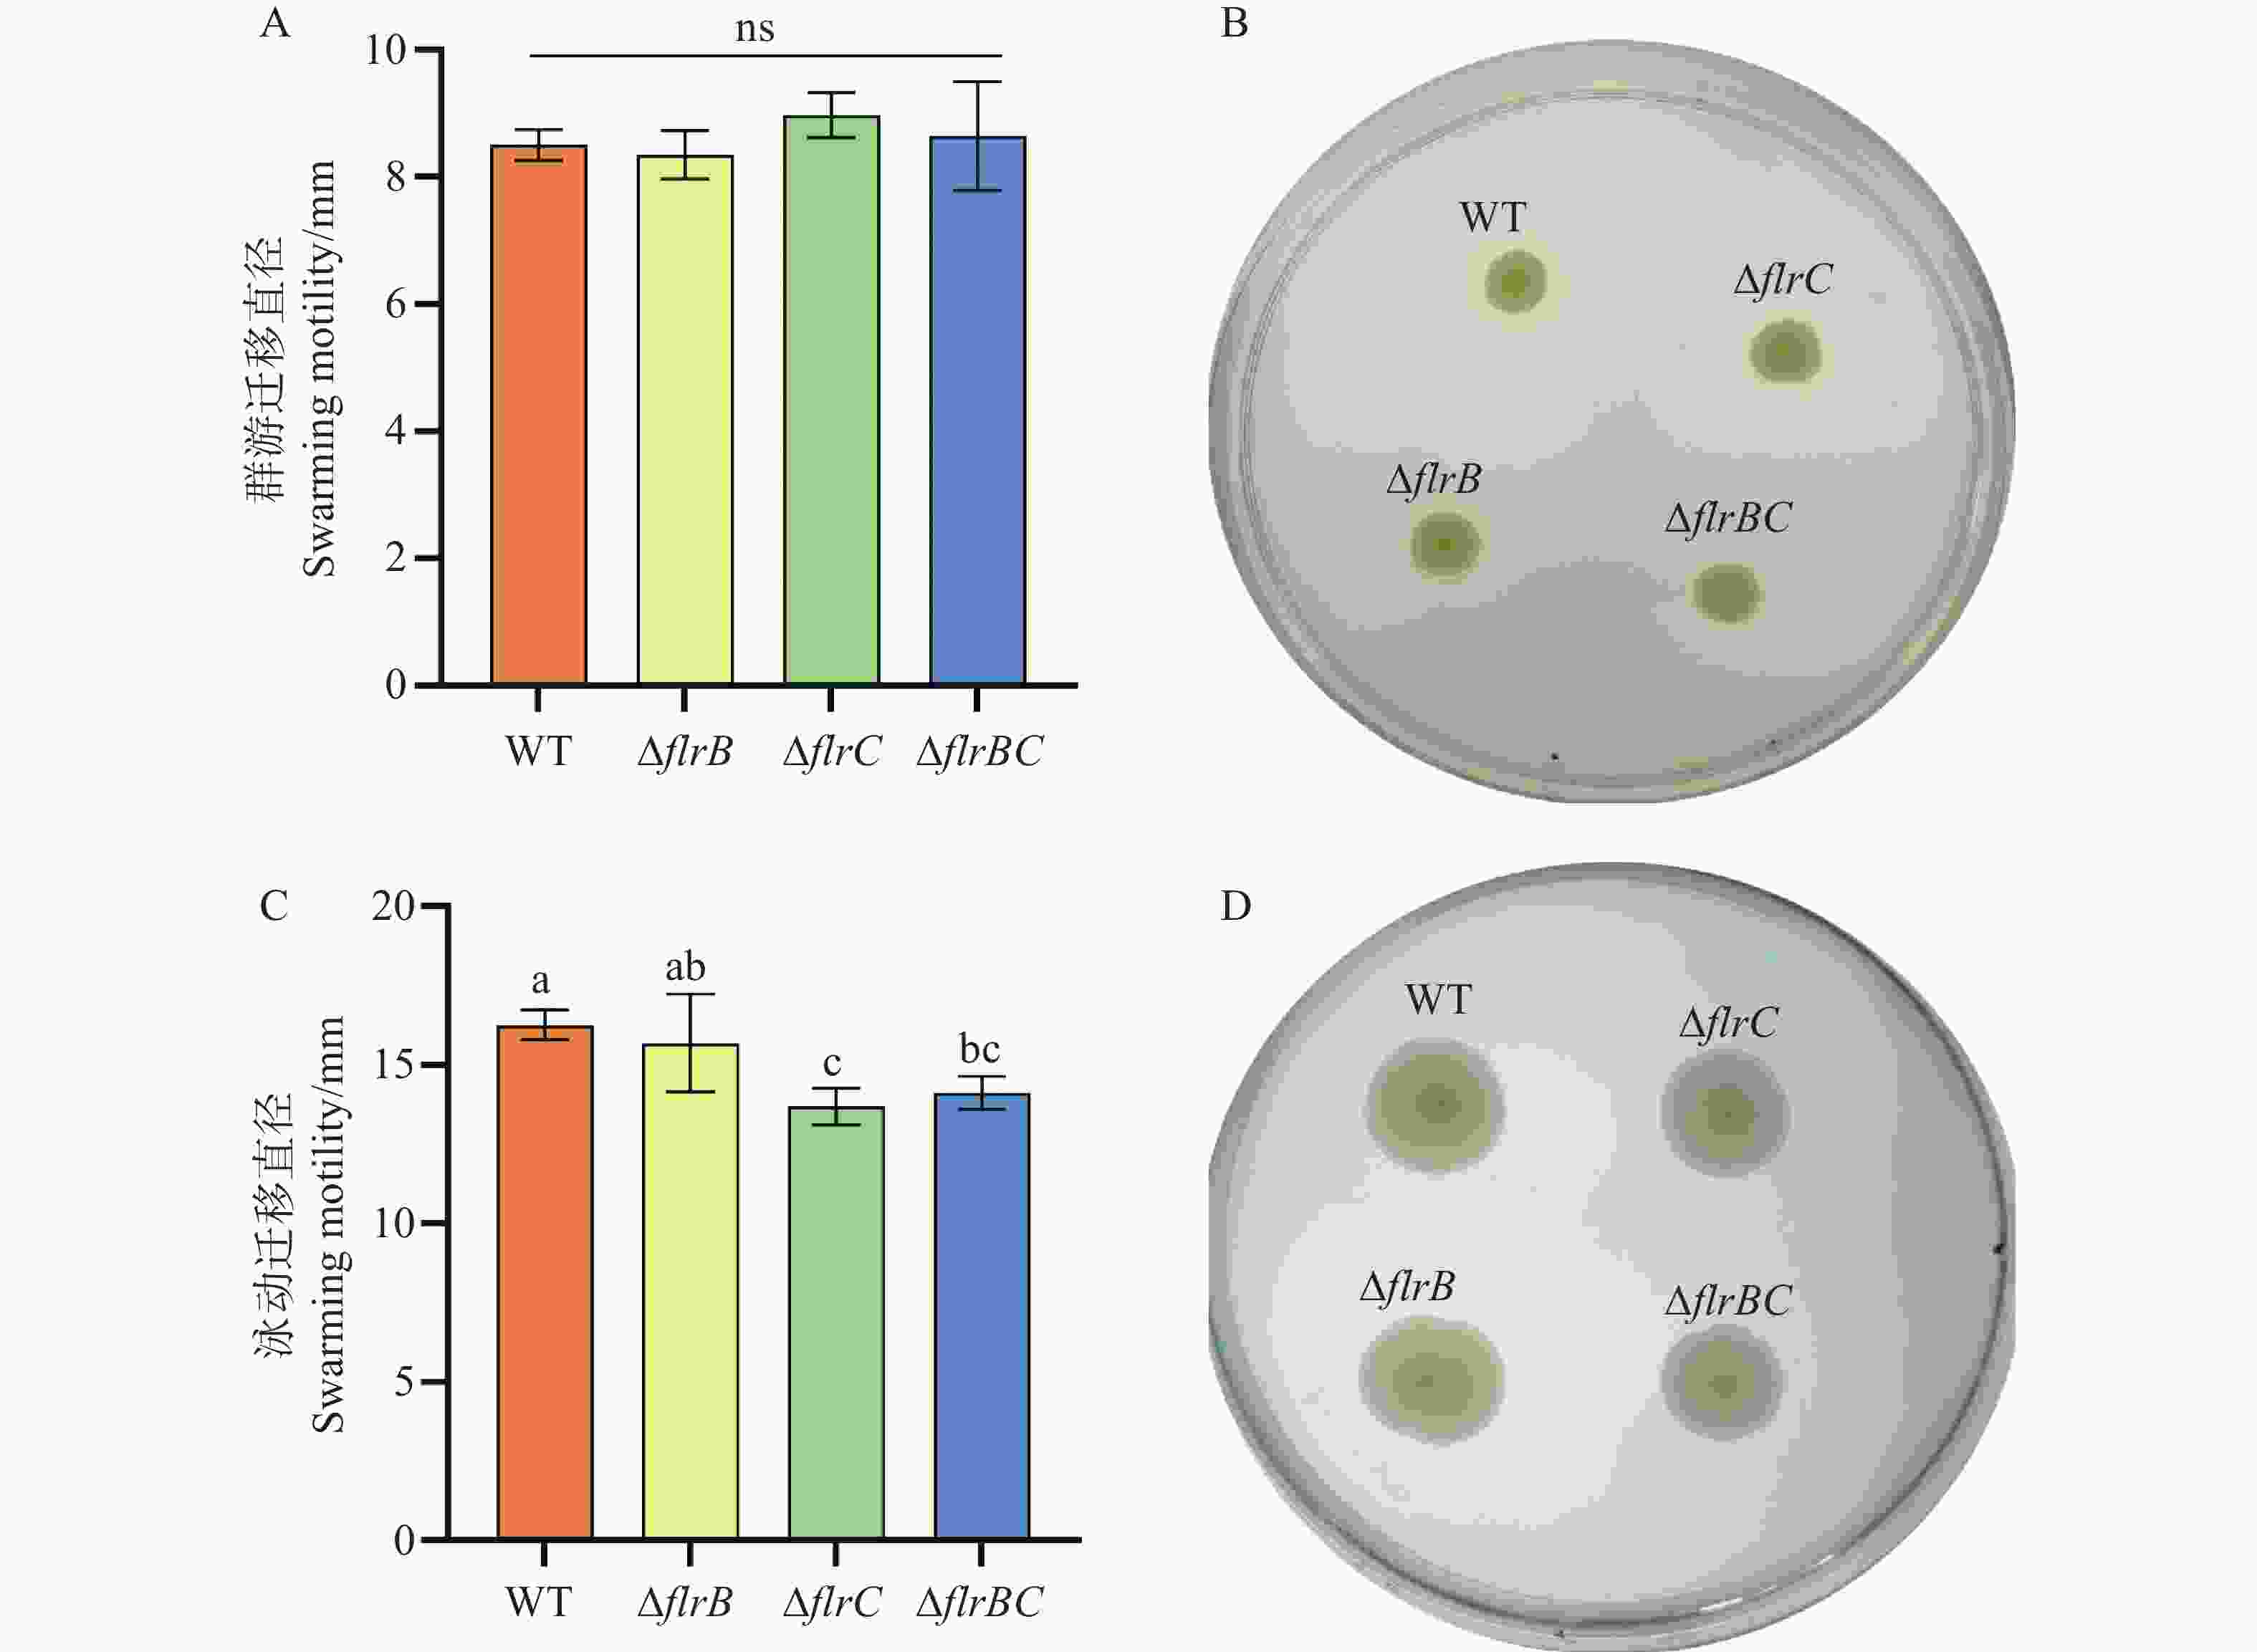
Figure 5. Motility assay of wild-type Aeromonas dhakensis and the knockout mutants
-
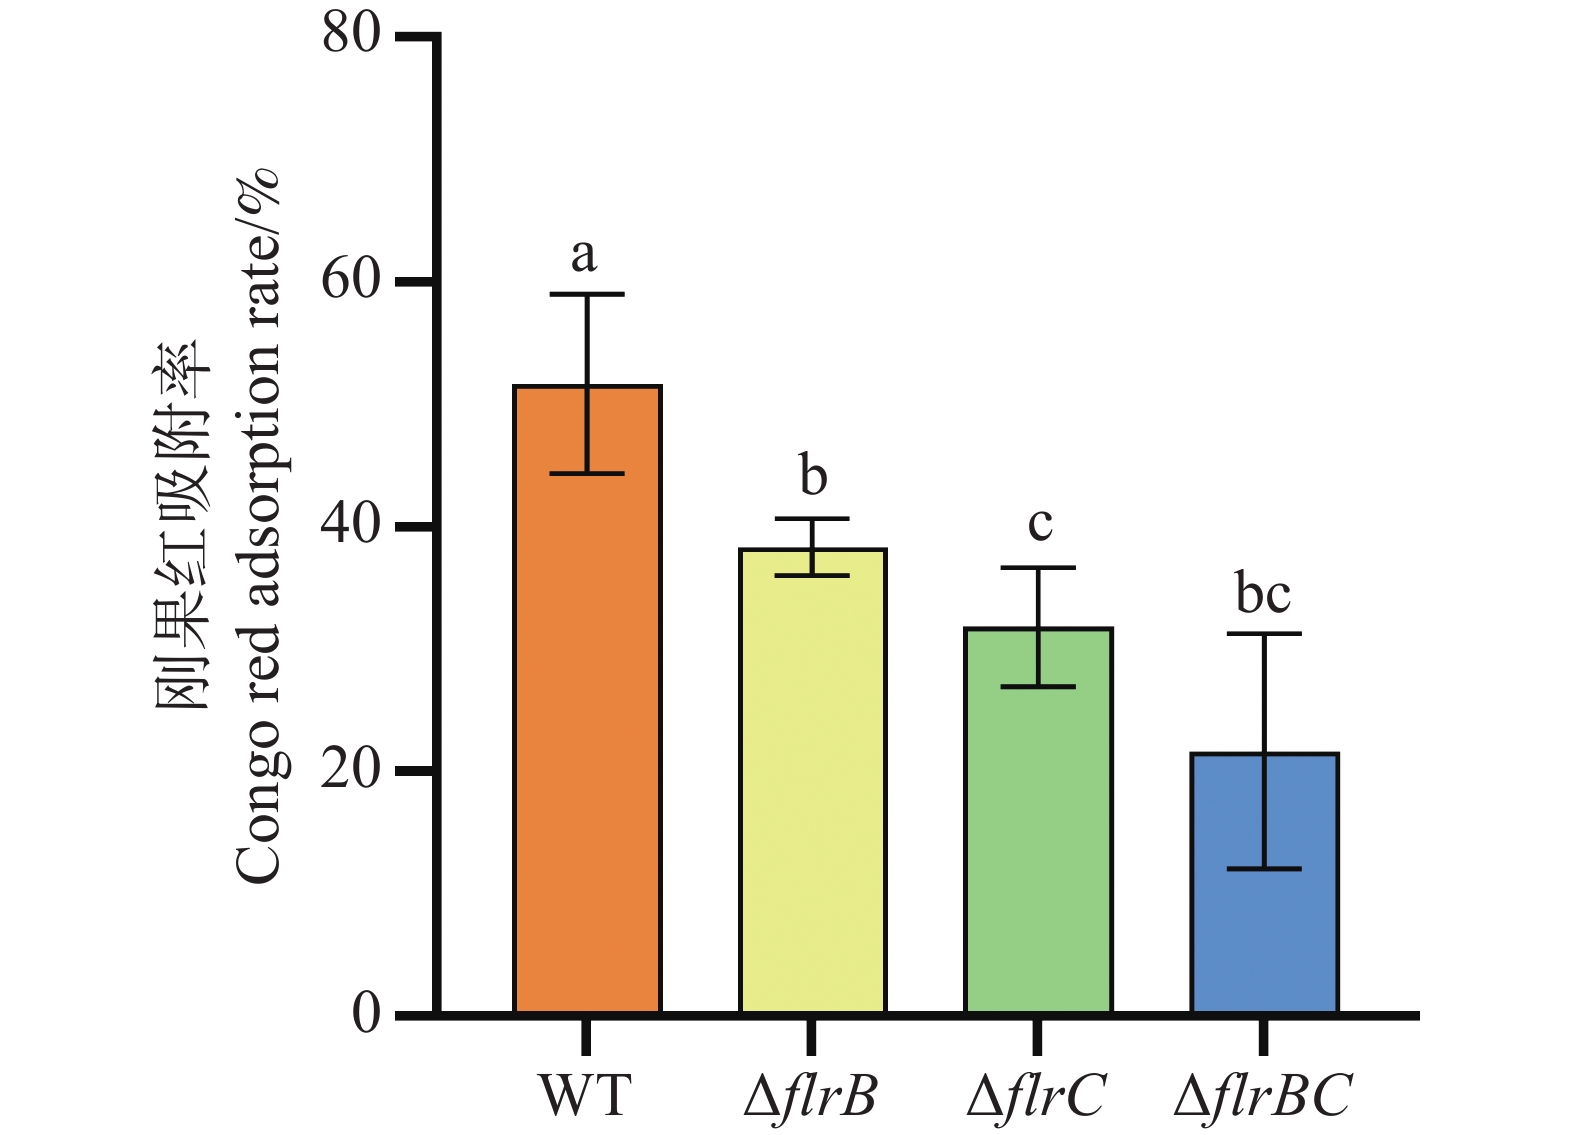
采用刚果红吸附法检测野生株及各敲除株的胞外多糖分泌能力。如图6所示,与野生型相比,ΔflrB、ΔflrC和ΔflrBC敲除株的刚果红吸附量均不同程度降低,其中ΔflrBC双敲除株的下降幅度最大。定量分析表明,ΔflrB、ΔflrC和ΔflrBC的胞外多糖分泌量均显著低于野生型。以上结果表明,flrB和flrC均参与达卡气单胞菌C4-1胞外多糖分泌的正向调控。
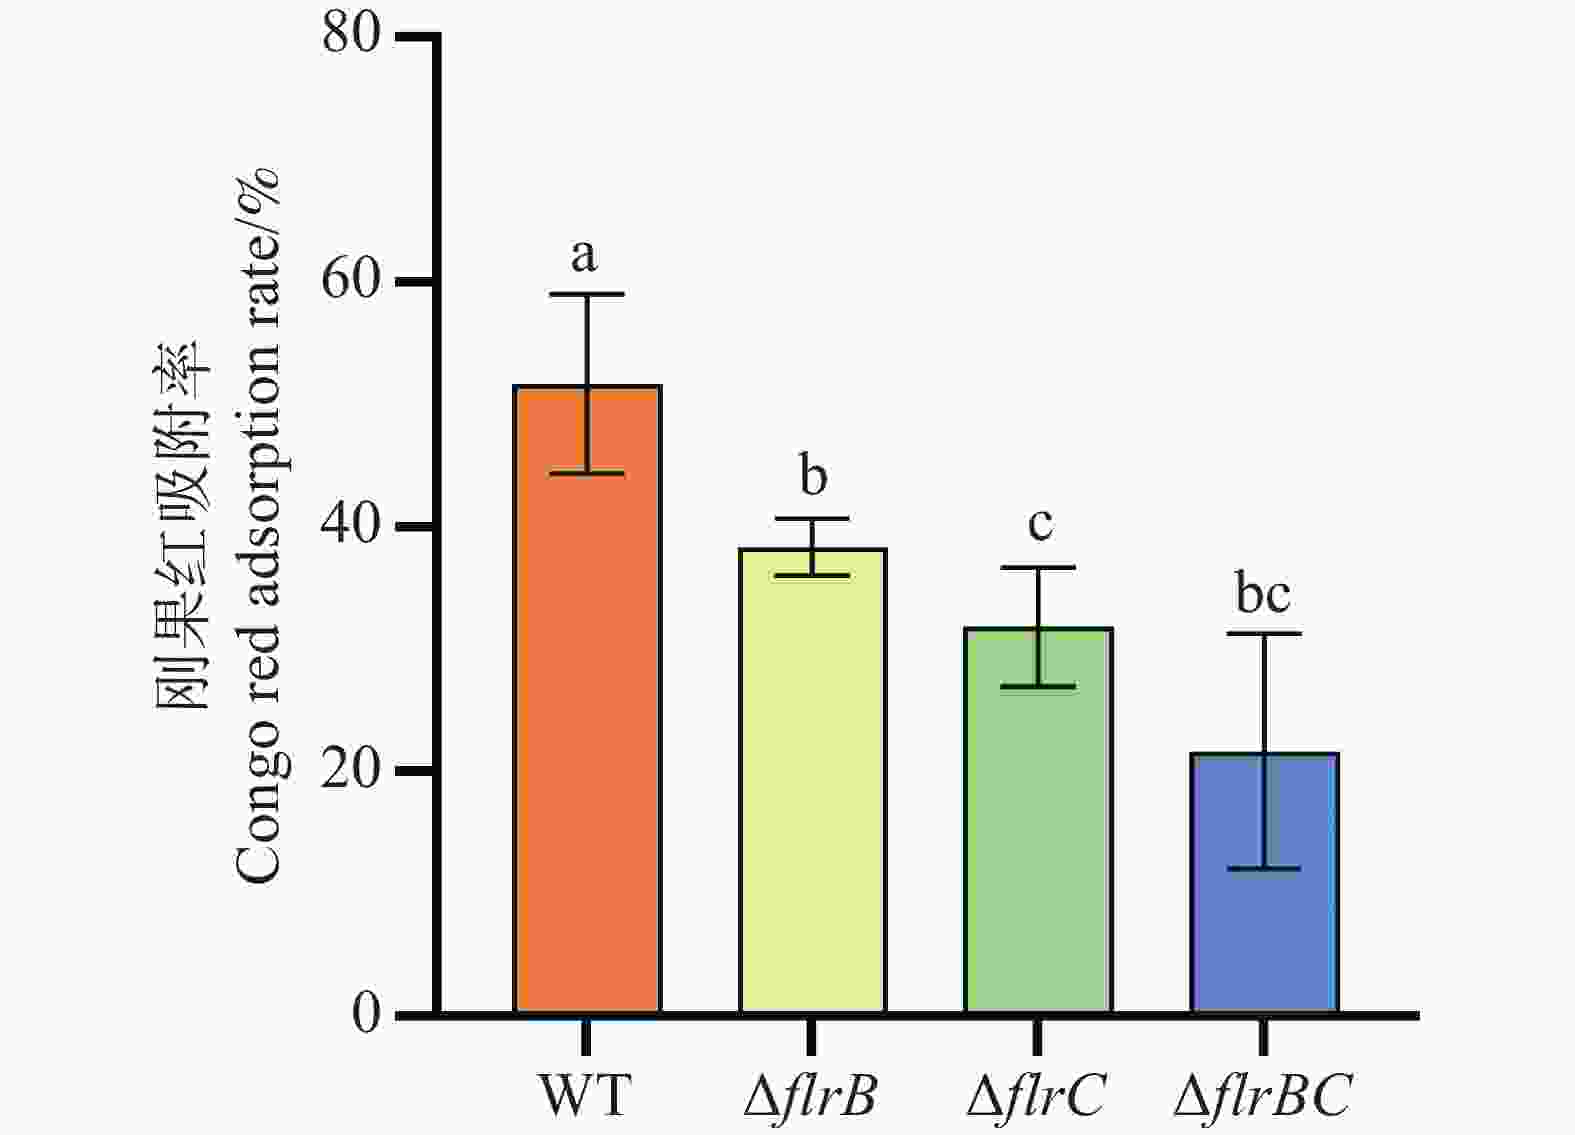
Figure 6. Comparison of exopolysaccharide production between wild-type Aeromonas dhakensis and the knockout mutants
-
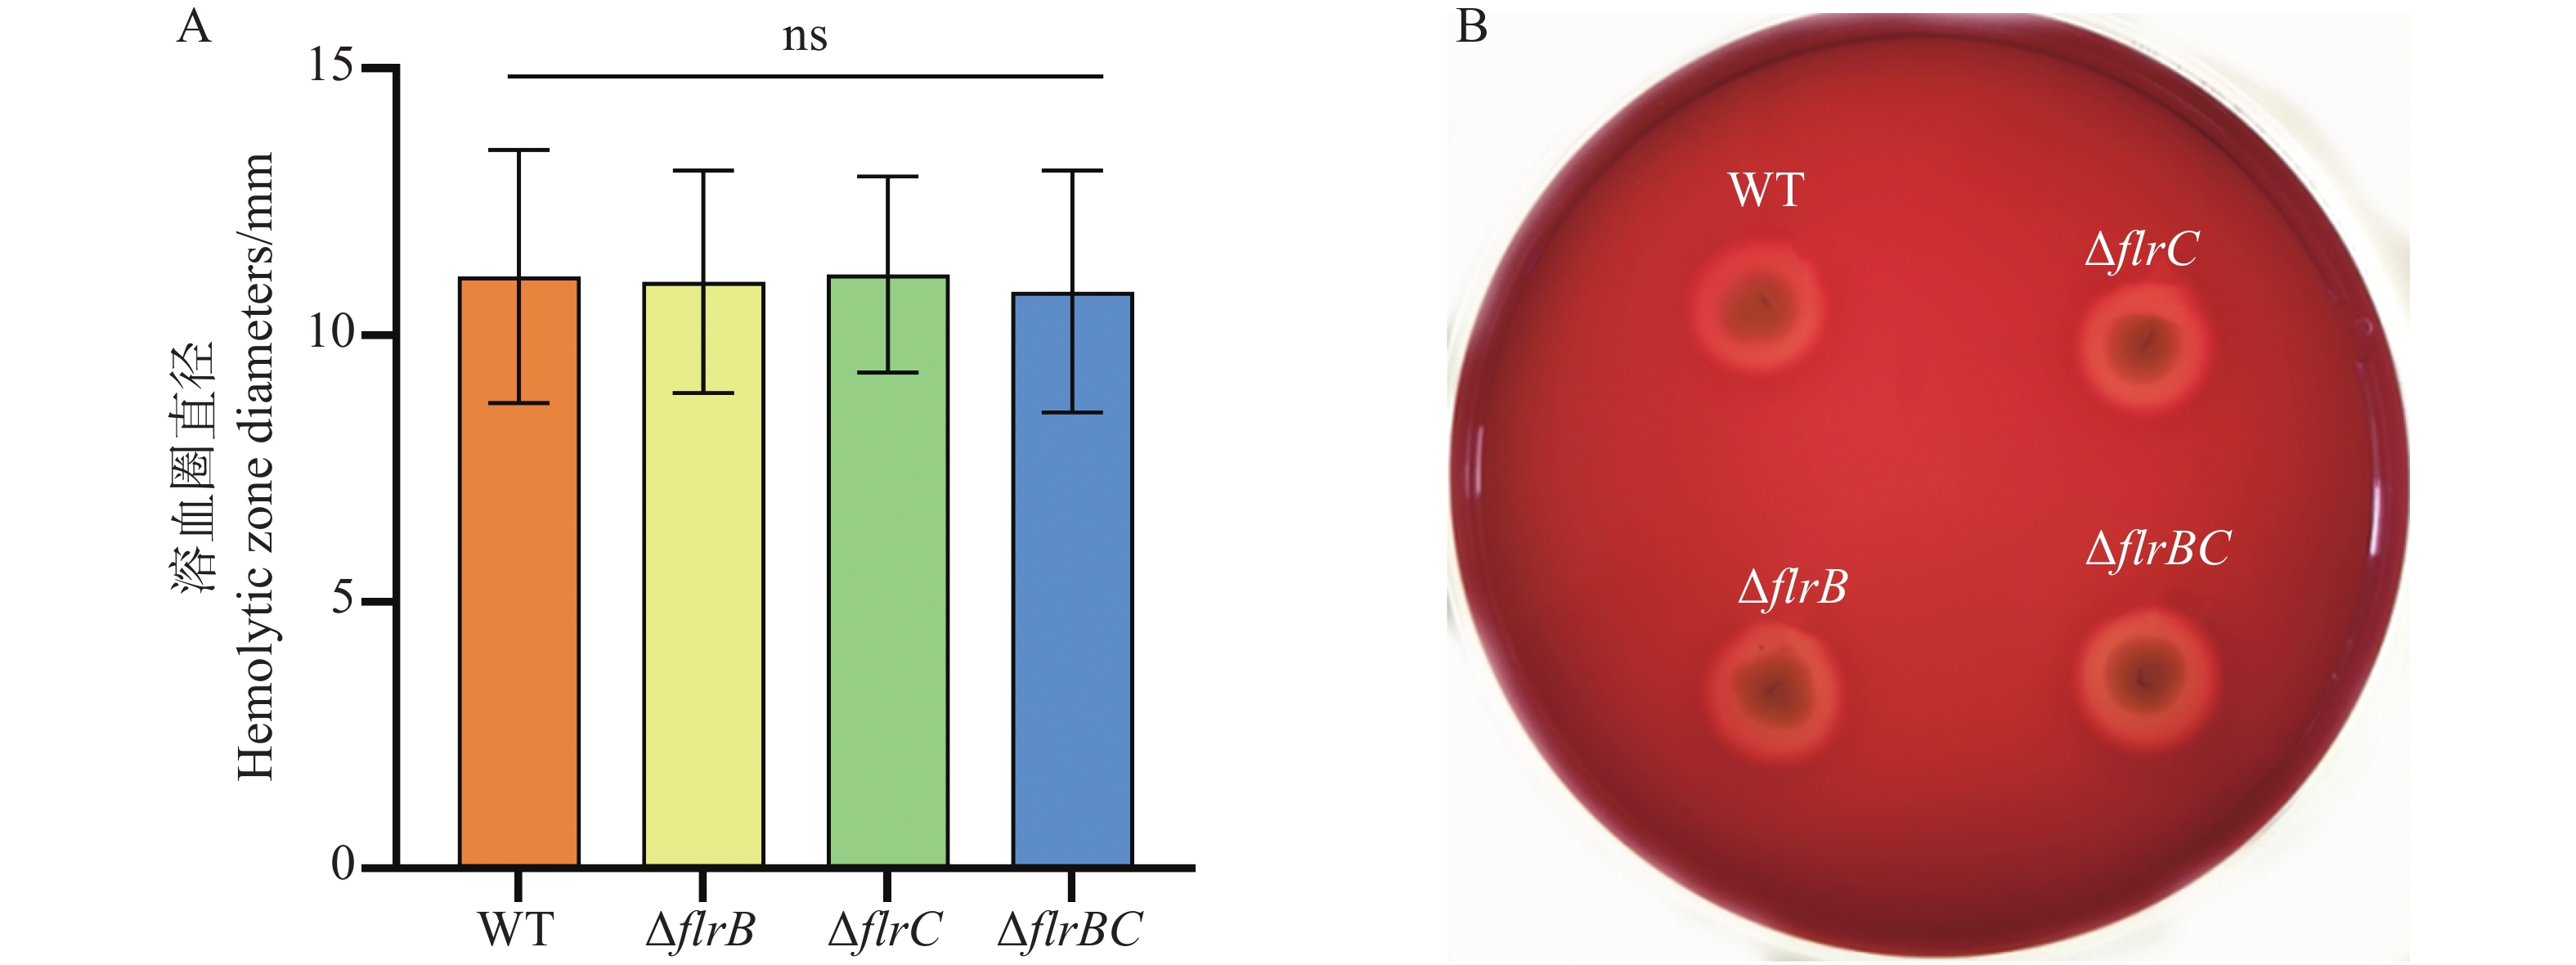
采用绵羊血琼脂平板打孔法检测野生株及各敲除株的溶血活性。结果显示,野生型及ΔflrB、ΔflrC和ΔflrBC敲除株在血平板上均形成清晰的溶血圈,各菌株间溶血圈直径无显著差异(图7)。以上结果表明,flrB和flrC的缺失不影响达卡气单胞菌C4-1的溶血活性。
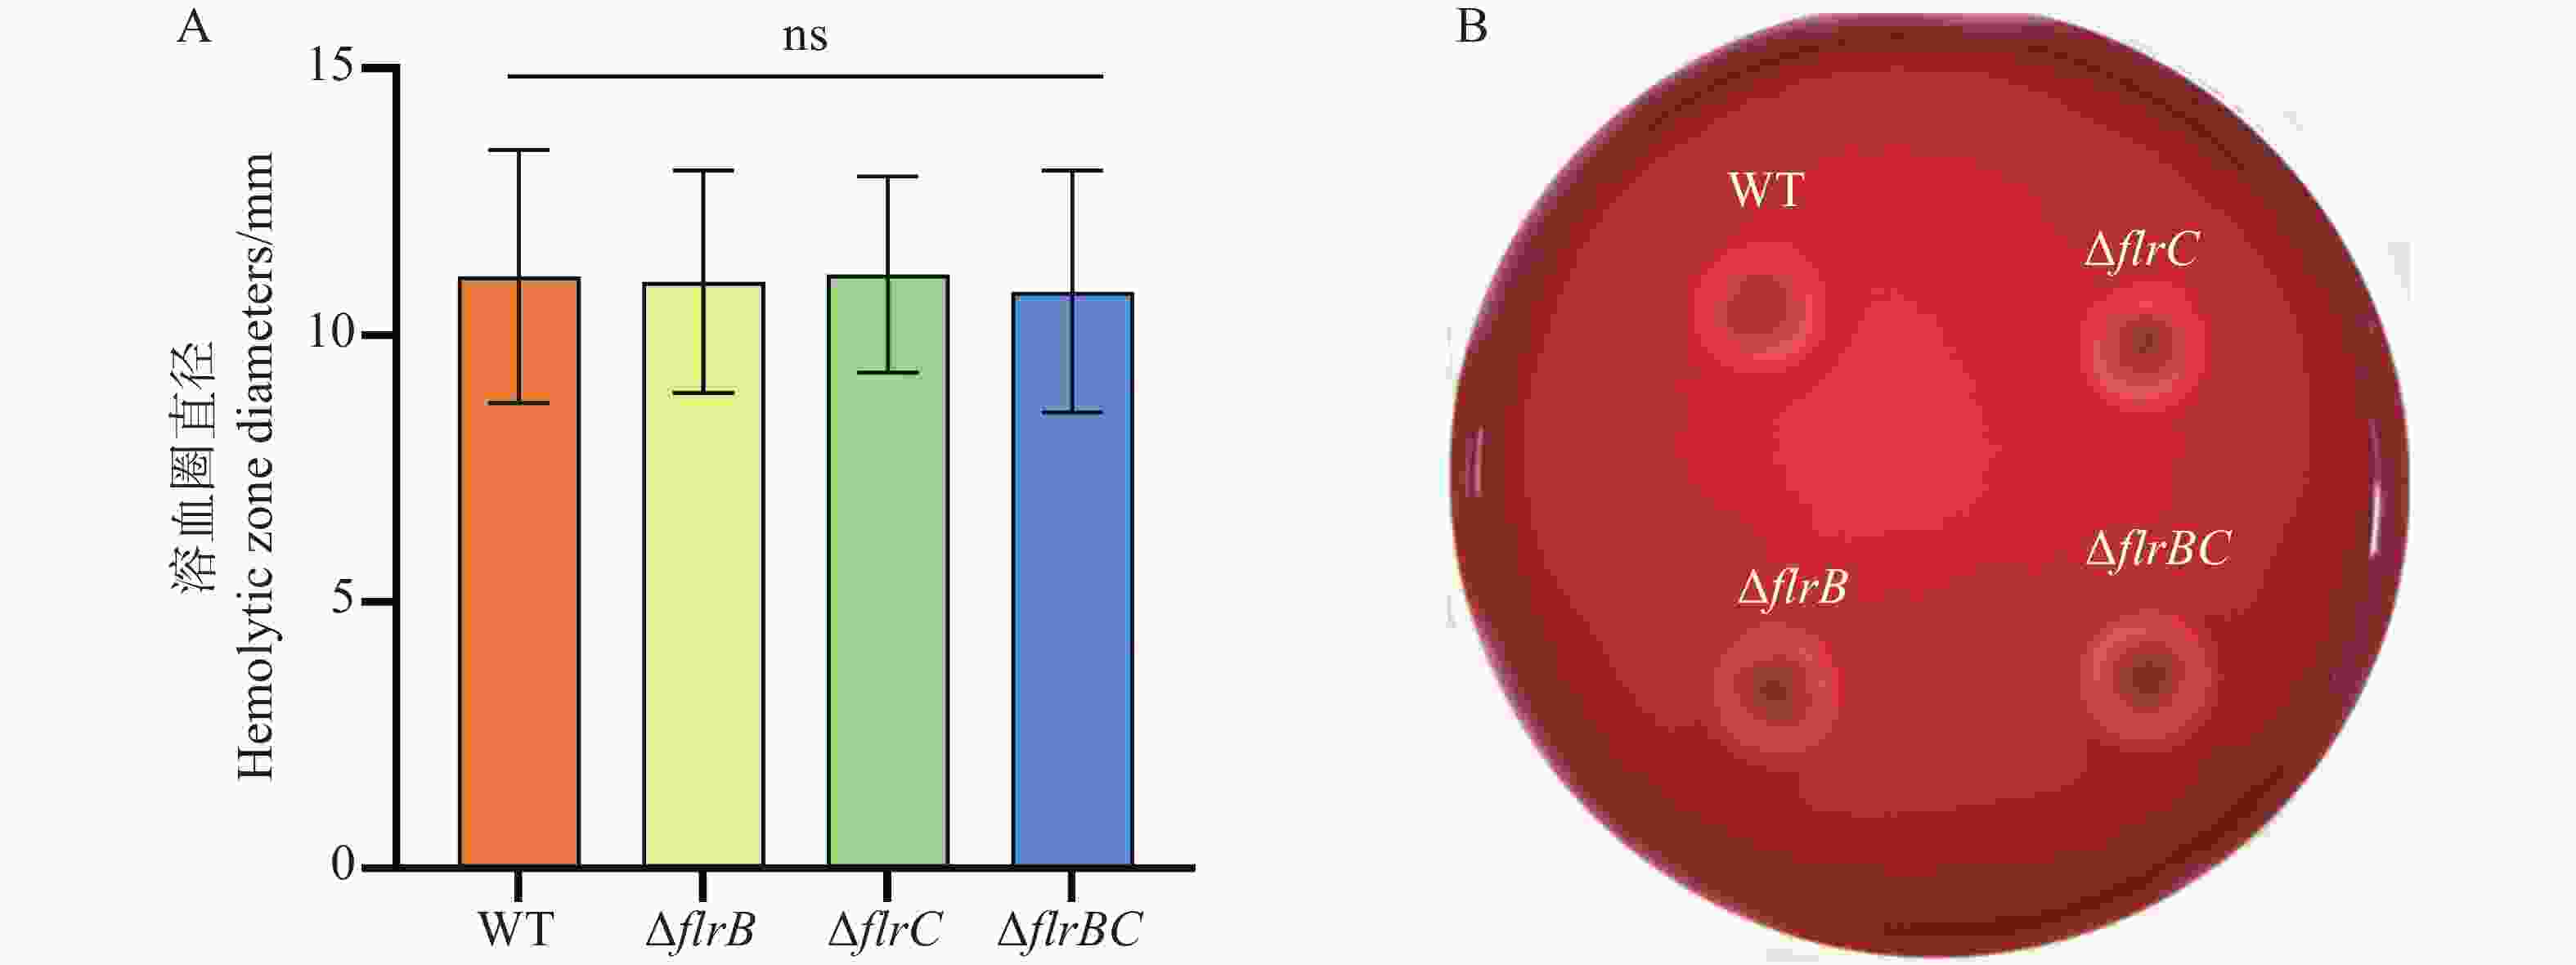
Figure 7. Hemolytic activity assay of wild-type Aeromonas dhakensis and the knockout mutants
-
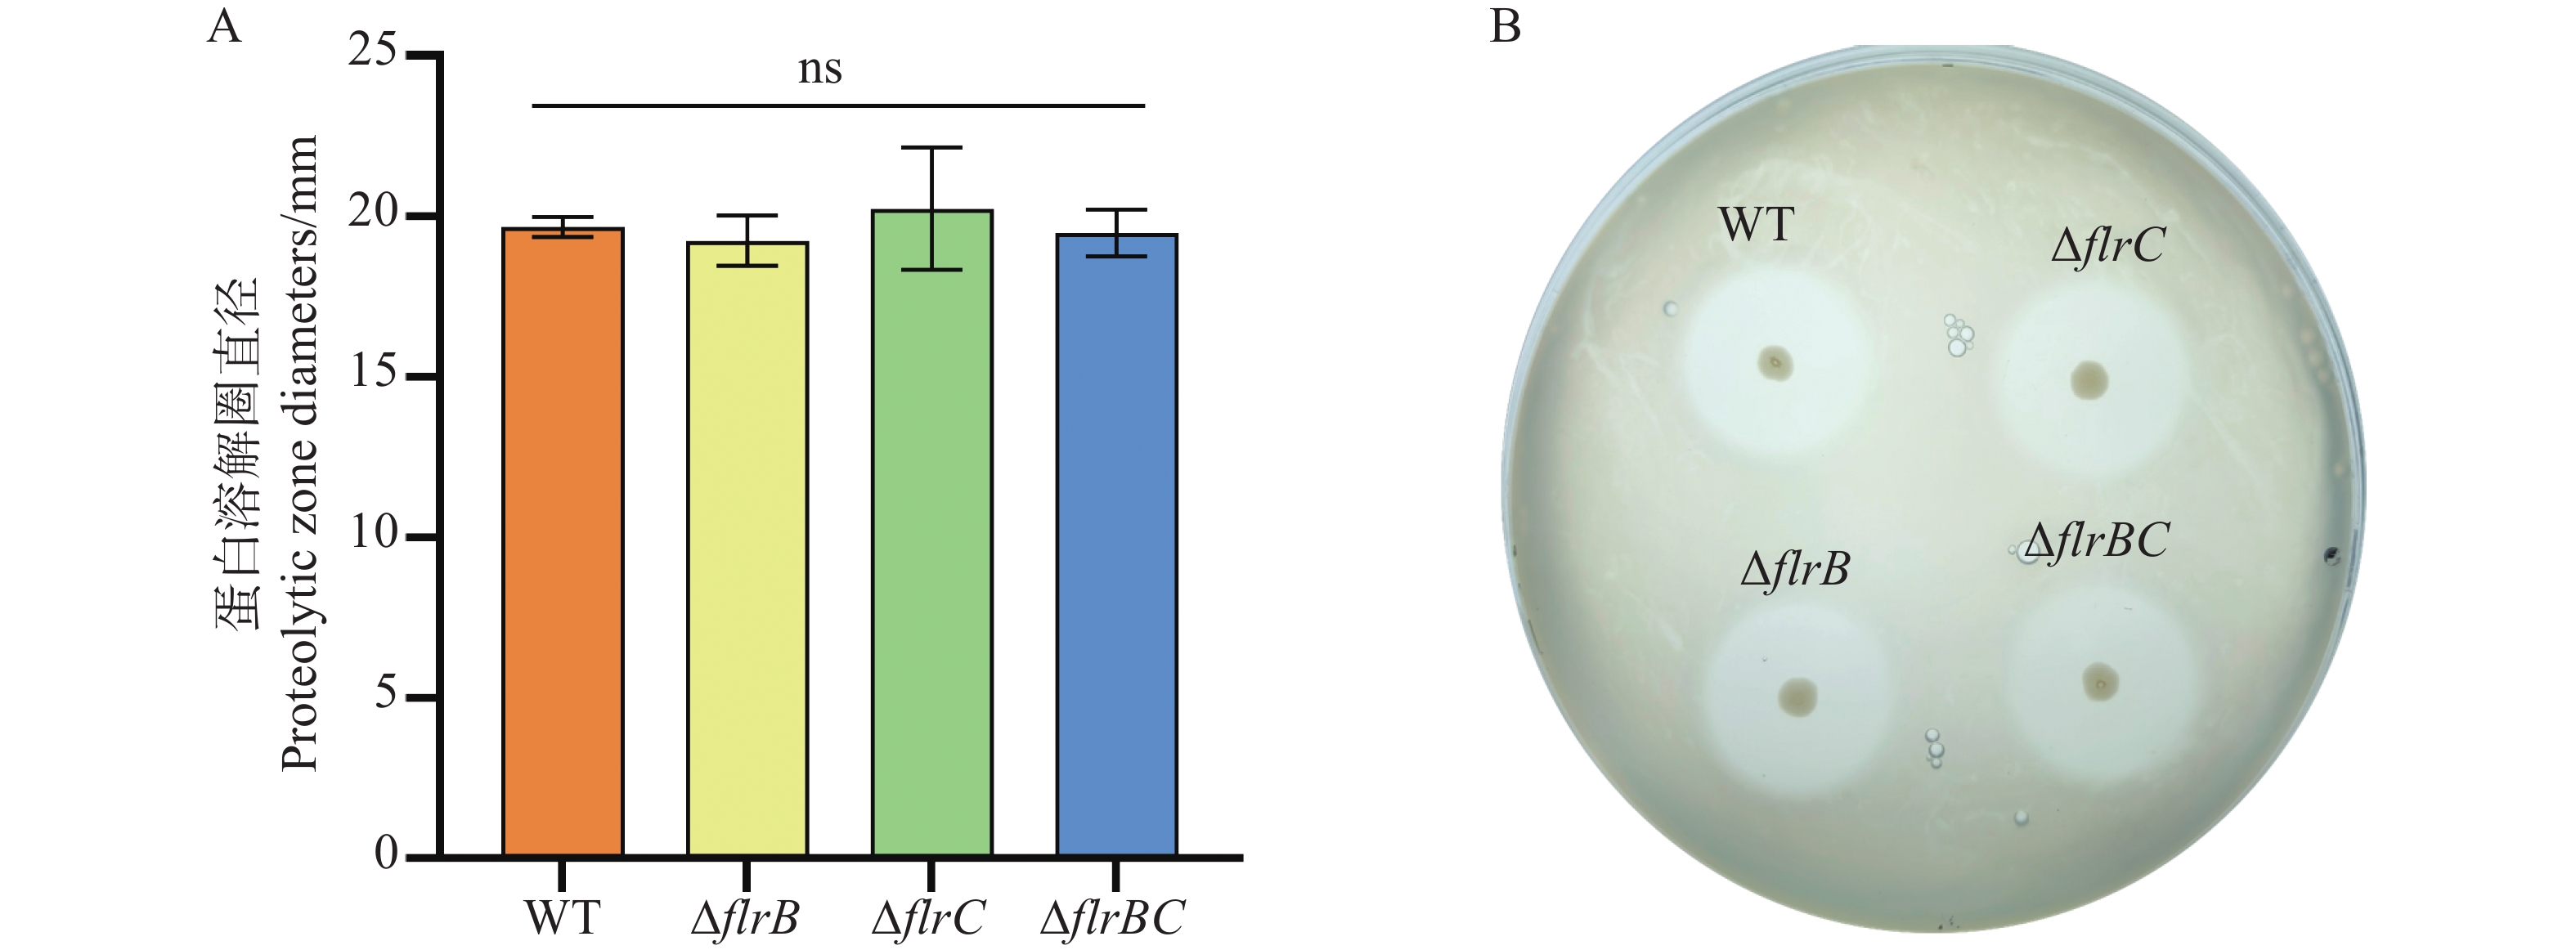
采用蛋白酶检测平板法检测野生株及各敲除株的胞外蛋白酶分泌活性。结果显示,野生型及ΔflrB、ΔflrC和ΔflrBC敲除株在蛋白酶检测平板上均形成清晰的蛋白溶解圈,各菌株间溶解圈直径无显著差异(图8)。以上结果表明,flrB和flrC的缺失不影响达卡气单胞菌C4-1胞外蛋白酶的分泌活性。
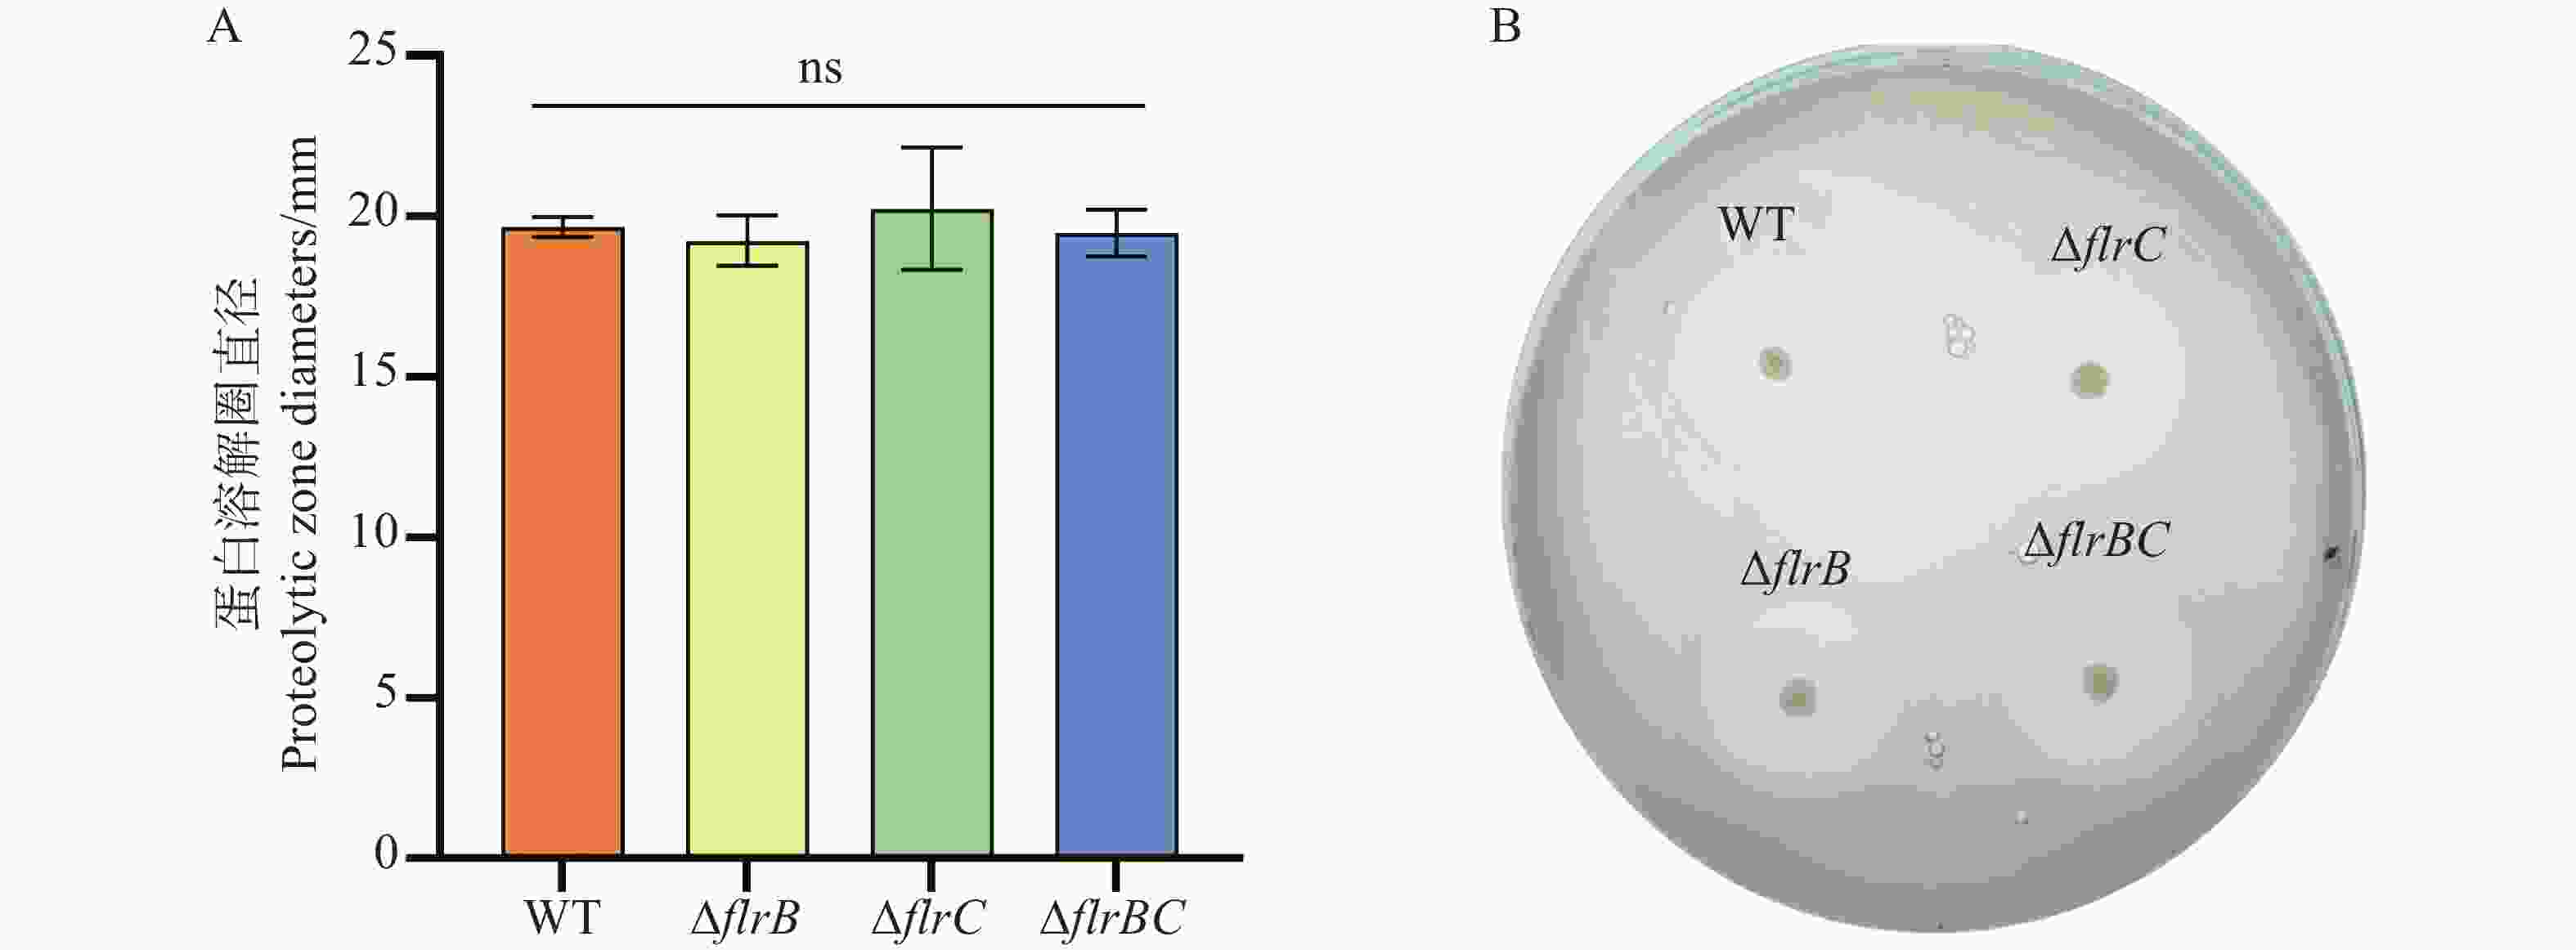
Figure 8. Extracellular protease activity of wild-type Aeromonas dhakensis and the knockout mutants
-
本研究成功构建了达卡气单胞菌C4-1的ΔflrB、ΔflrC单基因敲除株及ΔflrBC双基因敲除株,并系统鉴定了各敲除株在生长、运动性、生物被膜形成、胞外多糖分泌、溶血活性及胞外蛋白酶分泌等方面的表型变化。基因组序列分析和系统发育树显示,flrB和flrC在达卡气单胞菌中相邻排列,在气单胞菌属、弧菌属等物种中高度保守,表明该双组分系统是鞭毛调控网络中的核心模块[8,19]。在此基础上,本研究进一步明确了FlrB/FlrC双组分系统在达卡气单胞菌中的功能边界与调控特征。值得注意的是,FlrB/FlrC在不同物种中的功能存在差异。在霍乱弧菌中,FlrC的磷酸化严格依赖FlrB,缺失任一基因均导致鞭毛合成障碍和运动性丧失[8]。然而,本研究ΔflrB的泳动能力与野生型无显著差异,而ΔflrC显著下降,提示达卡气单胞菌中FlrC可能存在FlrB非依赖的激活途径。马倩倩等[14]在嗜水气单胞菌中发现ΔflrB和ΔflrC泳动能力均无显著变化,与本研究结果不同;在维氏气单胞菌中,ArgR通过结合flrBC启动子正向调控其表达[20]。这些差异表明,FlrBC调控网络在气单胞菌属中具有物种特异性。此外,达卡气单胞菌具有极生和侧生双鞭毛系统,其调控复杂性可能更高。ΔflrB与ΔflrC的表型分离及ΔflrBC双敲除在生物被膜和胞外多糖上的累加效应,进一步提示FlrB和FlrC并非简单线性关系。结合希瓦氏菌中FlrA与FlrC部分功能互换的报道[22],笔者推测达卡气单胞菌中可能存在FlrB非依赖的FlrC激活机制,这可能是其调控网络区别于其他气单胞菌的独特之处。
细菌的生长特性是评价基因是否参与基础代谢的重要指标。本研究中,野生型与各敲除菌株在LB培养基中的生长曲线基本一致,表明flrB和flrC的缺失不干扰达卡气单胞菌的正常增殖。这一结果与维氏气单胞菌中flrB敲除不影响生长的报道一致[10]。提示FlrB/FlrC的功能具有较高的专一性,主要集中于运动及附属表型的调控,而非基础生理代谢[20]。
运动性是鞭毛功能最直接的体现。本研究中ΔflrB的泳动能力与野生型无显著差异,而ΔflrC和ΔflrBC则显著下降;群游运动性方面各菌株均无变化。这一结果与嗜水气单胞菌中的报道存在差异,马倩倩等[14]发现ΔflrB和ΔflrC的泳动能力均无显著变化。造成这种差异的原因可能包括菌种特异性及实验条件的差异。此外,ΔflrB与ΔflrC表型不一致的现象也值得关注。在霍乱弧菌中,FlrB作为组氨酸激酶负责磷酸化激活FlrC,FlrC的磷酸化依赖于FlrB,缺失任一基因均导致鞭毛合成障碍和运动性丧失[8]。然而本研究中ΔflrB的泳动能力并未受到显著影响,提示在达卡气单胞菌中,FlrC的磷酸化可能存在其他激酶的交叉补偿;而FlrC作为下游关键响应调节子,其缺失后难以被其他蛋白完全代偿,因此表型更为显著。类似的现象在希瓦氏菌中也有报道,表明双组分系统在不同物种中的调控机制可能存在适应性变化[21]。进一步比较ΔflrC与ΔflrBC的泳动能力发现,二者迁移直径无显著差异。ΔflrC较野生型下降15.8%,ΔflrBC下降13.2%,下降幅度相近,说明ΔflrBC泳动能力的下降主要归因于flrC的缺失,flrB的缺失未产生额外影响。这与ΔflrB单独敲除无显著表型的结果一致,进一步支持达卡气单胞菌中可能存在FlrB非依赖的FlrC激活途径。
生物被膜形成和胞外多糖分泌是细菌致病性的重要组成部分。本研究中,ΔflrB、ΔflrC和ΔflrBC的生物被膜形成量及胞外多糖分泌量均显著低于野生型,且ΔflrBC的下降幅度最大。这一结果与维氏气单胞菌中flrB促进生物被膜形成的结论一致[10],也与嗜水气单胞菌中FlrBC调控生物被膜和胞外多糖的发现相吻合[14]。生物被膜的形成依赖于鞭毛介导的初始附着及胞外多糖等基质组分的分泌,FlrB/FlrC通过调控鞭毛合成及相关基因表达,间接影响了生物被膜的发育过程[6]。值得注意的是,FlrB/FlrC对生物被膜的调控并非孤立事件,其与细菌第二信使c-di-GMP信号网络存在紧密互作。在霍乱弧菌中,c-di-GMP可直接结合主调控因子FlrA,抑制其与flrBC启动子的结合,从而下调FlrBC表达,最终负调控鞭毛合成与生物被膜形成[22]。此外,FlrC本身被证实为c-di-GMP效应蛋白,c-di-GMP的结合会导致FlrC七聚体结构解聚,从而抑制其ATP酶活性,阻断下游鞭毛基因的转录激活[23]。在铜绿假单胞菌中,FlrBC的同源系统FleS/FleR同样以c-di-GMP和FleQ依赖的方式调控生物被膜形成,且FleR可在不依赖FleS的情况下独立调控鞭毛生物合成[24]。而在维氏气单胞菌中,ArgR通过结合flrBC启动子的ARG box正向调控flrBC表达,同时抑制双鸟苷酸环化酶表达以降低c-di-GMP水平,从而协调鞭毛组装与生物被膜形成[20]。上述跨物种证据表明,FlrBC调控生物被膜形成的核心机制在于c-di-GMP信号通路对FlrBC转录及蛋白活性的多层次调控。在达卡气单胞菌中,ΔflrB与ΔflrC表型的分离现象可能同样源于c-di-GMP对FlrC蛋白活性的差异化影响,这为后续通过检测胞内c-di-GMP水平及FlrC蛋白寡聚状态来验证该假设指明了方向。
此外,溶血活性和胞外蛋白酶分泌在各菌株间均无显著差异,表明FlrB/FlrC的调控具有明显的靶向性,其作用范围局限于鞭毛运动及生物被膜形成相关通路,而不涉及溶血素和胞外蛋白酶等分泌性毒力因子的表达。这一结果提示,达卡气单胞菌中溶血素和胞外蛋白酶的表达可能受其他调控系统(如群体感应系统或其他双组分系统)的独立调控,但其具体机制仍有待进一步研究。
综上,FlrB/FlrC在达卡气单胞菌中特异性调控运动性、生物被膜形成及胞外多糖分泌,但不参与生长、溶血及胞外蛋白酶分泌的调控。本研究为理解达卡气单胞菌的鞭毛调控网络及毒力相关表型的调控机制提供了新的实验依据,但其对细菌整体毒力的影响仍需通过攻毒实验进一步验证。后续可结合转录组学或凝胶迁移实验,进一步鉴定FlrC的直接靶基因,明确其分子调控路径。
Functional characterization of the FlrBC two-component system in Aeromonas dhakensis
DOI: 10.15886/j.cnki.rdswxb.20260091
- Received Date: 2026-07-10
- Accepted Date: 2026-10-19
- Rev Recd Date: 2026-09-24
- Available Online: 2026-11-05
-
Key words:
- Aeromonas dhakensis /
- FlrBC two-component system /
- gene knockout /
- biofilm /
- motility
Abstract: Aeromonas dhakensis is an important zoonotic pathogen of humans and fish, causing significant economic losses in aquaculture. The FlrB/FlrC two-component system is a key regulatory pathway controlling bacterial flagellar synthesis, and its function in A. dhakensis remains unclear yet. An attempt was made to investigate the biological function of flrBC in A. dhakensis. We constructed flrB and flrC single-gene knockout mutants and an flrBC double-gene knockout mutant via homologous recombination, and systematically characterized the phenotypes of these mutants, including growth, motility, biofilm formation, exopolysaccharide secretion, flagellar morphology, hemolytic activity, and extracellular protease secretion. The results showed that knockout of flrBC did not affect growth, hemolytic activity or extracellular protease secretion in A. dhakensis. However, deletion of flrC significantly reduced swimming motility; compared with the wild-type strain, the swimming motility of ΔflrC and ΔflrBC decreased by 15.8% and 13.2%, respectively, while no significant changes in swarming motility were observed among the mutants. Knockout of flrBC significantly reduced biofilm formation and exopolysaccharide secretion. Compared with the wild-type strain, the ΔflrB, ΔflrC, and ΔflrBC decreased biofilm formation by 30.4%, 39.6%, and 52.7%, respectively, and the exopolysaccharide secretion (measured as Congo red adsorption rate) by 25.8%, 38.5%, and 58.1%, respectively. These findings indicate that the FlrB/FlrC two-component system is not involved in primary metabolism or protease secretion, but plays important regulatory roles in virulence-related phenotypes including motility, biofilm formation, and exopolysaccharide secretion, with flrC contributing more prominently to these functions. The findings provide a theoretical basis for elucidating the pathogenic regulatory mechanisms of A. dhakensis.
| Citation: | Wang Shihao, Yu Hualong, Zheng Jiping. Functional characterization of the FlrBC two-component system in Aeromonas dhakensis[J]. Journal of Tropical Biology. doi: 10.15886/j.cnki.rdswxb.20260091

|
 DownLoad: