
 cstr:


-
油桐尺蛾(Biston suppressaria)幼虫通称为油桐尺蠖,主要以桉树(Eucalyptus spp.)等阔叶树种叶片为食[1]。油桐尺蠖以短世代、繁殖强特点使得其成为种群数量难以控制的林业害虫之一[2]。桉树人工林油桐尺蠖大规模的暴发会极大地影响桉树生长,同时油桐尺蠖的聚集现象还会引起森林生态系统失衡[3]。2022年8月油桐尺蠖在广西桉树人工林的发生面积高达3 006.67 hm2,约占所有虫害面积93.6%[4]。传统的防治措施面对油桐尺蠖的快速繁殖和世代重叠的特点显得不足,过度使用化学农药还会对森林生态系统造成破坏。因此急需探索更高效、环保的治理策略,为此寻找针对油桐尺蠖有强大杀虫活性的菌株对制定科学合理的防控方案意义重大。
微生物对昆虫的致病作用包括了多种复杂的生理生化过程,对于开发新型生物农药和制定有效的害虫管理策略具有重要意义[5]。因此,利用微生物控制鳞翅目的食叶害虫属于环保且可持续的策略。昆虫病原细菌的分离是致病菌的分离与鉴定的重要基础,也是生防菌开发中最重要的环节之一[6]。王海旭等[7]从罹病体的春尺蠖(Apocheima cinerarius)分离了具有杀虫活性的短小芽孢杆菌(B. pumilus)菌株CH-1,对多鳞翅目幼虫具有较好的致死效果。Janaki等[8]通过实验发现了枯草芽孢杆菌(B. subtilis)菌株EB01对稻纵卷叶螟(Cnaphalocrocis medinalis)具有良好的杀虫潜力,可显著延缓稻纵卷叶螟发育周期。总的来说,可培养病原细菌的分离在获取具有潜在应用价值的菌株中具有不可替代的价值[9]。
昆虫病原菌的分离需通过传统微生物学方法与现代分子技术来确保菌株纯度与致病性,为后续杀虫活性测定奠定重要的基础。本研究利用传统培养结合分子生物学方法,分别通过16s rDNA技术与系统发育树确定致病细菌的分类与进化地位,并通过菌液回接纯化实验对细菌的致死率进行验证。最终确定致病菌对油桐尺蠖的杀虫活性,为将其作为备选生防菌提供理论依据。
-
供试昆虫样本采自广西壮族自治区玉林市博白林场范围内(21°38'~22°28' N,109°38'~110°17' E),选取林间自然感染致死、体表完整无损伤的油桐尺蠖幼虫个体。采用梯度消毒法处理虫体表面,依次使用体积分数75%乙醇溶液漂洗30 s、0.1% HgCl2浸泡2 min,最后以无菌去离子水冲洗3次。经表面灭菌处理的虫体分装于1.5 mL无菌离心管中,置于生物冰盒(4±1) ℃内低温保存,样本采集后12 h内转移至实验室进行病原分离。
-
改进刘玉升等[10]的方法,取适量死亡油桐尺蠖的完整肠道置于无菌研钵中,加入1 mL预冷的0.85%生理盐水(含0.05% Tween-80),使用无菌匀浆器充分匀浆5 min。将匀浆液转移至1.5 mL离心管,经4 000 r·min−1、4 ℃离心3 min后取上清液作为原代接种体备用。LB液体培养基制作方法为胰蛋白胨10 g、酵母提取物5 g、氯化钠10 g,加入
1000 mL的蒸馏水后搅拌至完全溶解,后用1.0 mol·L−1的氢氧化钠溶液将溶液的pH值调至7.2±0.2后加水定容至1 000 mL。LB固体培养基的制作需要在液体培养基的基础上加入琼脂粉15~20 g,加热融化。融化后将液体培养基分装到三角瓶中,封膜后进行121 ℃高压蒸汽灭菌30 min。配制过程中保持环境清洁,避免杂菌污染。 -
改进文献[10-11]的分离方法对死亡油桐尺蠖的肠道细菌进行分离纯化。取10 μL原代接种体接种于100 mL LB液体培养基上,于恒温振荡培养箱(28 ℃,180 r·min−1)中富集培养24 h。将增殖菌液离心(10 000 r·min−1,4 ℃)10 min后收集菌体,用无菌生理盐水重悬至100 mL LB。采用梯度稀释法对菌悬液进行系列稀释(101、103、105、107),每个梯度设置3个生物学重复。取100 μL稀释液均匀涂布于LB固体培养基表面(Φ=9 cm培养皿),使用酒精灯火焰灭菌的玻璃涂布器以旋转法(先顺时针后逆时针)涂布3次。涂布后的平板倒置于30 ℃恒温培养箱中黑暗培养48 h。通过菌落形态(形态、色泽、边缘特征)筛选目标菌落,采用三区划线法进行纯化。经28 ℃培养24 h后,选取第三区单菌落转接至斜面培养基,4 ℃保藏备用。
-
基于《伯杰氏细菌鉴定手册》[12]的形态学分类标准筛选形态学特征不一致的菌落,采用细菌基因组DNA纯化试剂盒EasyPure® Bacteria Genomic DNA Kit(北京全式金生物有限公司),按照试剂盒提供的说明书方法提取油桐尺蠖肠道细菌基因组DNA。提取完成后采用微量核酸蛋白浓度测定仪NanoDrop One(赛默飞世尔科技有限公司)对提取质量和浓度进行测定。采用细菌16S rRNA 通用引物27F(5'-AGAGTTTGATCCTGGCTCAG-3')与1492R(5'-GGTTACCTTGTTACGACT T-3')对合格样品的基因组DNA进行PCR扩增[13]。PCR反应体系为2× Hotstart PCR Master Mix(上海生工生物工程股份有限公司)25 μL,338F引物1 μL,806R引物1 μL,模板DNA 1 μL,ddH2O补足至50 μL。PCR反应程序步骤:1)95 ℃预变性3 min;2)95 ℃变性15 s;3)55 ℃退火15 s;4)72 ℃延伸10 s;5)72 ℃终延伸5 min;其中,步骤2)~4)循环30次。最终PCR产物送至上海生工生物工程股份有限公司进行双向的一代基因测序。
-
将测序所得序列导入MEGA 12,使用ClustalW对齐正反向reads的重叠区,对测序结果进行拼接。序列通过NCBI网站(
www.ncbi.nlm.nih.gov )的BLASTn比对筛选同源性前5的菌株,下载基因序列FASTA格式文件。使用MAFFT v7.505进行多序列比对,参数采用auto模式,进行1 000次迭代检验。通过Gblocks v0.91b去除比对序列中的非保守区及低信息位点,参数保留允许缺口位置。采用IQ-TREE v2.2.0进行最大似然法(Maximum Likelihood, ML)构建系统发育树,自动筛选最优核苷酸/氨基酸替代模型,并依据贝叶斯信息准则(BIC)确定模型参数,基于UltraFast Bootstrap计算1 000次重复支持率;通过iTOL v6.7.1 调整分支长度、着色及标签,自展支持率验证节点支持率≥90%视为可信分支。 -
菌株接种于LB液体培养基,在无菌摇床内30.0 ℃下 200 r·min−1扩增至OD600=0.8,离心(8 000 ×g, 10 min)后重悬于无菌PBS溶液,最终浓度为1.0×10⁸ CFU·mL−1。将菌液均匀喷施在使用纯水清洗后的桉树叶片表面,选择健康的3龄幼虫(n=30)通过饲喂法饲喂含有细菌的桉树叶片,对照组采用等量PBS处理,待7 d后计算校正死亡率。培养条件:(25.0±1.0) ℃,湿度(60.0±2.0)%,光周期L:D=14 h:10 h。对独立样本T检验后呈现离散的样本进行二次验证,死亡虫体采用75%乙醇溶液漂洗30 s、0.1% HgCl2浸泡2 min,最后以无菌去离子水冲洗3次后,取下完整肠道,按照1.2~1.4的方法进行可培养细菌的分离纯化与鉴定,观察是否分离出目标菌落。
-
选取健康3龄油桐尺蠖、大造桥虫(Mugwort looper)和小用克尺蛾(Jankowskia fuscaria)幼虫,采用饲喂法进行处理。将1.0×10⁸ CFU·mL−1菌液喷施于桉树叶片,待叶片自然晾干后供3种鳞翅目幼虫取食,对照组采用等体积无菌PBS处理。每组处理设置10头油桐尺蠖样本,同时设置3个生物学重复。每24 h观察1次幼虫存活率,采用Abbott公式计算校正死亡率,记录7 d时的累计校正死亡率。
-
从死亡油桐尺蠖样本中共获得15株形态学特征存在显著差异的细菌分离株,分别编号为B1~B15。通过试剂盒法提取细菌基因组DNA后,采用通用引物对16S rDNA高变区进行PCR扩增,电泳检测显示所有样本均呈现约1 400 bp的特异性扩增条带,证实目标片段成功扩增。经16S rDNA序列比对后表明B1、B2、B5、B9以及B10共5个菌株的比对相似度达99.0%以上,具体结果见表1。
编号
Number相似种
Similar species登录号
Accession number相似度/%
SimilarityB1 阴沟肠杆菌 Enterobacter cloacae KC990807 99.21 B2 迈氏谷氨酸杆菌 Glutamicibacter mysorens OP020885 99.55 B3 弗氏柠檬酸杆菌 Citrobacter freundii OY324134 98.54 B4 变形假单胞菌 Pseudomonas plecoglossicida GQ398824 97.85 B5 地衣芽孢杆菌 Bacillus licheniformis LC814576 99.56 B6 芽孢杆菌属 Bacillus sp. SGE178 HM566702 92.23 B7 粪产碱菌 Alcaligenes faecalis LN870277 94.23 B8 生癌肠杆菌 Enterobacter cancerogenus LN890004 98.12 B9 鹑鸡肠球菌 Enterococcus gallinarum LT223665 99.80 B10 短稳杆菌 Empedobacter brevis AM177497 99.62 B11 粘质沙雷氏菌 Serratia marcescens AB061685 98.43 B12 粘质沙雷氏菌 Serratia marcescens AB270613 98.17 B13 奇异变形杆菌 Proteus mirabilis LT745977 98.15 B14 路氏肠杆菌 Enterobacter ludwigii AJ853891 98.07 B15 肠球菌属 Enterobacter sp. CY2W15 HQ231936 98.15 Table 1. Comparison of 16S rDNA sequences of enteric culturable bacteria from infected Biston suppressaria
-
基于最大似然法构建的系统发育树显示,15株细菌分属于10个不同的属(图1)。 其中,肠杆菌属(Enterobacter)包含B1、B8、B14和B15共4株菌株;其次为沙雷氏菌属(Serratia)和芽孢杆菌属(Bacillus),沙雷氏菌属包含B11、B12菌株和芽孢杆菌属B5、B6菌株;其余7个属各检出1株菌株。
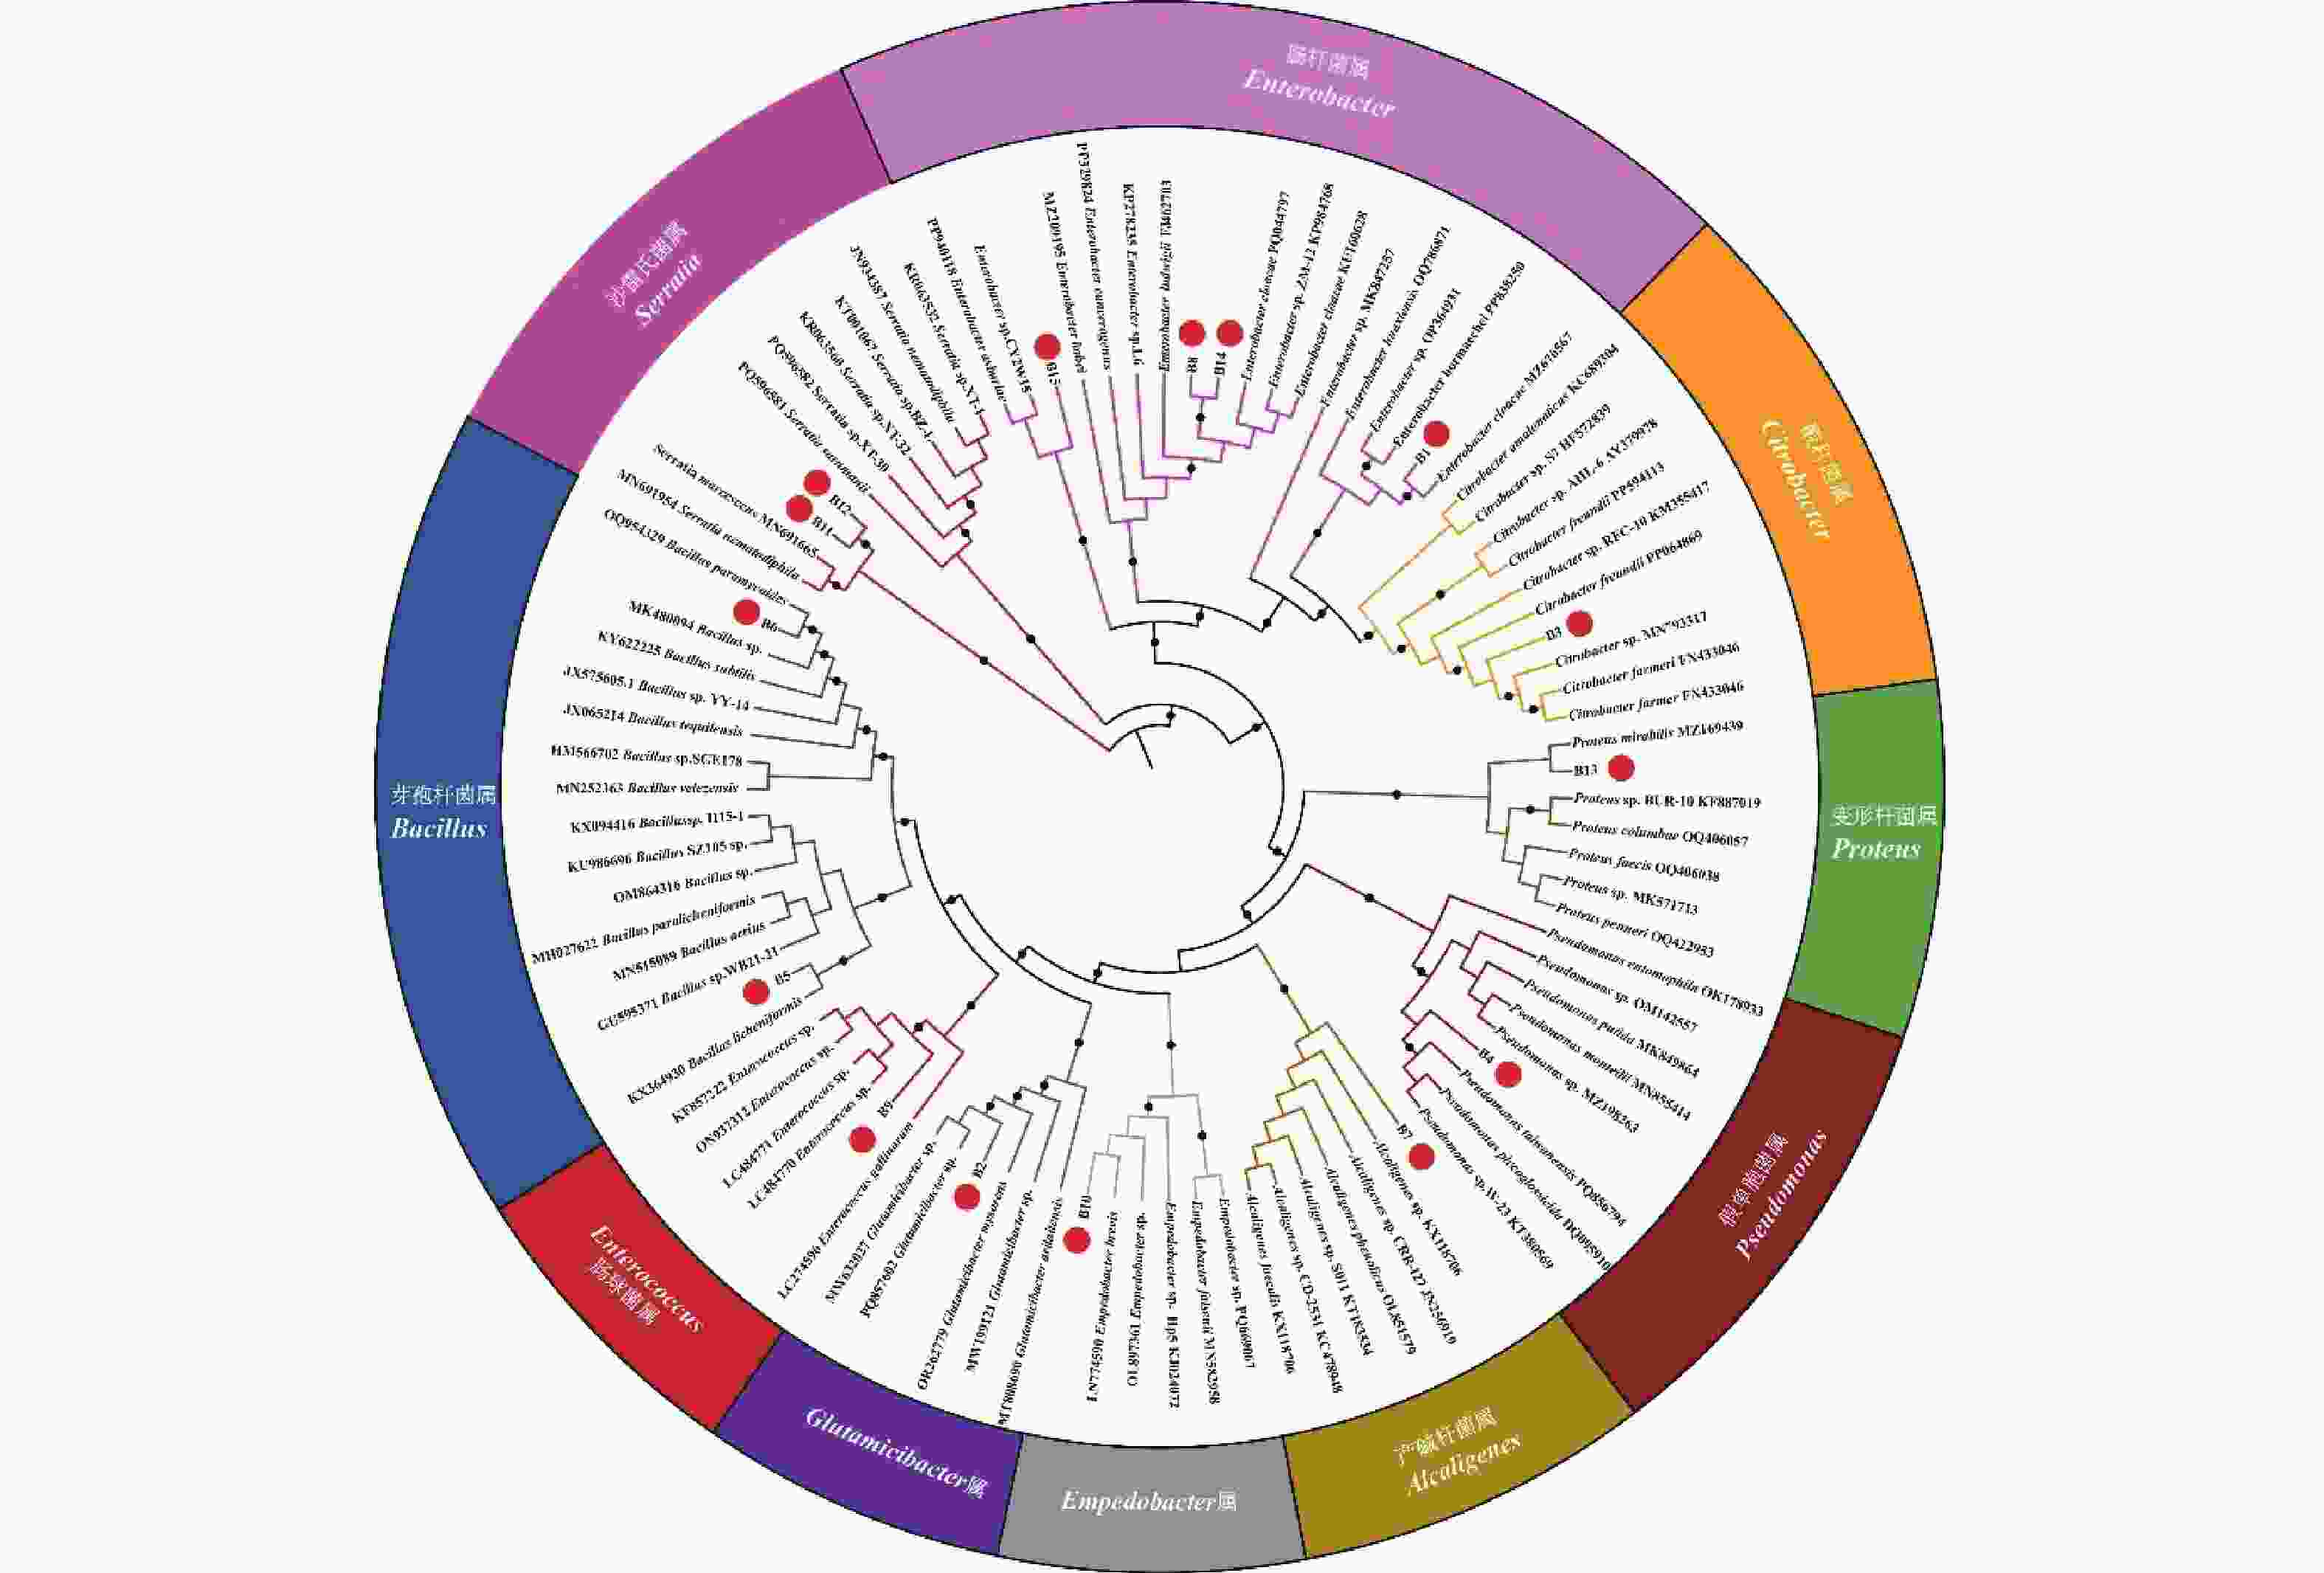
Figure 1. The 16S rDNA phylogenetic tree of enteric culturable bacteria from infected Biston suppressaria based on maximum likelihood method
-
不同的菌株处理对幼虫死亡率存在一定程度的影响(图2-A)。芽孢杆菌科菌株B6展现出最强的致病效应,处理组第7日累计校正死亡率达60.0%,样本存在显著偏离(P<0.01);其次是沙雷氏菌属菌株B11在饲喂法处理中表现出一定的致死率,7 d时的累计校正死亡率为23.1%,样本存在偏离。其他菌株的7 d累计校正死亡率为0~13.3%,相较于芽孢杆菌科菌株B6更低。感染芽孢杆菌科B6后死亡的油桐尺蠖的特征如图3所示,使用B6感染后的幼虫于濒死期(死亡前24 h)出现足部逐渐泛红的现象(图3-D),体表出现直径0.5~1.2 mm的黑色浸润性病斑(图3-E),且不摄食;死亡12 h后虫体缩短至原长的80%,腹部肿胀,病斑扩大至原来的1.5倍~2.0倍;虫体几丁质层崩解,乳白色脓液从体内渗出(图3-C);虫体变得易破裂,破裂后伴随着臭味的棕色脓液出现(图3-F)。

Figure 2. The cumulative corrected mortality of the geometrid at day7 (A) and pathogenicity against different Trichopteridae insects (B)

Figure 3. Characteristics of Biston suppressaria at 12 hours after death
取经过芽孢杆菌科B6处理致死且符合图3特征的油桐尺蠖完整肠道,按照1.2~1.4的方法再次进行细菌的分离。成功分离出与芽孢杆菌科B6形态学上一致的优势菌落B6-Ⅱ,并将其纯化3代后经16S rRNA基因测序。测序结果表明B6-Ⅱ的16S rRNA序列长度为1 202 bp,与原始病体分离株同源性达99.80%,确认死亡虫体内存在芽孢杆菌科B6细菌,同时使用B6-Ⅱ感染健康的油桐尺蠖后依然表现出图3-C—F的死亡特征,且对油桐尺蠖再处理的7 d校正死亡率与B6一致。
-
为全面评估芽孢杆菌科B6细菌对尺蛾科昆虫的杀虫活性,选取了油桐尺蠖、大造桥虫和小用克尺蛾幼虫作为实验对象进行实验。结果表明,在1.0×10⁸ CFU·mL−1B6菌液感染下,7 d时大造桥虫的累计校正死亡率最高,而在1.0×10⁸ CFU·mL−1B6菌液感染下,7 d时对小用克尺蛾的累计校正死亡率最低。致病菌B6对这3种尺蠖均展现出了不同程度的杀虫活性,在感染后的2 d均能使3种尺蠖产生一定的死亡率(图2-B)。其中,在感染后的2~ 6天这一时间段内,油桐尺蠖的校正死亡率显著高于大造桥虫和小用克尺蛾,这表明致病菌B6在这段时间内对油桐尺蠖的毒杀效果最为显著;当实验进行到第7天以后,致病菌B6对大造桥虫的毒杀作用略有增强,其校正死亡率与油桐尺蠖相比虽略有优势,但统计学并未达到显著水平。
-
通过对林间采集的死亡油桐尺蠖样本肠道细菌进行分离与鉴定,揭示了油桐尺蠖肠道内细菌的种类和致病性,为寻找高致死率的致病菌提供理论基础。研究结果表明,死亡油桐尺蠖样本中共分离出15株形态学特征不同的细菌,与部分鳞翅目昆虫肠道细菌的组成有相似之处。如肠杆菌属和芽孢杆菌属均在番茄潜夜蛾(Tuta absoluta)和草地贪夜蛾(Spodoptera frugiperda)中被培养出,这类细菌并没有明显的致病现象[14-15]。肠杆菌属在昆虫肠道中通常扮演着重要的角色,其与宿主代谢能力密切相关为宿主提供必需的营养物质[16-17]。沙雷氏菌属为常见的昆虫致病菌,其模式种粘质沙雷氏菌能够产生灵菌红素,对昆虫生长发育产生重大影响[18]。但本研究的致病性验证结果表明沙雷氏菌属B11与B12对油桐尺蠖致死率并不高,这表明油桐尺蠖对该类细菌存在一定的抵御作用,因此并不适宜作为生防菌开发。油桐尺蠖肠道中还分离到一些较少见的细菌,如酸杆菌属(Citrobacter)和产碱杆菌科(Alcaligenaceae)。酸杆菌属细菌通常具有较强的有机酸产生能力,可能参与调节肠道pH值,创造一个不利于病原菌生长的环境[19]。产碱杆菌科细菌则可能通过产生碱性物质,进一步为油桐尺蠖维持肠道的碱性环境[20];这类细菌可能与油桐尺蠖的特定生态环境和食性有关,碱性环境的出现则可能导致耐碱性细菌群落数量增加。
在致病性筛选中,不同细菌株系对油桐尺蠖的致病机制存在差异。芽孢杆菌科菌株B6展现出最强的致病效应,饲喂法处理组第7日校正死亡率达60.0%,略低于绿僵菌(Metarhizium anisopliae)与球孢白僵菌(Beauveria bassiana)[21-22]。芽孢杆菌科B6感染后,幼虫于濒死期体表出现黑色浸润性病斑,且不摄食;死亡后虫体缩短,腹部肿胀,病斑区几丁质层崩解,伴随着臭味的脓液出现,这些特征表明B6可能通过产生毒素或引发宿主免疫反应导致幼虫死亡。之前已提到,芽孢杆菌属细菌能够产生多种毒素和酶类,这些物质可能对宿主细胞造成直接损伤[23-24];再结合Turchi等[25]证实的芽孢杆菌属细菌产生的β-外毒素能够抑制宿主细胞的蛋白质合成,可能会导致本研究中出现的尺蠖体表脓包现象。此外,研究人员还表明了芽孢杆菌属细菌能够产生溶血素和细胞壁降解酶,进一步破坏宿主的组织结构[26],这可能与本研究中出现的油桐尺蠖表皮破损和臭味脓液渗出有关。因此,B6感染后幼虫体表出现的一系列致病性特征可能是由于细菌产生的毒素和酶类导致的局部组织坏死和炎症反应。但由于校正死亡率略低于常用生防真菌绿僵菌与球孢白僵菌,需要进一步筛选更适合的应用条件。
本研究结果表明,B6菌株对油桐尺蠖、大造桥虫和小用克尺蛾3种尺蛾科害虫均展现出一定的杀虫活性,但在感染初期,油桐尺蠖的校正死亡率显著高于另外两种害虫。结合Chakrabarty[27]研究的鳞翅目昆虫与芽孢杆菌的相关性机制,可以推测B6菌株与油桐尺蠖之间也可能存在类似的特异性相互作用机制,使得油桐尺蠖因其自身的生理特性而对B6菌株更为敏感。在长期的进化过程中,微生物与宿主昆虫之间形成了复杂的相互作用关系,这种特异性致病性是微生物适应特定宿主环境的结果[28]。随着感染时间的延长大造桥虫的校正死亡率虽有所上升,但与油桐尺蠖相比差异不显著,表明在持续感染下不同害虫的抗性表现趋于一致。这种对多种尺蛾科害虫的广谱致病性使得B6菌株在害虫防治中具有广阔的应用前景,能够有效应对单一害虫爆发及多种害虫混发的情况,减少化学农药的使用,降低对环境的污染和对非靶标生物的影响。总的来说,B6菌株具有作为生防菌的潜力,但本研究仅采用了1.0×10⁷ CFU·mL−1浓度进行毒力检测,存在一定的局限性。后续研究将重点从芽孢杆菌科菌株B6出发,基于高通量测序技术进一步探究感染B6菌株后油桐尺蠖肠道微生物群落结构的变化,揭示微生物与宿主之间的复杂相互作用,为理解油桐尺蠖的致病机制、开发绿色防控策略提供更为详尽的数据支持。后续研究还将探究不同环境下菌株对油桐尺蠖的致死率,同时进行相应的林间应用试验。
-
本研究揭示了死亡油桐尺蠖肠道微生物群落的组成与多样性,并筛选出具有致病性的细菌菌株B6。进一步的致病性筛选实验表明,芽孢杆菌科菌株B6对油桐尺蠖幼虫具有显著的致病效应,其校正死亡率明显高于其他细菌。
Initial isolation and identification of pathogenic bacteria from Biston suppressaria on eucalyptus trees
DOI: 10.15886/j.cnki.rdswxb.20250072
- Received Date: 2025-05-29
- Accepted Date: 2025-08-28
- Rev Recd Date: 2025-07-01
- Available Online: 2025-09-03
-
Key words:
- B. suppressaria /
- bacterial isolation /
- 16S rDNA /
- Bacillaceae
Abstract: Biston suppressaria is a pest threatening eucalyptus plantations. Bacteria from its intestine were isolated and identified by using traditional culture and molecular biology methods to find pathogenic strains for biocontrol of this pest. Fifteen bacteria with distinct morphological traits were isolated from naturally infected, lethal B. suppressarias and identified into ten genera, including Enterobacter, Serratia, and Bacillus via 16S rDNA sequence analysis. The Bacillaceae strain B6 showed the highest pathogenicity. After treated with B6 by using the feeding method, B. suppressarias had a cumulative corrected mortality of 60.0% at day 7, with specific pathogenic characteristics observed in the dead insects. Re-isolation yielded colonies morphologically consistent with B6, with a sequence similarity of 99.80%. Moreover, B6 exhibited certain pathogenicity to the other two types of Geometridae larvae, including the common cutworm and small emerald moth, and showed significant insecticidal effects on B. suppressarias at the early infection stage. This study provides a theoretical basis for the use of the Bacillaceae strain B6 to control B. suppressarias and develop eco-friendly control strategies.
| Citation: | YANG Shengji, LIU Weili, LIN Jing, DENG Bo, SU Zhenye, MENG Lihua, LUO Dun, HUANG Hanlin. Initial isolation and identification of pathogenic bacteria from Biston suppressaria on eucalyptus trees[J]. Journal of Tropical Biology. doi: 10.15886/j.cnki.rdswxb.20250072

|
 DownLoad:

